Introduction — l’eau, architecture invisible du jardin-forêt
Un jardin-forêt ne se conçoit pas d’abord avec des arbres. Il se conçoit avec de l’eau. Avant de choisir la moindre essence, avant de tracer la première allée, le concepteur doit comprendre comment l’eau arrive sur son terrain, où elle s’accumule, par où elle s’échappe, à quelle vitesse elle transite. Car l’eau est la variable qui commande toutes les autres : la fertilité du sol, l’activité biologique, la croissance végétale, la résistance aux sécheresses et aux inondations. Un jardin-forêt bien hydraté prospère presque de lui-même ; un jardin-forêt qui perd son eau lutte en permanence contre le stress.
La forêt naturelle est, de tous les écosystèmes terrestres, celui qui gère l’eau avec la plus grande efficience. Une hêtraie des Vosges reçoit entre 800 et 1 400 mm de pluie par an ; elle en restitue moins de 5 % sous forme de ruissellement de surface, le reste étant infiltré, stocké dans le sol, absorbé par les racines ou lentement libéré vers les nappes phréatiques. À l’inverse, un champ de maïs labouré sur le même versant peut perdre 30 à 40 % de la pluie par ruissellement, emportant avec elle la couche arable. La différence tient à trois mécanismes fondamentaux : l’interception par la canopée, l’infiltration dans un sol structuré et vivant, et la rétention dans la matière organique. Ce sont exactement ces mécanismes qu’un jardin-forêt cherche à reproduire.
Cet article explore la gestion de l’eau dans le jardin-forêt à travers ses dimensions scientifiques et pratiques. Nous examinerons d’abord le fonctionnement hydrologique d’un sol forestier — cet « effet éponge » qui lui permet de stocker des quantités d’eau considérables. Nous détaillerons ensuite les principaux ouvrages et techniques de rétention : les swales (fossés d’infiltration sur courbes de niveau), les mares, le mulch permanent, et le keyline design. Nous aborderons les contraintes spécifiques du contexte montagnard — pentes, gel, drainage — avant de comparer les besoins hydriques d’un jardin-forêt établi avec ceux d’un potager classique. L’enjeu n’est pas seulement agronomique : à l’heure où les épisodes de sécheresse s’intensifient en Europe et où la ressource en eau devient un sujet politique, concevoir des systèmes alimentaires capables de fonctionner avec la seule eau du ciel relève d’une nécessité stratégique.
Le cycle de l’eau en forêt — un modèle d’efficience
Pour comprendre comment gérer l’eau dans un jardin-forêt, il faut d’abord observer comment une forêt naturelle la gère. Le cycle hydrologique forestier se décompose en plusieurs flux, chacun quantifiable et chacun ayant son équivalent — ou son absence — dans un système cultivé.
L’interception par la canopée
Lorsque la pluie tombe sur une forêt, elle ne touche pas immédiatement le sol. La voûte foliaire intercepte une fraction significative des précipitations : entre 15 et 40 % selon l’essence, la densité du couvert et l’intensité de l’averse (Aussenac, 1968). Cette eau interceptée s’évapore directement depuis les feuilles, ne participant pas à l’alimentation du sol mais ralentissant considérablement l’énergie cinétique des gouttes. Une goutte de pluie tombant de 10 mètres sur un sol nu frappe la surface à environ 9 m/s ; cette énergie désagrège les agrégats superficiels, colmate les pores et déclenche le ruissellement. Sous couvert forestier, l’eau arrive au sol par égouttement (throughfall) ou en ruisselant le long des troncs (stemflow), avec une énergie considérablement réduite.
Dans un jardin-forêt, la canopée des arbres fruitiers et des arbres à noix joue exactement ce rôle. Un noyer adulte intercepte à lui seul 25 à 30 % de la pluie qui tombe dans sa projection au sol (Herbst et al., 2007). Un pommier haute-tige, 15 à 20 %. Même les arbustes de la strate intermédiaire — groseilliers, sureaux, noisetiers — participent à cette dissipation d’énergie. Le résultat net est un sol qui reçoit une pluie adoucie, fragmentée, étalée dans le temps.
L’infiltration : sol forestier contre sol cultivé
La différence la plus spectaculaire entre un sol forestier et un sol labouré concerne la vitesse d’infiltration. Les mesures au simulateur de pluie montrent des écarts d’un ordre de grandeur : un sol forestier tempéré bien structuré infiltre typiquement 100 à 300 mm/h, contre 10 à 30 mm/h pour un sol cultivé compacté (Barthès et Roose, 2002). Au-delà du seuil d’infiltration, l’eau ruisselle.
Plusieurs facteurs expliquent cet écart. Le sol forestier possède une macroporosité abondante, créée par les racines (vivantes et mortes), la mésofaune (vers de terre, coléoptères) et les champignons. Un sol de hêtraie contient 50 à 65 % de porosité totale, dont 15 à 25 % de macropores (diamètre supérieur à 75 μm) qui assurent le drainage rapide (Beven et Germann, 1982). Les galeries de vers de terre constituent à elles seules des drains verticaux remarquablement efficaces : un sol riche en Lumbricus terrestris peut contenir 100 à 400 galeries par mètre carré, chacune d’un diamètre de 5 à 10 mm, formant un réseau de drainage qui traverse la totalité de l’horizon humifère.
La litière joue un rôle complémentaire. La couche de feuilles mortes, de brindilles et de débris végétaux qui recouvre le sol forestier agit comme un filtre et un tampon : elle absorbe la première vague de pluie (jusqu’à 2-3 mm), ralentit le flux, et empêche la formation d’une croûte de battance à la surface du sol minéral. Dans un potager classique laissé nu entre les rangs, cette croûte se forme dès les premières pluies d’automne et réduit l’infiltration de 60 à 80 % (Le Bissonnais, 1996).
Le bilan hydrique forestier
À l’échelle annuelle, le bilan hydrique d’une forêt tempérée se répartit approximativement ainsi (données synthétiques pour une chênaie-hêtraie sur 900 mm de précipitations) : interception et évaporation directe 20-25 %, transpiration des arbres 30-40 %, recharge des nappes et écoulement de base 25-35 %, ruissellement de surface 2-5 %. Ce dernier chiffre est remarquablement bas. À titre de comparaison, un champ de grande culture sur le même site produirait 15 à 30 % de ruissellement et 10 à 20 % seulement de recharge de nappe (Cosandey et Robinson, 2000).
La forêt consomme donc davantage d’eau que le champ (par transpiration), mais elle en perd beaucoup moins par ruissellement et en stocke davantage dans le sol et le sous-sol. C’est le paradoxe hydrologique forestier : un système qui utilise plus d’eau individuellement en gaspille moins collectivement. Le jardin-forêt, en reproduisant la structure verticale et horizontale de la forêt, hérite de cette efficience.
L’effet éponge — comment le sol forestier stocke l’eau
L’expression « effet éponge » est devenue courante dans la littérature de vulgarisation, mais elle repose sur des mécanismes physico-chimiques précis qu’il vaut la peine de détailler, car ils déterminent les leviers d’action du jardinier-forestier.
La matière organique, réservoir hydrique du sol
La matière organique du sol (MOS) possède une capacité de rétention en eau considérable, de l’ordre de 3 à 5 fois son propre poids sec. Un sol contenant 5 % de MOS retient environ 80 à 95 litres d’eau supplémentaires par mètre cube par rapport à un sol identique à 1 % de MOS (Hudson, 1994). Rapporté à l’hectare sur 30 cm de profondeur, chaque point de pourcentage de matière organique gagné représente environ 150 000 litres d’eau stockée en plus — soit l’équivalent de 15 mm de pluie.
Ce stockage s’explique par la structure moléculaire des substances humiques. Les acides humiques et fulviques présentent une abondance de groupements fonctionnels hydrophiles — carboxyles (-COOH), hydroxyles (-OH), amines (-NH₂) — qui fixent les molécules d’eau par liaisons hydrogène. Les polysaccharides bactériens et fongiques contribuent au même effet. La glomaline, glycoprotéine produite par les champignons mycorhiziens à arbuscules, est particulièrement efficace : elle peut représenter jusqu’à 5 % du carbone total du sol et sa nature hydrophobe stabilise les agrégats tout en créant des micropores qui retiennent l’eau capillaire (Wright et Upadhyaya, 1998).
Un sol forestier mature contient typiquement 4 à 8 % de matière organique dans l’horizon A, contre 1,5 à 3 % pour un sol cultivé de longue date (Lal, 2004). Cette différence se traduit directement en capacité de rétention hydrique. Reconstituer la MOS d’un sol dégradé est donc le premier levier pour améliorer sa résilience hydrique — et c’est exactement ce que fait un jardin-forêt, par l’apport continu de litière, de racines mortes et de mulch.
La structure du sol : agrégats et porosité
L’eau dans le sol circule et se stocke dans les pores. La taille de ces pores détermine le comportement hydrique : les macropores (> 75 μm) assurent le drainage gravitaire et l’aération, les mésopores (30-75 μm) retiennent l’eau disponible pour les plantes, et les micropores (< 30 μm) retiennent l'eau avec une force telle que les racines ne peuvent l'extraire (point de flétrissement permanent).
La structure en agrégats du sol forestier — ces « grumeaux » formés par le collage de particules minérales par les substances organiques, les hyphes fongiques et les sécrétions bactériennes — crée un équilibre optimal entre ces trois classes de pores. Oades (1984) a montré que les agrégats stables à l’eau sont deux à cinq fois plus abondants dans les sols forestiers que dans les sols cultivés, en raison de l’absence de perturbation mécanique (pas de labour) et de l’apport continu de matière organique fraîche.
Dans un jardin-forêt, la règle fondamentale est simple : ne jamais retourner le sol. Chaque coup de bêche, chaque passage de motoculteur détruit des agrégats que la biologie du sol a mis des mois à construire. Les techniques de non-travail du sol — mulch permanent, plantation au transplantoir, semis direct — préservent cette architecture et la laissent se complexifier avec le temps. Un jardin-forêt de dix ans possède une structure de sol significativement meilleure que celle d’un potager de même âge conduit en labour annuel.
La faune du sol : ingénieurs hydrauliques
Les vers de terre sont les principaux architectes de la porosité du sol. Lumbricus terrestris, le ver anécique commun, creuse des galeries verticales pouvant atteindre 2 mètres de profondeur. Ces galeries, stabilisées par du mucus et des déjections, constituent des conduits d’infiltration préférentielle : l’eau y circule 10 à 100 fois plus vite que dans la matrice du sol (Shipitalo et Butt, 1999). Un sol riche en vers de terre (300 à 500 individus par mètre carré, densité courante en sol forestier) peut contenir 900 à 1 500 km de galeries par hectare.
Les collemboles, les acariens oribates, les larves de diptères et les enchytréides travaillent à une échelle plus fine, créant une microporosité qui retient l’eau capillaire. Les racines elles-mêmes, en croissant puis en mourant, laissent des canaux qui persistent des années et contribuent à la porosité biologique du sol.
Le jardin-forêt nourrit cette faune par trois mécanismes : apport continu de litière (feuilles mortes, tailles, mulch), absence de perturbation mécanique, et absence de pesticides. En retour, cette faune entretient et améliore la capacité d’infiltration du sol — un cercle vertueux qui s’auto-renforce avec le temps.
Les swales — fossés d’infiltration sur courbes de niveau
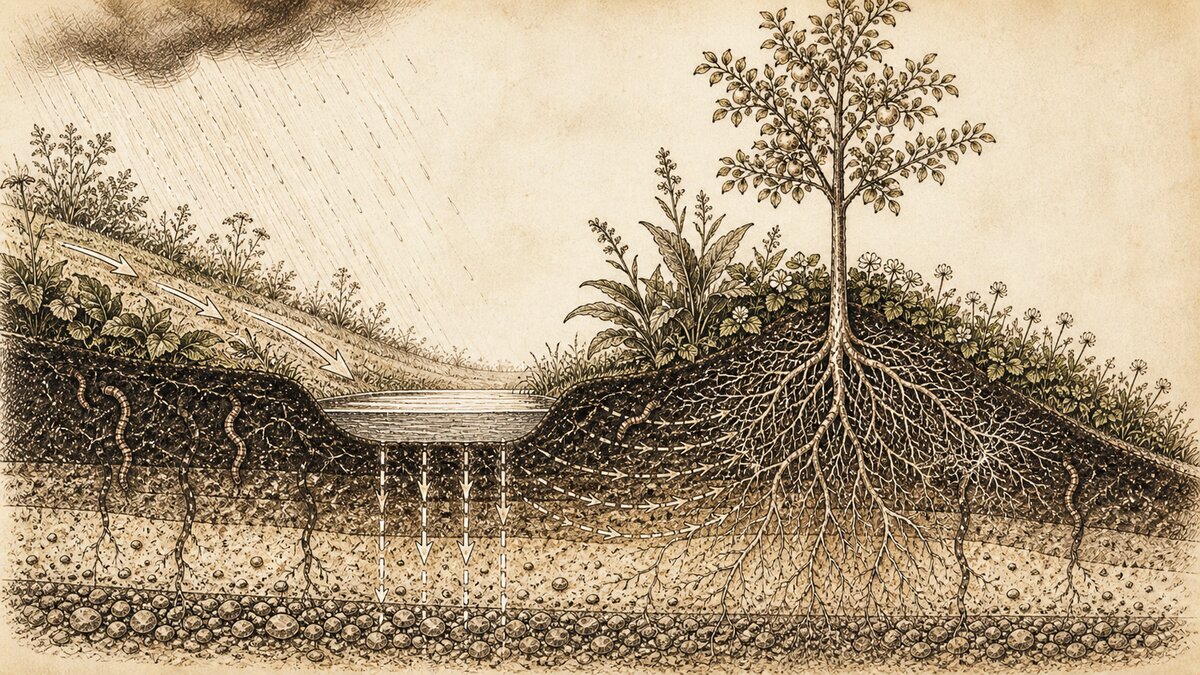
Le swale, ou fossé d’infiltration, est sans doute l’ouvrage hydraulique le plus emblématique de la permaculture et le plus pertinent pour le jardin-forêt. Son principe est d’une simplicité désarmante : creuser un fossé peu profond exactement sur une courbe de niveau (ligne d’altitude constante), de sorte que l’eau de ruissellement s’y accumule et s’infiltre sur place au lieu de dévaler la pente.
Principes et origines
Le concept de fossé d’infiltration est ancien. Les terrasses irriguées de Bali, les jessour du sud tunisien, les bunds du Rajasthan pratiquent depuis des siècles la même logique : intercepter l’eau sur la pente et la forcer à s’infiltrer. La formalisation moderne du swale en contexte de design paysager revient à Percival Alfred Yeomans, ingénieur minier et éleveur australien, qui publia en 1954 The Keyline Plan, puis à Bill Mollison qui intégra le concept dans le cadre théorique de la permaculture (Mollison, 1988).
Un swale n’est pas un fossé de drainage. Un fossé de drainage est creusé avec une pente longitudinale pour évacuer l’eau ; un swale est parfaitement horizontal, son fond suivant rigoureusement la courbe de niveau. L’eau qui s’y accumule n’a nulle part où aller latéralement : elle stagne, puis s’infiltre dans le sol à travers le fond et les parois du fossé. La terre extraite du creusement est déposée en aval pour former une butte (berm) qui sera plantée d’arbres et d’arbustes.
Conception et dimensionnement
La conception d’un réseau de swales commence par la topographie. Il faut d’abord déterminer les courbes de niveau du terrain, ce qui peut se faire avec un simple niveau à eau (deux piquets reliés par un tuyau transparent rempli d’eau) ou, plus confortablement, avec un niveau laser ou une application GPS. La précision requise est de l’ordre de 2 à 3 cm sur la longueur du fossé — toute erreur crée un point bas où l’eau se concentre et risque de déborder.
Les dimensions typiques d’un swale en contexte de jardin-forêt européen :
- Profondeur : 30 à 60 cm — suffisant pour stocker l’eau d’une pluie modérée sans créer un ouvrage disproportionné.
- Largeur au sommet : 60 à 120 cm — plus large que profond, en forme de cuvette évasée (pas en V), pour maximiser la surface d’infiltration.
- Profil : trapézoïdal ou en auge arrondie, avec des pentes latérales douces (1:1 à 1:2) qui ne s’effondrent pas.
- Espacement entre swales : il dépend de la pente et de la pluviométrie. En règle générale, l’espacement diminue quand la pente augmente. Sur une pente de 5 %, un espacement de 10 à 15 mètres est courant. Sur une pente de 15 %, on resserre à 5-8 mètres. Lancaster (2013) propose la formule empirique : espacement (m) ≈ profondeur du swale (m) × 50 / pente (%).
- Longueur : aussi longue que le terrain le permet. Un swale continu de 50 mètres est plus efficace que cinq swales de 10 mètres avec des interruptions.
La butte en aval : planter le berm
La terre excavée du fossé forme en aval une butte qui constitue l’espace de plantation le plus stratégique du système. Cette butte bénéficie d’un triple avantage : elle est surélevée (bon drainage pour les arbres fruitiers qui craignent l’engorgement racinaire), elle est enrichie (la terre de surface mélangée lors du creusement concentre la matière organique), et surtout elle est bordée en amont par le réservoir d’infiltration du swale, ce qui assure un apport hydrique latéral constant par capillarité.
On plante sur le berm les arbres et arbustes principaux du jardin-forêt. Les essences à enracinement profond — noyers, châtaigniers, pommiers sur franc — sont particulièrement indiquées car leurs racines plongent dans la zone humectée par l’infiltration du swale. Sur la face amont du berm (celle qui touche le fossé), on installe des plantes fixatrices d’azote (eleagnus, caragana, cytise) et des plantes couvre-sol qui stabilisent le talus : consoude, fraisier, trèfle blanc. Le fond du swale lui-même peut être ensemencé avec un mélange de graminées et de légumineuses rampantes qui tolèrent les submersions temporaires.
Mise en œuvre pratique
La construction d’un swale est un travail de terrassement accessible. Pour un jardin de moins de 1 000 m², la pelle et la pioche suffisent — c’est même préférable pour la précision. Pour des surfaces plus importantes, une mini-pelle mécanique permet de creuser 50 mètres linéaires en une demi-journée.
Étapes : tracer la courbe de niveau avec un niveau à eau, en marquant des piquets tous les 2-3 mètres. Creuser le fossé en commençant par un bout, en vérifiant l’horizontalité au fur et à mesure. Déposer la terre excavée immédiatement en aval, sans la tasser. Arrondir le profil du fond (pas d’angles vifs). Prévoir un déversoir de trop-plein à une extrémité : un point légèrement abaissé, empierré, qui évacue l’eau vers le swale inférieur en cas de pluie exceptionnelle. Sans déversoir, un swale en surcharge peut rompre sa butte et provoquer une érosion en cascade.
Limites et contre-indications
Le swale n’est pas une solution universelle. Il est contre-indiqué dans plusieurs situations : sur des pentes supérieures à 20-25 % (risque de glissement du berm saturé), sur des sols argileux très peu perméables (l’eau stagne dans le fossé pendant des jours, ce qui crée un milieu anaérobie et tue les racines), dans les zones à nappe phréatique affleurante (le sol est déjà saturé, le swale ne fait qu’aggraver l’engorgement), et dans les zones à risque sismique où des masses d’eau infiltrées peuvent déstabiliser un versant.
Sur sol argileux, une variante consiste à remplir le fond du swale de 15-20 cm de gravier ou de BRF grossier, qui maintient une aération même en période de stagnation. Mais si l’argile est trop compacte et que l’infiltration est inférieure à 5 mm/h, mieux vaut se tourner vers des mares ou des terrasses plutôt que vers des swales.
Le keyline design — sculpter le paysage pour distribuer l’eau
Le keyline design (conception par ligne-clé) est un système de gestion des eaux de surface développé par P.A. Yeomans dans les années 1950 sur sa propriété de Nevallan, en Nouvelle-Galles-du-Sud. Moins connu que les swales en Europe, il est pourtant plus subtil et souvent plus adapté aux grands terrains vallonnés.
Le concept de keypoint et de keyline
Yeomans observa que dans un paysage vallonné, l’eau se concentre naturellement dans les thalwegs (fonds de vallons) et manque sur les crêtes. Le keypoint (point-clé) est le point d’inflexion d’un vallon, là où la pente passe de concave (le vallon se creuse) à convexe (il s’aplatit vers la plaine). C’est le point le plus haut où l’eau commence à se concentrer de manière significative. La keyline est la courbe de niveau passant par ce keypoint.
L’idée de Yeomans est de cultiver le sol non pas parallèlement aux courbes de niveau (ce qui conserve l’eau là où elle est, c’est-à-dire dans les vallons), mais selon des lignes légèrement divergentes par rapport aux courbes de niveau, partant des vallons vers les crêtes. Ce léger angle — de l’ordre de 1 à 3° — suffit à redistribuer l’eau : au lieu de couler vers le fond du vallon, elle migre lentement vers les zones de crête, qui sont naturellement les plus sèches. Le résultat est une hydratation homogène de l’ensemble du terrain.
Application au jardin-forêt
Dans un jardin-forêt, le keyline design s’applique principalement à la disposition des lignes de plantation. En orientant les rangées d’arbres selon les lignes-clés plutôt que selon les courbes de niveau strictes, on favorise la redistribution de l’eau depuis les zones humides vers les zones sèches. Les allées entre les rangées, légèrement sous-solées au démarrage (un seul passage de sous-soleuse à la charrue Yeomans ou au ripper), créent des canaux d’infiltration préférentielle qui guident l’eau dans la direction souhaitée.
Cette approche est complémentaire des swales : les swales captent et infiltrent l’eau à une altitude donnée, le keyline redistribue l’eau latéralement entre les swales. Sur un terrain de plus de 2 000 m² avec un relief marqué, combiner les deux techniques produit un maillage hydraulique remarquablement efficace.
Les mares — écosystèmes aquatiques au service du jardin
La mare est l’ouvrage hydraulique le plus polyvalent du jardin-forêt. Elle stocke l’eau, régule le microclimat, héberge une biodiversité auxiliaire, et peut servir de source d’irrigation. Pourtant, elle reste sous-estimée dans de nombreux projets, reléguée au rang d’ornement alors qu’elle devrait être un élément structurant du design.
Fonctions hydrologiques
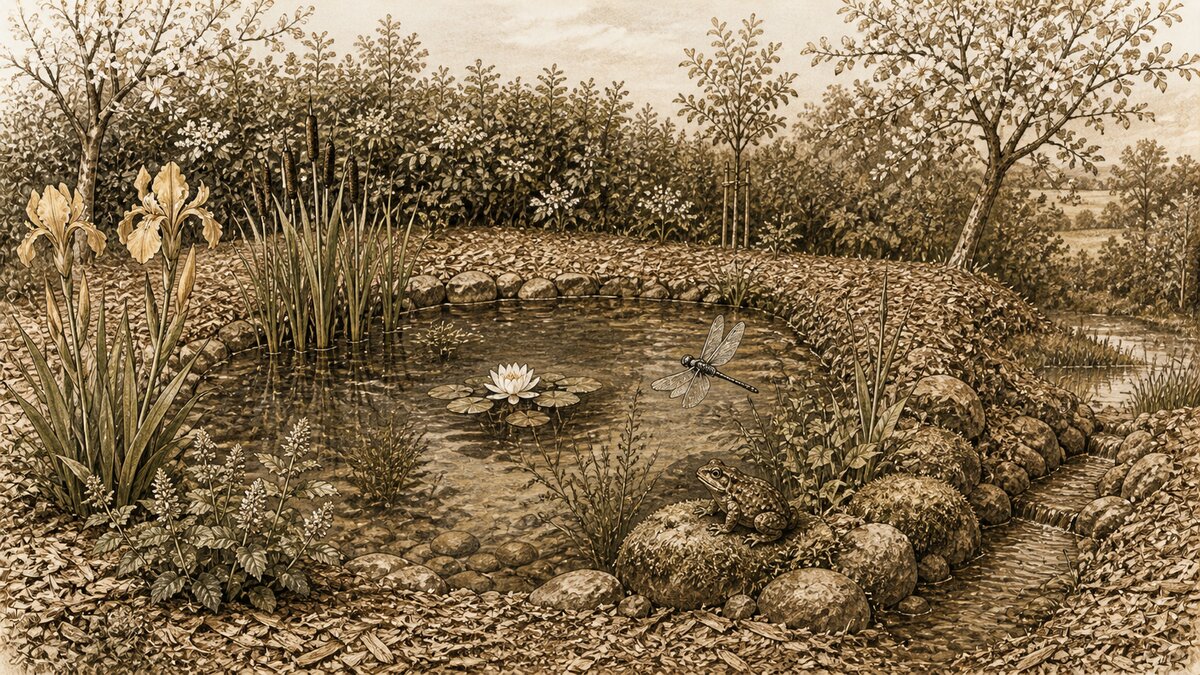
Une mare de 20 m² et 1 mètre de profondeur stocke environ 15 à 18 m³ d’eau, soit l’équivalent de 15 à 18 mm de pluie tombée sur 1 000 m². Placée en point bas du terrain, elle collecte le ruissellement résiduel (celui qui dépasse la capacité d’infiltration des swales) et le conserve pour les périodes sèches. Dans un système bien conçu, le trop-plein de la mare est dirigé vers une zone d’infiltration en aval — un dernier swale ou un bassin végétalisé — de sorte qu’aucune eau ne quitte le terrain.
La mare peut alimenter un système d’irrigation gravitaire par un simple tuyau placé à 20-30 cm sous le niveau normal de l’eau. Un dénivelé de seulement 1 mètre entre la mare et le point d’irrigation suffit pour obtenir un débit de 3 à 5 litres par minute par goutte-à-goutte, sans aucune pompe. Cette irrigation passive, conçue une fois et fonctionnant sans énergie, est l’une des solutions les plus élégantes pour les jardins-forêts en pente.
Régulation du microclimat
L’eau possède une capacité thermique volumique de 4 180 J/(kg·K), quatre fois supérieure à celle du sol et mille fois supérieure à celle de l’air. Une mare de 15 m³ stocke autant de chaleur qu’un mur de pierre de 60 tonnes. Le jour, elle absorbe la chaleur excédentaire ; la nuit, elle la restitue lentement, atténuant les écarts de température dans un rayon de 5 à 10 mètres. En période de gel printanier, cette inertie thermique peut faire la différence entre un verger qui gèle et un verger qui passe la nuit : l’air au-dessus et autour de la mare reste 1 à 3 °C plus chaud que l’air ambiant (Geiger et al., 2003).
L’évaporation de surface contribue également au refroidissement estival. Par journée chaude et sèche, une mare de 20 m² évapore 10 à 15 litres d’eau, absorbant environ 25 MJ d’énergie sous forme de chaleur latente — l’équivalent d’un climatiseur de 2 kW fonctionnant pendant 3 heures. Les arbres fruitiers situés à proximité bénéficient de cet air légèrement plus frais et plus humide.
Biodiversité auxiliaire
Une mare dans un jardin-forêt devient rapidement un pôle de biodiversité. Les amphibiens (grenouilles, tritons, crapauds) s’y reproduisent et consomment des quantités considérables de limaces, d’escargots et d’insectes ravageurs. Un couple de crapauds communs (Bufo bufo) consomme environ 10 000 invertébrés par saison (Lescure et de Massary, 2012). Les libellules, dont les larves sont aquatiques, sont des prédateurs redoutables de moustiques, pucerons volants et mouches. Les couleuvres à collier, attirées par les amphibiens, régulent les populations de rongeurs.
Pour maximiser la biodiversité, la mare doit présenter des profondeurs variées (une zone littorale de 10-20 cm pour la reproduction des amphibiens, une zone profonde de 80-120 cm qui ne gèle pas entièrement en hiver), des berges en pente douce (maximum 30°) et une végétation aquatique diversifiée : plantes émergentes (iris des marais, massettes), plantes flottantes (nénuphars), plantes submergées (myriophylles, potamots). On évitera l’introduction de poissons, qui dévorent les larves d’amphibiens et de libellules et détruisent la chaîne trophique auxiliaire.
Conception et étanchéité
En sol argileux (> 30 % d’argile), une mare peut être simplement creusée et compactée : l’argile gonflante forme un fond naturellement étanche après quelques cycles de remplissage. En sol sableux ou limoneux, une étanchéité artificielle est nécessaire. Les solutions, par ordre de durabilité : la bentonite (argile gonflante en poudre, mélangée au sol sur 15 cm, efficace pendant 20-50 ans), la bâche EPDM (caoutchouc synthétique, durée de vie 30-50 ans, matériau inerte), le béton armé (permanent mais coûteux et peu esthétique). On évitera les bâches PVC, moins durables et libérant des plastifiants dans l’eau.
Le mulch — couverture permanente du sol
Le mulch (ou paillage) est la technique de rétention hydrique la plus simple, la moins coûteuse et la plus universellement applicable. Un sol nu perd de l’eau par évaporation directe : sous un soleil d’été, un sol brun exposé peut perdre 5 à 8 mm d’eau par jour. Sous 10 cm de mulch organique, cette perte tombe à 1,5-3 mm — une réduction de 50 à 70 % (Mulumba et Lal, 2008).
Mécanismes de rétention
Le mulch agit sur l’eau par quatre voies. Premièrement, il réduit l’évaporation en interposant une couche isolante entre le sol humide et l’atmosphère sèche. Deuxièmement, il atténue les températures de surface : un sol paillé reste 5 à 10 °C plus frais en été qu’un sol nu, ce qui réduit la pression de vapeur à la surface et donc le flux évaporatif. Troisièmement, il protège la structure du sol contre la battance, maintenant une infiltration élevée. Quatrièmement, en se décomposant, il nourrit la matière organique du sol et la faune qui construit la porosité — c’est un investissement à long terme dans la capacité de stockage hydrique du sol.
Types de mulch et épaisseurs recommandées
Tous les mulchs ne se valent pas en termes de rétention hydrique. Le BRF (Bois Raméal Fragmenté), déjà traité en détail dans un article précédent de cette série, est le roi du mulch forestier : ses copeaux de rameaux de moins de 7 cm de diamètre, riches en lignine jeune et en nutriments, sont colonisés par les champignons saprophytes qui construisent un réseau mycélien hydrophile dans l’épaisseur même du mulch. Épaisseur recommandée : 8 à 15 cm, renouvelés tous les 1 à 2 ans.
La paille de céréales est plus facile à se procurer et efficace en couverture : 15 à 20 cm d’épaisseur, elle se tasse à 8-10 cm en quelques semaines. Son rapport C/N élevé (80-100) peut induire une faim d’azote temporaire si elle est incorporée au sol, mais en surface elle ne pose pas ce problème. Les feuilles mortes, abondantes en jardin-forêt, constituent un mulch gratuit et naturellement adapté : 10 à 15 cm d’épaisseur, idéalement broyées ou mélangées à du BRF pour éviter qu’elles ne forment un tapis imperméable (les feuilles de chêne et de hêtre, riches en tanins, se décomposent lentement et peuvent créer un matelas compact).
Le mulch vivant — plantes couvre-sol permanentes — est la solution la plus élégante en jardin-forêt établi. Le trèfle blanc (Trifolium repens), la consoude naine (Symphytum ibericum), le fraisier des bois (Fragaria vesca), la bugle rampante (Ajuga reptans) forment un tapis dense qui protège le sol tout en fixant l’azote (pour le trèfle) ou en remontant les nutriments profonds (pour la consoude). Le mulch vivant transpire et consomme donc un peu d’eau, mais sa couverture racinaire améliore la structure du sol et son couvert foliaire réduit l’évaporation directe — le bilan net est positif.
L’arbre, pompe hydraulique et parasol
L’arbre n’est pas seulement un consommateur d’eau. Il est aussi un redistributeur, un condenseur et un protecteur. Comprendre ces fonctions permet de placer les arbres là où ils rendront le plus de services hydrologiques.
La redistribution hydraulique
Le phénomène de redistribution hydraulique (hydraulic redistribution), décrit par Richards et Caldwell (1987) puis largement confirmé depuis, bouleverse l’idée que les arbres ne font que « pomper » l’eau du sol. La nuit, lorsque la transpiration cesse, les racines profondes des arbres qui atteignent des couches humides transfèrent passivement l’eau vers les couches superficielles sèches, par simple gradient de potentiel hydrique. Ce flux inverse, appelé hydraulic lift lorsqu’il est ascendant, peut représenter 30 à 100 litres par nuit pour un arbre de taille moyenne (Caldwell et al., 1998).
Cette eau « remontée » ne profite pas seulement à l’arbre lui-même : elle humecte le sol superficiel autour des racines, bénéficiant aux plantes voisines de la strate herbacée et arbustive. Dans un jardin-forêt, les arbres profondément enracinés — noyers, châtaigniers, chênes, robiniers — fonctionnent littéralement comme des pompes qui redistribuent l’eau des profondeurs vers la surface, alimentant les cultures intercalaires pendant les périodes sèches. Cet effet, invisible et gratuit, est l’un des avantages les plus sous-estimés de l’agroforesterie.
L’ombre et la réduction de l’évapotranspiration
Un arbre adulte projette une ombre qui réduit le rayonnement solaire au sol de 60 à 85 % selon la densité du feuillage. Sous cette ombre, l’évapotranspiration potentielle (ETP) diminue dans les mêmes proportions. En pratique, les cultures sous couvert forestier consomment 30 à 50 % d’eau en moins que les mêmes cultures en plein soleil (Ong et Huxley, 1996). Les salades, les épinards, les framboisiers, les groseilliers — toutes ces plantes de mi-ombre qui constituent la strate basse du jardin-forêt — prospèrent avec nettement moins d’eau qu’en situation exposée.
L’ombre réduit aussi la température du sol, ce qui ralentit la décomposition de la matière organique et donc la perte de carbone : un cercle vertueux où l’ombre préserve le stock de MOS qui préserve la rétention hydrique qui préserve la croissance qui fournit l’ombre.
L’effet brise-vent
Le vent est un facteur d’évapotranspiration majeur, souvent sous-estimé. Un vent de 20 km/h double l’ETP par rapport à une situation calme. Les haies et les lisières du jardin-forêt réduisent la vitesse du vent sur une distance égale à 10 à 20 fois leur hauteur (Caborn, 1965). Une haie de 5 mètres de haut protège donc une bande de 50 à 100 mètres en aval. Dans cette zone abritée, l’ETP est réduite de 20 à 30 %, ce qui représente une économie d’eau considérable sur une saison entière.
C’est pourquoi la conception du jardin-forêt commence par les lisières : avant de planter l’intérieur, on établit les haies périphériques qui créeront l’abri. Une haie vive médicinale, telle que décrite dans l’article précédent de cette série, remplit cette fonction tout en produisant des plantes utiles.
La condensation occulte et la captation de brouillard
Dans les régions où le brouillard est fréquent — zones côtières, vallées montagnardes, piémonts — les arbres captent une quantité d’eau significative par condensation sur leur feuillage. Ce phénomène, appelé précipitation occulte ou fog drip, peut représenter 5 à 30 % des apports hydriques annuels dans certaines forêts de nuages tropicales (Bruijnzeel et al., 2011), et 2 à 10 % dans les forêts tempérées côtières.
En contexte de jardin-forêt montagnard, les conifères à feuillage persistant (pins, épicéas, ifs) sont les capteurs de brouillard les plus efficaces en raison de leur grande surface foliaire et de la finesse de leurs aiguilles. Planter quelques conifères en bordure exposée au vent dominant permet de capter cette eau atmosphérique qui s’écoule le long des troncs et des branches jusqu’au sol.
Gestion de l’eau en contexte montagnard
Le jardin-forêt en montagne fait face à des contraintes hydrologiques spécifiques qui demandent des adaptations. La pente amplifie le ruissellement, le sol est souvent mince, le gel hivernal bloque le cycle de l’eau pendant des mois, et les précipitations arrivent fréquemment sous forme de neige ou d’averses brutales. Pourtant, de nombreux jardins-forêts montagnards prospèrent, des Alpes au Caucase en passant par les Pyrénées et les Cévennes, en tirant parti de ces contraintes plutôt qu’en les subissant.
Gérer la pente : terrasses et swales adaptés
Au-delà de 15-20 % de pente, les swales classiques deviennent risqués : le poids de la butte saturée d’eau peut provoquer des glissements. Deux alternatives s’offrent au jardinier montagnard.
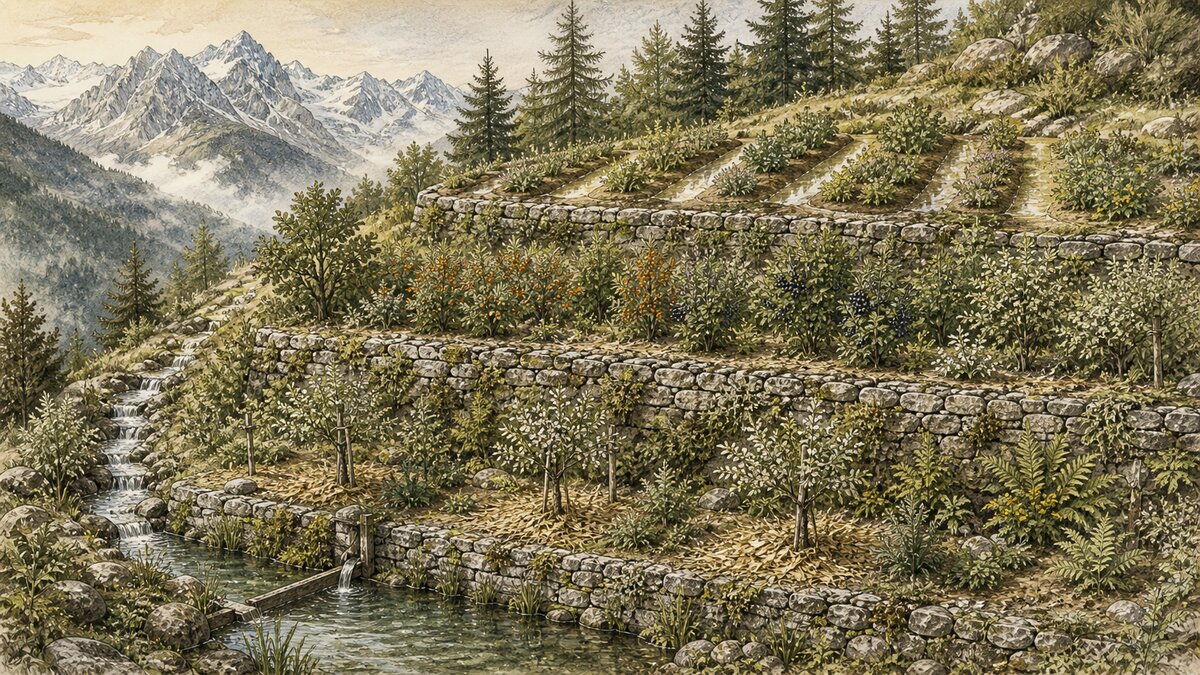
La première est la terrasse, technique millénaire pratiquée dans toutes les montagnes du monde. Contrairement au swale, la terrasse est un replat créé en déblai-remblai, avec un mur de soutènement en aval (pierres sèches, rondins, gabions). La terrasse est horizontale ou très légèrement en pente inverse (vers la montagne), ce qui piège l’eau dans la plate-bande de culture. En montagne méditerranéenne, les restanques provençales ou les faïsses cévenoles témoignent de l’efficacité de ce système sur des siècles d’usage.
La seconde est le micro-swale : un fossé très peu profond (15-20 cm), étroit (30-40 cm), qui ne retient qu’une lame d’eau modeste et ne crée pas de surcharge pondérale. En série rapprochée (tous les 3-4 mètres), ces micro-swales fragmentent le ruissellement sans risque de glissement. On les combine avantageusement avec des haies de niveau — des lignes d’arbustes plantés sur la courbe de niveau — qui stabilisent le sol par leurs racines et piègent les sédiments.
Le gel : contrainte et opportunité
En montagne, le sol gèle en surface pendant plusieurs mois, ce qui bloque toute infiltration. L’eau de pluie ou de fonte des neiges qui arrive sur un sol gelé ruisselle intégralement, avec un pouvoir érosif décuplé par la pente. Ce phénomène explique pourquoi les torrents de montagne sont si violents au dégel printanier.
La parade est le mulch hivernal. Une couche épaisse de paille, de feuilles mortes ou de BRF (20-30 cm) posée avant les premières gelées isole le sol et retarde — parfois empêche — la prise en gel. Sous 25 cm de mulch, un sol reste à une température proche de 0 °C même quand l’air descend à -15 °C, car la décomposition microbienne dans le mulch produit un léger dégagement de chaleur et la couche d’air piégée entre les brins agit comme un isolant (R-value d’environ 0,5 à 1 m²·K/W pour 20 cm de paille). Le sol non gelé continue d’infiltrer l’eau, même au cœur de l’hiver.
La neige elle-même est un isolant remarquable : un manteau neigeux de 30 cm maintient la surface du sol à 0 °C quelles que soient les températures de l’air. Le jardinier montagnard avisé ne déneige pas ses parcelles — il laisse la neige protéger le sol. Au printemps, la fonte lente et progressive alimente le sol en eau sur plusieurs semaines, bien plus efficacement qu’une pluie brutale.
Le drainage : gérer l’excès d’eau
Paradoxalement, le jardin-forêt montagnard peut souffrir d’excès d’eau autant que de sécheresse. En fond de vallée, en ubac (versant nord), ou sur des replats argileux, l’eau stagne et crée des conditions d’hydromorphie néfastes pour la plupart des arbres fruitiers. Le cerisier, le pommier et le poirier ne tolèrent pas un engorgement racinaire prolongé — leurs racines asphyxient en quelques semaines dans un sol saturé.
Le drainage s’impose alors, mais pas n’importe lequel. Un drain enterré classique (tuyau perforé dans un lit de gravier) évacue l’eau rapidement et la perd pour le système. En jardin-forêt, on préfère le drainage en surface vers une mare de rétention, qui stocke l’excédent pour l’été. Un fossé de drainage peu profond (20-30 cm), avec une pente longitudinale de 1-2 %, guide l’eau excédentaire vers la mare sans la gaspiller. On peut aussi créer des buttes de culture surélevées (de 40 à 60 cm) sur les zones humides : les racines des arbres restent au-dessus du niveau de saturation tandis que l’eau circule librement dans les allées basses.
Espèces adaptées aux conditions montagnardes
Le choix des essences est déterminant en montagne. Certains arbres tolèrent remarquablement bien l’alternance de sol saturé au printemps et de sécheresse estivale : le sureau noir (Sambucus nigra), l’aulne glutineux (Alnus glutinosa), le saule marsault (Salix caprea), le frêne commun (Fraxinus excelsior). Pour la strate fruitière, les porte-greffes font la différence : un pommier sur M106 ou sur franc tolère des sols plus humides qu’un pommier sur M9 ; un prunier sur Myrobolan supporte les argiles lourdes.
En altitude (au-dessus de 800-1 000 m), les essences méditerranéennes (figuier, grenadier, olivier) sont exclues par le gel, mais les espèces continentales et boréales offrent des alternatives productives : amélanchier (Amelanchier alnifolia), argousier (Hippophae rhamnoides), aronia (Aronia melanocarpa), camerisier (Lonicera caerulea), cornouiller mâle (Cornus mas), sorbier des oiseleurs (Sorbus aucuparia). Ces espèces, toutes rustiques jusqu’à -25 °C et au-delà, ont des besoins hydriques modestes et des enracinements profonds qui exploitent les réserves du sol en été.
Besoins hydriques comparés — jardin-forêt contre potager classique
La comparaison des besoins en eau entre un jardin-forêt et un potager classique est l’un des arguments les plus convaincants en faveur de l’agroforesterie. Les chiffres, issus d’observations de terrain et de la littérature scientifique, sont sans appel.
Le potager classique : un système hydrovore
Un potager conduit de manière conventionnelle — sol nu entre les rangs, arrosage au jet ou au goutte-à-goutte, cultures annuelles renouvelées chaque saison — consomme entre 400 et 800 litres d’eau par mètre carré et par saison de croissance (mai à septembre en climat tempéré), selon les cultures, le sol et le climat (Steduto et al., 2012). Les cultures les plus gourmandes — tomates, courgettes, haricots — dépassent 600 L/m². À l’échelle d’un potager de 100 m², cela représente 40 à 80 m³ d’eau par an, soit l’équivalent de la consommation domestique annuelle d’une personne.
Plusieurs facteurs expliquent cette consommation élevée. Le sol nu entre les rangs perd de l’eau par évaporation directe (30 à 50 % de l’eau apportée). Les cultures annuelles ont des systèmes racinaires superficiels (15-30 cm) qui n’exploitent qu’une fraction du profil hydrique. L’absence de couvert arboré expose le sol et les plantes au plein rayonnement solaire et au vent, maximisant l’ETP. Enfin, le travail du sol (bêchage, binage) détruit les agrégats et la macroporosité, réduisant la capacité de stockage.
Le jardin-forêt établi : vers l’autonomie hydrique
Un jardin-forêt de plus de cinq ans, bien conçu et bien paillé, ne nécessite typiquement aucune irrigation — zéro — pour la majorité de ses composantes : arbres fruitiers, arbustes à baies, plantes vivaces de la strate herbacée (Crawford, 2010). Seules les cultures annuelles intercalaires (salades, courges), si l’on en maintient, peuvent nécessiter un apport modeste de 50 à 150 L/m²/saison, soit 5 à 10 fois moins que dans un potager classique.
Cette autonomie s’explique par la somme de tous les mécanismes décrits dans cet article : un sol riche en matière organique (6-10 % de MOS dans l’horizon A contre 2-3 % en potager), une infiltration élevée (pas de croûte de battance, pas de compaction), un mulch permanent qui réduit l’évaporation de 50-70 %, une canopée qui diminue le rayonnement au sol de 60-85 %, un effet brise-vent qui réduit l’ETP de 20-30 %, et des systèmes racinaires profonds (2-5 m pour les arbres) qui accèdent à des réserves d’eau inaccessibles aux plantes annuelles.
Bilan chiffré comparatif
Comparaison sur une saison de croissance (mai-septembre) pour 100 m², en climat tempéré océanique dégradé (600-800 mm de pluie annuelle, 350-450 mm en saison de croissance) :
- Potager classique sol nu : irrigation nécessaire 50-70 m³. Ruissellement : 15-25 % des pluies. Stock d’eau utile dans le sol (0-60 cm) : 40-60 mm.
- Potager paillé, non travaillé : irrigation nécessaire 20-40 m³. Ruissellement : 5-10 %. Stock d’eau utile : 60-90 mm.
- Jardin-forêt établi (5-10 ans) : irrigation nécessaire 0-10 m³ (cultures annuelles uniquement). Ruissellement : 2-5 %. Stock d’eau utile (0-150 cm, grâce aux racines profondes) : 120-200 mm.
La différence est d’un facteur 5 à 10 sur les besoins en irrigation. Rapportée au coût de l’eau (3 à 5 €/m³ en eau potable, 0,5 à 1 €/m³ en eau de forage), l’économie est substantielle ; mais le véritable gain est la résilience. Un potager classique privé d’irrigation pendant deux semaines en juillet est dévasté. Un jardin-forêt établi traverse la même période sans dommage visible, ses arbres puisant dans les réserves profondes et redistribuant l’eau par hydraulic lift.
La phase d’établissement : un investissement initial
Il faut nuancer ce tableau idyllique par une réalité : pendant les trois à cinq premières années, le jardin-forêt a besoin d’eau. Les jeunes arbres, avec leurs systèmes racinaires encore superficiels, sont vulnérables à la sécheresse estivale. Un arrosage d’implantation de 20 à 40 litres par arbre, une à deux fois par semaine de juin à août, est généralement nécessaire les deux ou trois premières années. Le mulch épais (15-20 cm) autour de chaque arbre réduit considérablement ce besoin, mais ne l’élimine pas entièrement.
La transition vers l’autonomie hydrique est progressive. La première année, on arrose les arbres. La deuxième, on réduit de moitié. La troisième, on n’arrose plus que pendant les canicules. À partir de la cinquième année, la canopée se ferme, le sol s’enrichit en matière organique, les racines atteignent les horizons profonds, et le système devient largement autosuffisant. C’est un investissement dans le temps : chaque litre d’eau versé pendant l’établissement en économise des centaines dans les décennies qui suivent.
Observer et mesurer l’eau dans son jardin
Avant de creuser le moindre swale ou de poser le moindre mulch, il faut observer. Un an d’observation attentive du comportement de l’eau sur le terrain vaut mieux que tous les manuels de permaculture. Où l’eau stagne-t-elle après une forte pluie ? Où s’écoule-t-elle ? Quelles zones sèchent en premier en été ? Où la végétation spontanée est-elle la plus luxuriante (signe d’humidité souterraine) ? Où les mousses et les joncs poussent-ils (signe d’engorgement) ?
Outils simples
Le pluviomètre, outil le plus élémentaire, permet de savoir combien d’eau le terrain reçoit réellement. Les données météo officielles proviennent de stations parfois éloignées ; en montagne, la pluviométrie peut varier du simple au double entre deux versants distants de 500 mètres. Un pluviomètre en plastique coûte quelques euros et fournit des données irremplaçables.
Le test du bocal renseigne sur la texture du sol. Remplir un bocal d’un tiers de terre et de deux tiers d’eau, agiter vigoureusement, laisser décanter 24 heures. Le sable se dépose en minutes (couche du bas), le limon en heures (couche intermédiaire), l’argile en 24 heures (couche du haut). La matière organique flotte. Les proportions approximatives de chaque couche renseignent sur la capacité de rétention du sol : argile > limon > sable.
Le test d’infiltration se fait avec une boîte de conserve sans fond enfoncée de 5 cm dans le sol. Remplir d’eau jusqu’à 10 cm de hauteur, chronométrer le temps de vidange. Moins de 15 minutes : sol très drainant, mulch et matière organique prioritaires. De 15 à 60 minutes : sol équilibré, idéal. Plus de 60 minutes : sol compact ou argileux, drainage et décompaction nécessaires.
Bio-indicateurs
Les plantes spontanées sont les meilleurs indicateurs de l’état hydrique du sol. La présence de joncs (Juncus spp.), de reine-des-prés (Filipendula ulmaria), de salicaire (Lythrum salicaria) ou de prêle (Equisetum spp.) signale un sol humide à engorgé. Le thym (Thymus spp.), l’hélianthème (Helianthemum spp.) et la potentille printanière (Potentilla verna) indiquent un sol sec et drainant. La consoude (Symphytum officinale) et la grande ortie (Urtica dioica) signalent un sol frais, riche et bien équilibré — exactement ce que l’on vise dans un jardin-forêt.
Cartographier les zones du terrain selon la végétation spontanée permet de produire une « carte hydrique » empirique qui guide le placement des espèces et des ouvrages. Les zones humides accueilleront les saules, les aulnes et la mare. Les zones sèches recevront les swales et les espèces xérophiles (argousier, amandier, figuier en climat doux). Les zones équilibrées constitueront le cœur productif du jardin-forêt.
Synthèse — concevoir un système hydrique résilient
La gestion de l’eau dans un jardin-forêt n’est pas une technique parmi d’autres : c’est le cadre dans lequel toutes les autres techniques prennent sens. Un arbre planté sans réflexion sur l’eau est un arbre qui dépendra de l’arrosoir. Un arbre planté en aval d’un swale, sur un berm paillé, à l’abri d’une haie brise-vent, dans un sol enrichi en matière organique, est un arbre qui s’abreuvera seul pendant des décennies.
La hiérarchie des interventions peut se résumer en quatre principes, par ordre de priorité :
Premièrement, réduire les besoins. Choisir des espèces adaptées au climat local et au type de sol. Planter dense pour créer de l’ombre rapidement. Installer des haies brise-vent en périphérie. Couvrir le sol en permanence (mulch ou couvre-sol vivant).
Deuxièmement, capter toute l’eau qui arrive. Maximiser l’infiltration par le non-travail du sol et l’enrichissement en matière organique. Creuser des swales sur les pentes. Collecter l’eau de toiture dans des cuves ou la diriger vers des zones d’infiltration.
Troisièmement, stocker. Augmenter la capacité de rétention du sol (matière organique, structure, faune). Créer des mares pour le stockage de surface. Laisser les arbres jouer leur rôle de redistribution hydraulique depuis les couches profondes.
Quatrièmement, distribuer. Utiliser le keyline design pour répartir l’eau entre vallons et crêtes. Irriguer par gravité depuis les mares. Prévoir des déversoirs et des connexions entre les ouvrages pour que le trop-plein d’un élément alimente l’élément suivant.
Un jardin-forêt bien conçu est un système où chaque goutte de pluie est utilisée plusieurs fois : interceptée par la canopée, elle tombe au sol, traverse le mulch, s’infiltre dans les agrégats, est absorbée par les racines, transpirée par les feuilles, condensée sur la canopée voisine, et le cycle recommence. Aucune eau ne quitte le système sous forme de ruissellement ; aucune eau n’est gaspillée en évaporation inutile. Ce n’est pas une utopie : c’est le fonctionnement normal d’une forêt. Le jardin-forêt ne fait que le reproduire, en y ajoutant une production alimentaire.
Dans un contexte de raréfaction de la ressource en eau et d’intensification des épisodes de sécheresse, cette approche n’est plus seulement écologique : elle est stratégique. Un jardin-forêt qui fonctionne avec la seule eau du ciel est un jardin qui ne craint ni les restrictions d’arrosage, ni les étés caniculaires, ni la hausse du prix de l’eau. C’est un système conçu non pas contre le climat, mais avec lui — et c’est dans cette alliance que réside sa résilience.
Bibliographie
- Aussenac G. (1968). Interception des précipitations par le couvert forestier. Annales des sciences forestières, 25(3), 135-156.
- Barthès B., Roose E. (2002). Aggregate stability as an indicator of soil susceptibility to runoff and erosion. Catena, 47(2), 133-149.
- Beven K., Germann P. (1982). Macropores and water flow in soils. Water Resources Research, 18(5), 1311-1325.
- Bruijnzeel L.A., Scatena F.N., Hamilton L.S. (2011). Tropical Montane Cloud Forests: Science for Conservation and Management. Cambridge University Press.
- Caborn J.M. (1965). Shelterbelts and Windbreaks. Faber and Faber, Londres.
- Caldwell M.M., Dawson T.E., Richards J.H. (1998). Hydraulic lift: consequences of water efflux from the roots of plants. Oecologia, 113(2), 151-161.
- Cosandey C., Robinson M. (2000). Hydrologie continentale. Armand Colin, Paris.
- Crawford M. (2010). Creating a Forest Garden: Working with Nature to Grow Edible Crops. Green Books.
- Geiger R., Aron R.H., Todhunter P. (2003). The Climate Near the Ground. 6e éd., Rowman & Littlefield.
- Herbst M., Rosier P.T.W., McNeil D.D., Harding R.J., Gowing D.J. (2007). Seasonal variability of interception evaporation from the canopy of a mixed deciduous forest. Agricultural and Forest Meteorology, 148(11), 1655-1667.
- Hudson B.D. (1994). Soil organic matter and available water capacity. Journal of Soil and Water Conservation, 49(2), 189-194.
- Jacke D., Toensmeier E. (2005). Edible Forest Gardens. 2 vol., Chelsea Green Publishing.
- Lal R. (2004). Soil carbon sequestration impacts on global climate change and food security. Science, 304(5677), 1623-1627.
- Lancaster B. (2013). Rainwater Harvesting for Drylands and Beyond. Vol. 2, 2e éd., Rainsource Press.
- Le Bissonnais Y. (1996). Aggregate stability and assessment of soil crustability and erodibility. European Journal of Soil Science, 47(4), 425-437.
- Lescure J., de Massary J.-C. (2012). Atlas des amphibiens et reptiles de France. Biotope / MNHN.
- Mollison B. (1988). Permaculture: A Designers’ Manual. Tagari Publications.
- Mulumba L.N., Lal R. (2008). Mulching effects on selected soil physical properties. Soil and Tillage Research, 98(1), 106-111.
- Oades J.M. (1984). Soil organic matter and structural stability. Plant and Soil, 76(1-3), 319-337.
- Ong C.K., Huxley P. (1996). Tree–Crop Interactions: A Physiological Approach. CAB International.
- Richards J.H., Caldwell M.M. (1987). Hydraulic lift: substantial nocturnal water transport between soil layers by Artemisia tridentata roots. Oecologia, 73(4), 486-489.
- Shipitalo M.J., Butt K.R. (1999). Occupancy and geometrical properties of Lumbricus terrestris burrows. Pedobiologia, 43(6), 782-794.
- Steduto P., Hsiao T.C., Fereres E., Raes D. (2012). Crop yield response to water. FAO Irrigation and Drainage Paper 66, Rome.
- Wright S.F., Upadhyaya A. (1998). A survey of soils for aggregate stability and glomalin, a glycoprotein produced by hyphae of arbuscular mycorrhizal fungi. Plant and Soil, 198(1), 97-107.
- Yeomans P.A. (1954). The Keyline Plan. P.A. Yeomans, Sydney.