Introduction — éloge de la pourriture
Dans un verger conventionnel, un arbre mort est un échec. On l’arrache, on le brûle, on le remplace. Dans un jardin-forêt, un arbre mort est un commencement. Le tronc qui se dresse encore, écorce décollée et branches dénudées, le fût couché au sol que les mousses recouvrent, la souche qui s’effrite lentement sous les doigts — ce ne sont pas des déchets, ce sont des infrastructures. Le bois mort abrite, nourrit et fait vivre un quart de la biodiversité forestière totale. Sans lui, le jardin-forêt est un décor ; avec lui, c’est un écosystème.
Les forêts naturelles tempérées contiennent entre 20 et 200 m³ de bois mort par hectare, selon leur âge et leur histoire. Une forêt ancienne non exploitée — la forêt de Białowieża en Pologne, les réserves intégrales de Fontainebleau, les gorges de la Vis dans les Cévennes — peut en contenir 100 à 150 m³/ha, soit 10 à 15 % de la biomasse ligneuse totale (Christensen et al., 2005). À l’inverse, les forêts gérées de production n’en conservent que 5 à 15 m³/ha, et les vergers conventionnels, zéro. Cet écart a des conséquences écologiques massives : des milliers d’espèces dépendent du bois mort à un stade ou un autre de leur cycle de vie, et leur disparition entraîne un effondrement en cascade des services écosystémiques qu’elles rendent — pollinisation, décomposition, lutte antiparasitaire, fertilité du sol.
Cet article explore la vie qui naît de la mort d’un arbre dans le jardin-forêt. Nous suivrons le processus de décomposition du bois depuis l’arbre sénescent jusqu’au retour complet à l’humus, en identifiant à chaque étape les organismes qui interviennent et les fonctions qu’ils remplissent. Nous accorderons une attention particulière aux coléoptères saproxyliques — ces insectes dont les larves se nourrissent de bois mort et qui constituent l’un des groupes les plus menacés de la faune européenne — et aux champignons polypores, dont certains (amadouvier, reishi, chaga) possèdent des propriétés médicinales documentées. Nous verrons enfin comment intégrer consciemment le bois mort dans le design du jardin-forêt, non comme un résidu négligé mais comme un élément fonctionnel au même titre qu’un swale ou une mare.
La sénescence de l’arbre — mourir n’est pas simple
Un arbre ne meurt pas d’un coup. La sénescence est un processus lent, progressif, qui peut s’étaler sur des décennies. Un vieux chêne pédonculé de trois cents ans commence à mourir par le sommet de sa couronne — c’est le phénomène de « descente de cime » (crown dieback) — tandis que les branches basses, plus proches des réserves racinaires, restent vigoureuses. Cette mort partielle crée un arbre-habitat d’une valeur écologique incomparable : il porte simultanément du bois vivant, du bois mort aérien, des cavités, des fentes d’écorce, des écoulements de sève fermentée, des champignons, des lichens — autant de micro-habitats distincts pour des communautés d’organismes différentes.
Les micro-habitats de l’arbre sénescent
Les écologues forestiers ont dénombré et classifié les micro-habitats portés par les arbres vivants et sénescents. La classification de Larrieu et al. (2018), adoptée comme référence en écologie forestière européenne, distingue 15 types de micro-habitats dendro-microhabitats (DMH), regroupés en sept catégories : cavités (trous de pics, cavités de base, cavités de branche), blessures et bois exposé (plages d’aubier nu, fentes), excroissances (loupes, broussins, polypores), épiphytes (mousses, lichens, fougères, gui), structures d’écorce (écorce décollée, écorce crevassée), nids (rapaces, cigognes) et coulées de sève.
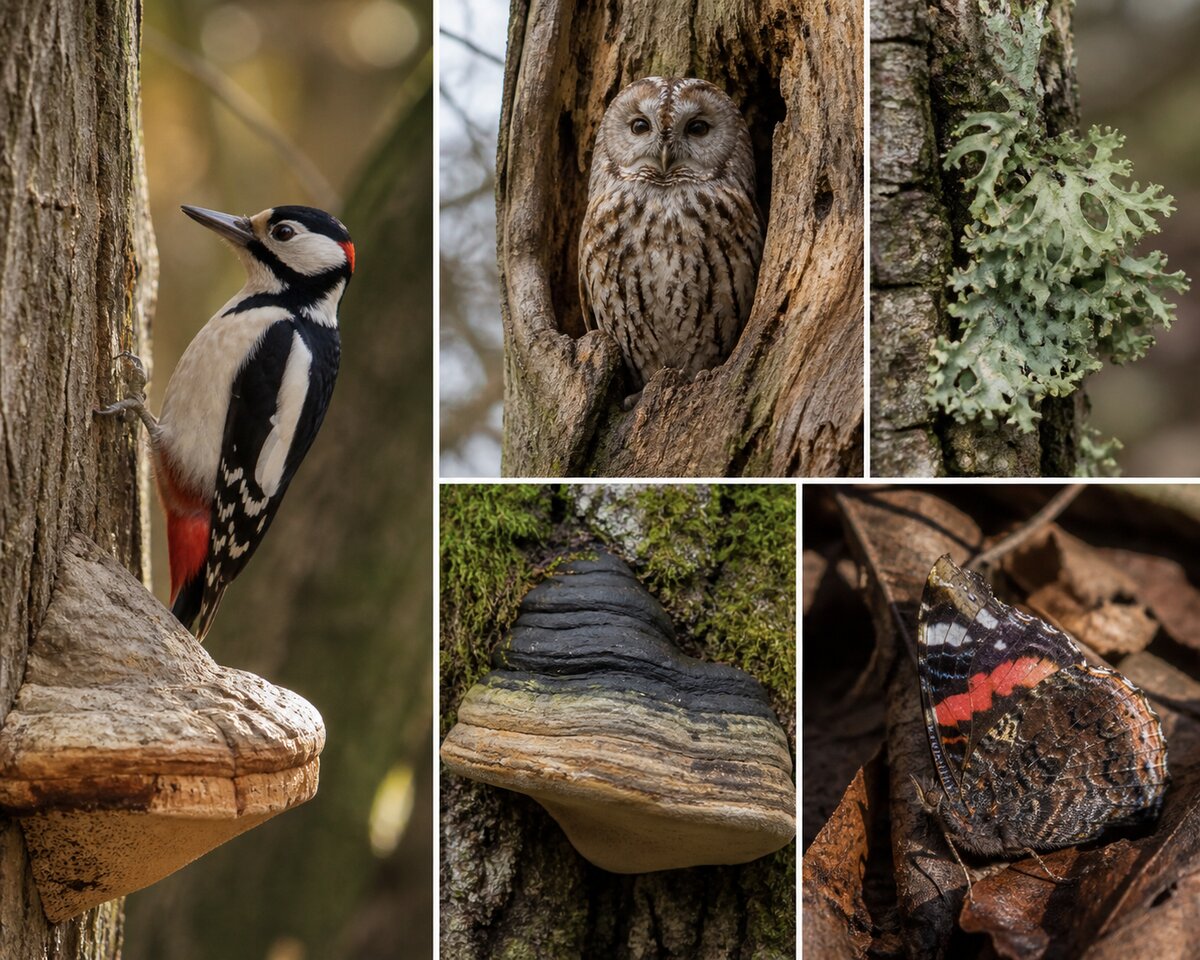
Chaque type de DMH héberge une communauté spécifique. Les cavités de pics abritent des chauves-souris, des chouettes, des loirs, des guêpes solitaires et des coléoptères cavernicoles. L’écorce décollée sert de refuge hivernal aux papillons (paon du jour, petite tortue), aux chrysopes et aux coccinelles — des auxiliaires précieux pour le jardin-forêt. Les fentes du bois humide hébergent des larves de syrphes du genre Myathropa, dont les adultes sont d’excellents pollinisateurs. Les coulées de sève fermentée attirent les cétoines (Cetonia aurata), dont les larves décomposent le bois dans les cavités et produisent un terreau de haute qualité.
L’arbre-chandelle : le squelette debout
Lorsque l’arbre meurt entièrement mais reste debout, il devient un « arbre-chandelle » (snag en anglais). Cette structure verticale, exposée au soleil et au vent, sèche plus lentement qu’on ne le croit : le cœur du tronc reste humide des mois, parfois des années, créant un gradient d’humidité de la surface vers le centre qui supporte une succession d’organismes. Les insectes xylophages colonisent d’abord l’aubier tendre sous l’écorce (scolytes, cérambycides), puis les champignons lignicoles s’installent par les galeries d’insectes et commencent à décomposer la lignine et la cellulose. Les pics (pic épeiche, pic noir, pic vert) creusent leurs loges de nidification dans le bois ramolli par les champignons — ils ne peuvent pas creuser le bois sain — et ces cavités, abandonnées après une saison, sont réutilisées pendant des décennies par d’autres espèces cavernicoles.
Un arbre-chandelle de bonne taille (diamètre supérieur à 30 cm) peut rester debout 10 à 30 ans selon l’essence et le climat. Un chêne-chandelle dure plus longtemps qu’un peuplier-chandelle. Pendant toute cette durée, il fournit des services irremplaçables : poste d’affût pour les rapaces, site de nidification pour les pics et les chouettes, garde-manger pour les grimperaux et les sittelles, support pour les champignons et les lichens. En jardin-forêt, un arbre-chandelle placé à un endroit stratégique — en lisière, près de la mare, en vue du potager — attire la faune auxiliaire exactement là où on en a besoin.
La décomposition du bois au sol — cinq actes d’une pièce qui dure un siècle
Lorsqu’un arbre tombe — ou lorsqu’on dépose volontairement un tronc au sol dans le jardin-forêt — commence un processus de décomposition que les écologues divisent en cinq stades, chacun caractérisé par une communauté d’organismes et un état physique du bois distincts (Stokland et al., 2012).
Stade 1 — bois fraîchement tombé (0-2 ans)
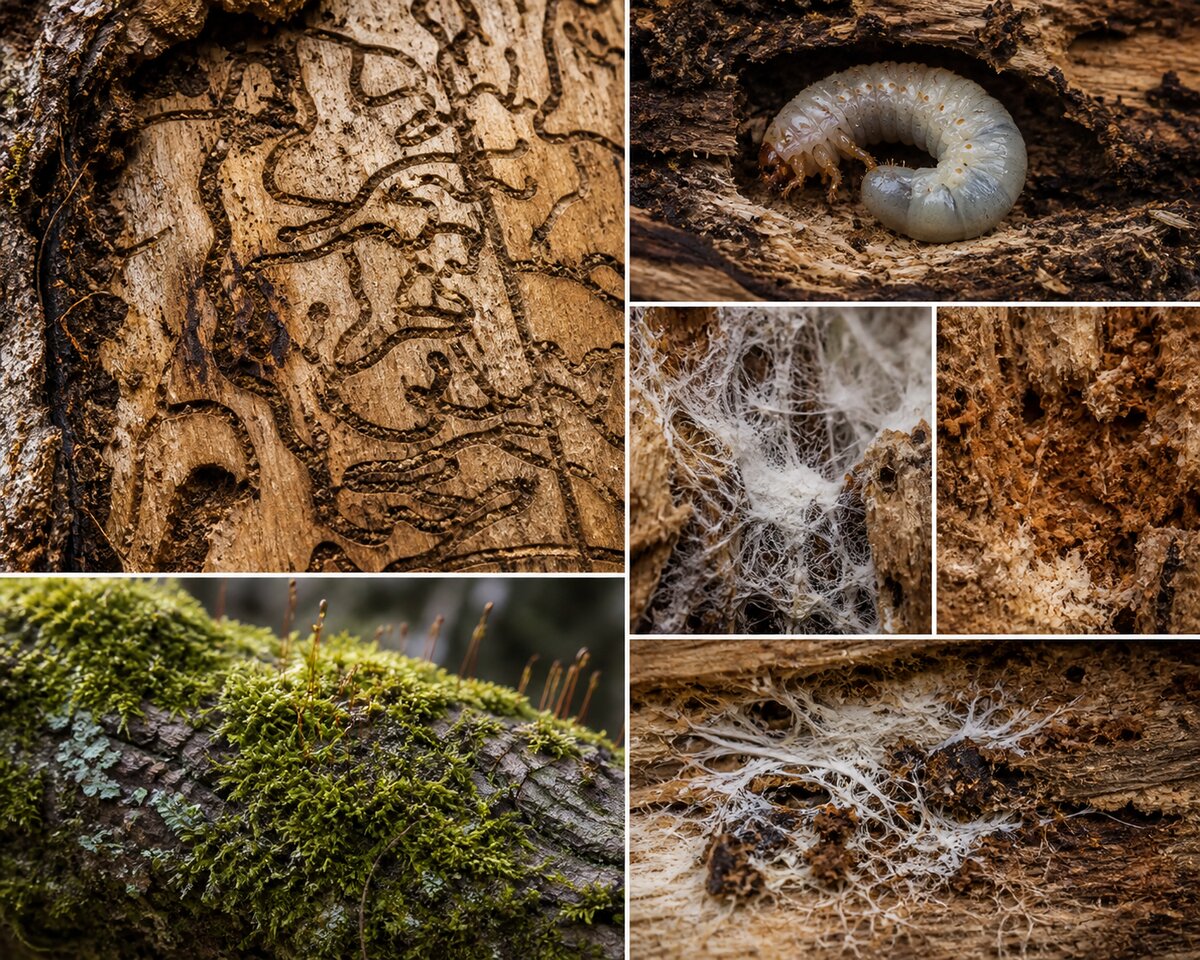
Le bois est intact, dur, l’écorce adhère encore au tronc. Les premiers colonisateurs sont les insectes sous-corticaux : scolytes (Scolytus, Ips), longicornes (Cerambyx cerdo, Rhagium), buprestes (Buprestis, Anthaxia). Ces insectes creusent des galeries dans le cambium et l’aubier, où ils pondent leurs œufs. Les larves se nourrissent du phloème riche en sucres et de l’aubier tendre. En forant, elles inoculent des spores de champignons fixées sur leur cuticule ou dans des structures spécialisées (mycangia) — c’est le début de la colonisation fongique. Les prédateurs suivent immédiatement : pics, sitelles, qui martèlent l’écorce pour extraire les larves.
Stade 2 — bois partiellement décomposé (2-10 ans)
L’écorce se décolle et tombe par plaques. Le bois d’aubier ramollit sous l’action des champignons de pourriture blanche (Trametes versicolor, Stereum hirsutum) qui dégradent la lignine, et de pourriture brune (Fomitopsis pinicola, Laetiporus sulphureus) qui dégradent la cellulose. La distinction entre ces deux types de pourriture est fondamentale : la pourriture blanche laisse un résidu fibreux, spongieux, pâle (cellulose résiduelle) ; la pourriture brune laisse un résidu cubique, friable, brun (lignine résiduelle). Les deux processus sont complémentaires et rarement simultanés sur le même morceau de bois.
De nouvelles communautés d’insectes apparaissent : les larves de cétoine dorée (Cetonia aurata) et de cétoine funeste (Oxythyrea funesta) se nourrissent du bois ramolli mélangé aux déjections fongiques. Les larves de lucane cerf-volant (Lucanus cervus), le plus grand coléoptère d’Europe, commencent leur développement qui durera quatre à six ans dans le bois en décomposition. Des myriapodes (iules, gloméris) et des isopodes (cloportes) colonisent les zones humides sous l’écorce détachée.
Stade 3 — bois spongieux (10-30 ans)
Le tronc est encore reconnaissable dans sa forme, mais le bois se défait sous la pression des doigts. Les champignons sont en pleine activité, produisant souvent des fructifications spectaculaires — polypores, pleurotes, armillaires. L’intérieur du tronc, partiellement évidé par les insectes et les champignons, forme des cavités humides qui abritent des amphibiens (salamandre tachetée, tritons), des mollusques (limaces forestières) et des micro-arthropodes par milliers. Les mousses et les hépatiques colonisent la surface du tronc, retenant l’humidité et créant un substrat pour la germination de graines — c’est sur les troncs en décomposition de ce stade que germent préférentiellement certaines espèces forestières (bouleaux, épicéas, sorbiers) dans les forêts boréales, un phénomène appelé « nurse log ».
Stade 4 — bois fragmenté (30-60 ans)
Le tronc perd sa forme cylindrique. Il s’affaisse, se fragmente en blocs qui se mêlent au sol. La frontière entre le bois et le sol devient floue. Les vers de terre — absents des stades précédents car le bois frais est trop acide et pauvre en azote — commencent à incorporer les fragments les plus dégradés dans l’horizon humifère. Les racines des plantes voisines colonisent le bois en décomposition, y trouvant un substrat meuble, humide et riche en champignons mycorhiziens. Les champignons cordicoles (Armillaria, Heterobasidion) étendent leur réseau mycélien depuis le bois mort vers les racines des arbres vivants voisins — un transfert de matière organique qui fertilise les arbres du jardin-forêt.
Stade 5 — humus (60-100+ ans)
Le bois a entièrement disparu en tant que structure. Il s’est transformé en humus — un humus de type « moder » ou « mor », riche en acides humiques, en champignons et en microarthropodes. Ce processus complet, du bois frais à l’humus, prend 50 à 100 ans pour un tronc de chêne de 40 cm de diamètre, 30 à 60 ans pour un bouleau ou un peuplier, et peut dépasser 200 ans pour un mélèze ou un if. La vitesse de décomposition dépend de l’essence (les bois riches en tanins et en résines se décomposent plus lentement), du diamètre (les gros troncs se décomposent plus lentement, proportionnellement, que les petits), du climat (chaud et humide accélère, froid et sec ralentit) et du contact avec le sol (un tronc au sol se décompose plus vite qu’un tronc suspendu).
Au total, la décomposition d’un mètre cube de bois de chêne libère environ 200 kg de carbone (restitué au sol sous forme d’humus et à l’atmosphère sous forme de CO₂), 1 à 2 kg d’azote (incorporé dans la biomasse fongique puis libéré lentement), 0,1 à 0,3 kg de phosphore et des quantités significatives de calcium, magnésium et potassium. Le bois mort est, à ce titre, un engrais à libération ultra-lente — le plus lent qui soit — et l’un des plus complets.
Les coléoptères saproxyliques — une armée invisible
Les coléoptères saproxyliques — littéralement, « qui vivent du bois mort » — constituent l’un des groupes d’insectes les plus diversifiés et les plus menacés des forêts tempérées. On estime que 1 500 à 2 000 espèces de coléoptères saproxyliques vivent en France, réparties dans une vingtaine de familles (Brustel, 2001). Ce chiffre représente environ 20 % de l’ensemble des coléoptères français. Parmi eux, 30 à 40 % sont aujourd’hui considérés comme menacés ou en déclin, principalement en raison de la raréfaction du bois mort dans les forêts exploitées.
Les grandes familles
Les Cerambycidae (longicornes) comptent environ 250 espèces en France. Leurs larves, reconnaissables à leur corps mou, blanc, cylindrique et à leur tête sclérifiée, creusent des galeries dans le bois pendant un à cinq ans avant de se nymphoser. Le grand capricorne du chêne (Cerambyx cerdo), espèce protégée au niveau européen (Directive Habitats, annexe II), nécessite de vieux chênes sénescents ou morts pour boucler son cycle de développement de trois à cinq ans. Sa présence dans un jardin-forêt est un indicateur de maturité écologique.
Les Lucanidae (lucanes) sont représentés en France par le lucane cerf-volant (Lucanus cervus), dont le mâle aux mandibules spectaculaires est le plus grand coléoptère d’Europe (jusqu’à 9 cm). Ses larves se développent pendant quatre à six ans dans le bois mort en décomposition, préférentiellement le chêne, le châtaignier et le cerisier. La régression du lucane cerf-volant, autrefois commun dans toute la France, est directement corrélée à la disparition des souches et des vieux troncs morts dans les paysages agricoles.
Les Cetoniidae (cétoines) comptent parmi les insectes les plus utiles du jardin-forêt. La cétoine dorée (Cetonia aurata), dont l’adulte vert métallique pollinise activement les fleurs de rosacées (pommiers, cerisiers, aubépines), se développe à l’état larvaire dans le bois mort en décomposition, le terreau de feuilles et les composts. Le pique-prune (Osmoderma eremita), espèce strictement protégée, vit exclusivement dans les cavités remplies de terreau des vieux arbres — c’est l’un des meilleurs indicateurs de la continuité écologique d’un boisement.
Les Buprestidae (buprestes) sont des bijoux entomologiques — leurs élytres métalliques, irisés de vert, de cuivre et de pourpre, en font les insectes les plus spectaculaires des jardins-forêts ensoleillés. Leurs larves minent le bois fraîchement mort sous l’écorce. Le bupreste du chêne (Agrilus biguttatus), le bupreste du tilleul (Lamprodila rutilans) et le richard du peuplier (Dicerca alni) sont des espèces indicatrices de la présence de bois mort diversifié.
Services écosystémiques rendus
Les coléoptères saproxyliques ne sont pas de simples « consommateurs » de bois mort. Ils remplissent des fonctions écosystémiques irremplaçables. Le forage de galeries accélère la décomposition en augmentant la surface d’attaque pour les champignons et en créant des voies de pénétration pour l’eau et les micro-organismes. L’ingestion et la digestion du bois par les larves, assistées par des bactéries et des levures symbiotiques, transforment la cellulose et la lignine en molécules assimilables par le reste de la chaîne trophique. Les déjections larvaires (frass), mélange de bois digéré et de micro-organismes, constituent un terreau de haute qualité dont la composition chimique est plus favorable à la croissance des plantes que le bois non digéré.
Par ailleurs, les coléoptères saproxyliques adultes sont des pollinisateurs méconnus. Beaucoup de longicornes et de cétoines fréquentent les fleurs pour se nourrir de pollen et de nectar, et transportent le pollen d’arbre en arbre. En forêt tempérée, les coléoptères contribuent à 5 à 15 % de la pollinisation des arbres et arbustes à floraison estivale (Wardhaugh, 2015). Enfin, les larves constituent une ressource alimentaire majeure pour les pics, les grimpereaux, les sittelles et les mésanges — des oiseaux qui régulent à leur tour les populations de chenilles et de pucerons ravageurs du jardin-forêt.
Les polypores médicinaux — la pharmacie du bois mort
Les champignons lignicoles — ceux qui décomposent le bois — comptent parmi eux plusieurs espèces aux propriétés médicinales documentées par la pharmacologie moderne. Trois polypores médicinaux majeurs croissent spontanément sur le bois mort en Europe et peuvent être favorisés dans un jardin-forêt.
L’amadouvier — Fomes fomentarius
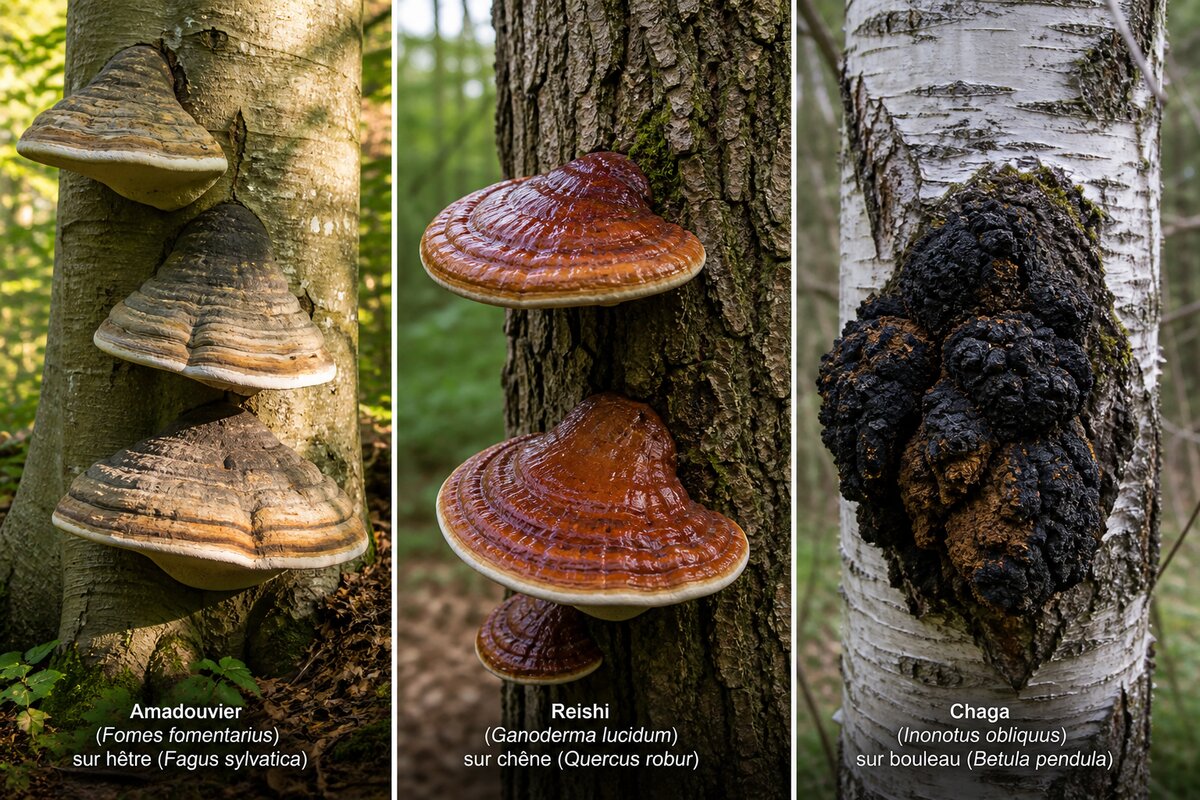
L’amadouvier est un champignon sabot, dur et ligneux, qui se développe sur les troncs de hêtres et de bouleaux morts ou sénescents. Son nom vient de son usage ancestral comme amadou — la trama (chair fibreuse interne), battue et séchée, servait depuis le Néolithique à allumer le feu. L’homme de glace Ötzi, momie du Chalcolithique retrouvée dans les Alpes en 1991, portait sur lui des fragments d’amadouvier (Peintner et al., 1998).
La composition chimique de Fomes fomentarius révèle des β-glucanes de type (1→3)(1→6)-β-D-glucane aux propriétés immunomodulatrices documentées. Les extraits aqueux et éthanoliques montrent une activité anti-inflammatoire (inhibition de la voie NF-κB), antioxydante (piégeage des radicaux DPPH, IC₅₀ de 25 à 60 μg/mL selon les extraits) et antimicrobienne contre plusieurs souches de Staphylococcus aureus et Escherichia coli (Grienke et al., 2014). Des triterpènes spécifiques — acide fomitique, fomefficinic acids A-E — ont montré une activité inhibitrice de la protéase du VIH in vitro.
En jardin-forêt, l’amadouvier apparaît spontanément sur les hêtres et les bouleaux morts après 3 à 5 ans. Conserver debout un tronc de hêtre mort est la meilleure façon de l’encourager. Ses fructifications, qui grossissent chaque année (un seul individu peut vivre 30 ans et atteindre 40 cm de diamètre), produisent des milliards de spores qui inoculent les autres bois morts alentour.
Le reishi — Ganoderma lucidum sensu lato
Le reishi (en japonais) ou lingzhi (en chinois) est l’un des champignons médicinaux les plus étudiés au monde, avec plus de 5 000 publications scientifiques référencées. Le complexe Ganoderma lucidum sensu lato regroupe en réalité plusieurs espèces cryptiques, dont G. lucidum sensu stricto (européen, sur feuillus), G. lingzhi (asiatique, le vrai lingzhi de la pharmacopée chinoise), G. resinaceum (européen méridional) et G. carnosum (sur conifères). En Europe, c’est principalement G. lucidum s.s. et G. resinaceum que l’on rencontre, sur les souches et les troncs de chênes, de hêtres et de châtaigniers morts.
La pharmacologie du reishi est dominée par deux classes de composés. Les triterpènes (acides ganodériques A, B, C, D, etc., plus de 150 identifiés) exercent des activités hépatoprotectrices (inhibition de l’hépatotoxicité induite par le CCl₄ chez le rat), anti-inflammatoires (inhibition de la 5-lipoxygénase et de la cyclooxygénase), antihistaminiques et hypotensives (inhibition de l’enzyme de conversion de l’angiotensine) (Wachtel-Galor et al., 2011). Les polysaccharides, principalement des β-glucanes de haut poids moléculaire, stimulent le système immunitaire inné par activation des macrophages, des cellules NK et des lymphocytes T, via la voie des récepteurs Dectin-1 et TLR-2. Plusieurs essais cliniques randomisés ont montré une amélioration des marqueurs immunitaires (ratio CD4/CD8, activité NK) chez des patients atteints de cancers avancés recevant des extraits de reishi en complément de la chimiothérapie (Jin et al., 2016).
En jardin-forêt, Ganoderma lucidum s’installe spontanément sur les souches de chênes et de châtaigniers abattus, en situation ombragée et humide. Conserver les souches et les gros troncs de feuillus au sol, en contact avec le sol humide et à l’ombre des arbres vivants, crée les conditions optimales. Les fructifications, laquées de rouge brun, apparaissent généralement 2 à 4 ans après la mort du bois. Elles peuvent être récoltées, séchées et préparées en décoction — le reishi étant trop coriace pour être consommé frais.
Le chaga — Inonotus obliquus
Le chaga n’est pas un polypore au sens strict — c’est un conk, une masse de mycélium durci (sclérote) qui se forme sous l’écorce des bouleaux vivants, généralement vieux ou affaiblis, et émerge comme une excroissance noire, craquelée, ressemblant à du charbon de bois. Il pousse naturellement dans les forêts boréales et montagnardes de l’hémisphère nord, là où le bouleau blanc (Betula pendula) ou le bouleau pubescent (B. pubescens) est présent.
Le chaga concentre une quantité remarquable de composés bioactifs : bétuline et acide bétulinique (triterpènes extraits de l’écorce de bouleau et concentrés par le champignon), mélanines (responsables de la couleur noire, à forte activité antioxydante et photoprotectrice), polysaccharides immunomodulateurs, et superoxyde dismutase (SOD) à des concentrations exceptionnellement élevées — jusqu’à 35 000 unités/g de poids sec, soit 25 à 50 fois plus que la plupart des autres champignons médicinaux (Glamočlija et al., 2015). L’acide bétulinique, en particulier, fait l’objet de recherches oncologiques actives pour son activité cytotoxique sélective sur les cellules de mélanome (Cichewicz et Kouzi, 2004).
En jardin-forêt d’altitude, les vieux bouleaux (plus de 15-20 ans) peuvent porter spontanément du chaga. Le champignon ne tue pas l’arbre immédiatement — la cohabitation peut durer 10 à 20 ans — mais il affaiblit progressivement le bois de cœur, préparant la formation future de cavités. Récolter le chaga sans tuer le bouleau est possible en ne prélevant que les deux tiers de la masse et en laissant le reste régénérer, ce qui prend 3 à 5 ans.
Autres champignons notables du bois mort
Le polypore soufré (Laetiporus sulphureus), surnommé « poulet des bois », pousse en étagères orange et jaune vif sur les chênes, les châtaigniers, les cerisiers et les saules morts ou mourants. Jeune et tendre, il est comestible et savoureux, avec une texture qui rappelle effectivement la volaille. C’est un champignon de pourriture brune qui dégrade la cellulose en laissant la lignine intacte.
Les pleurotes (Pleurotus ostreatus, le pleurote en huître) colonisent une grande variété de feuillus morts — hêtre, peuplier, saule, orme, noyer. Comestibles et excellents, ils sont aussi l’un des rares champignons capables de capturer et de digérer des nématodes — une activité prédatrice qui en fait un agent de biocontrôle des parasites racinaires du jardin-forêt (Barron et Thorn, 1987).
L’armillaire couleur de miel (Armillaria mellea) est un cas ambivalent. C’est un parasite redouté des arboriculteurs, capable de tuer des arbres vivants en colonisant leurs racines. Mais c’est aussi un décomposeur puissant qui accélère le recyclage du bois mort et redistribue les nutriments dans le sol via son vaste réseau de rhizomorphes (cordons mycéliens noirs, semblables à des lacets de chaussure, qui s’étendent sur des dizaines de mètres). En jardin-forêt, l’armillaire est rarement un problème sur les arbres vigoureux et bien nourris — il attaque les sujets déjà affaiblis, jouant un rôle de sélection naturelle qui élimine les arbres les moins adaptés.
Le bois mort, habitat pour la faune
Au-delà des insectes et des champignons, le bois mort abrite une communauté faunistique remarquablement diverse qui rend des services directs au jardin-forêt.
Amphibiens et reptiles
Les tas de bois mort et les troncs au sol sont des habitats critiques pour les amphibiens et les reptiles. La salamandre tachetée (Salamandra salamandra) passe la journée sous les écorces décollées ou dans les cavités humides des troncs en décomposition, ne sortant que la nuit pour chasser limaces, vers et insectes. Le crapaud commun (Bufo bufo) hiverne dans les interstices des tas de bois, à l’abri du gel. L’orvet fragile (Anguis fragilis), un lézard apode souvent confondu avec un serpent, niche dans les couches inférieures des tas de bois et consomme d’énormes quantités de limaces — jusqu’à 20 par jour.
Les couleuvres (couleuvre à collier, couleuvre verte et jaune) utilisent les tas de bois en décomposition comme sites de ponte : la chaleur dégagée par la fermentation microbienne assure l’incubation des œufs à température constante. Un tas de bois de 2 m³, humide à la base et bien exposé au soleil, peut atteindre 25-30 °C en son cœur même quand l’air extérieur est à 15 °C.
Petits mammifères
Le hérisson d’Europe (Erinaceus europaeus), consommateur insatiable de limaces, d’escargots et de larves d’insectes ravageurs, hiverne dans des tas de bois mort et de feuilles. Un tas de branchages de 1,5 m de diamètre, recouvert de feuilles mortes, constitue un gîte d’hibernation idéal. Les musaraignes (Sorex spp.), parmi les prédateurs d’invertébrés les plus voraces de la faune européenne (elles consomment quotidiennement leur propre poids en insectes), nichent dans les galeries creusées sous les troncs en décomposition.
Oiseaux
Le troglodyte mignon (Troglodytes troglodytes), l’un des insectivores les plus efficaces du jardin-forêt, niche exclusivement dans les cavités et les enchevêtrements de racines et de bois mort. Le rouge-gorge familier (Erithacus rubecula) établit son nid dans les interstices des souches et des tas de bois. La mésange bleue et la mésange charbonnière nichent dans les cavités de pics abandonnées des arbres-chandelles. Tous ces oiseaux sont des auxiliaires précieux : une famille de mésanges bleues consomme 6 000 à 9 000 chenilles pendant la période de nourrissage des oisillons (Naef-Daenzer et Keller, 1999).
Intégrer le bois mort dans le design du jardin-forêt
Laisser du bois mort dans un jardin-forêt ne signifie pas abandonner le jardin au désordre. C’est au contraire un acte de design conscient, qui place le bois mort là où il rendra le plus de services et où il ne créera pas de nuisances.
Combien de bois mort ?
Les écologues forestiers recommandent un minimum de 20 à 30 m³ de bois mort par hectare pour maintenir une communauté saproxylique fonctionnelle (Müller et Bütler, 2010). En jardin-forêt, même sur une petite surface de 500 à 1 000 m², il est possible d’atteindre cet objectif proportionnellement : 1 à 3 m³ de bois mort diversifié (un tronc au sol, un arbre-chandelle, quelques tas de branches) sur 500 m² correspondent à 20-60 m³/ha. Ce n’est pas beaucoup : un tronc de 30 cm de diamètre et 3 m de long représente environ 0,2 m³. Cinq ou six troncs de ce calibre, distribués dans le jardin, suffisent.
Diversifier les types de bois mort
La diversité des organismes dépend de la diversité des micro-habitats. Il faut donc varier les situations : du bois debout (arbres-chandelles) et du bois couché, des gros diamètres (> 30 cm) et des petits (< 15 cm), des essences différentes (feuillus et résineux, bois dur et bois tendre), des expositions variées (soleil et ombre), et du bois à différents stades de décomposition. Un « hôtel à insectes » préfabriqué ne remplace pas cette diversité — il n'héberge qu'une fraction des espèces saproxyliques et souvent pas celles qui sont les plus utiles.
Où placer le bois mort ?
Le bois mort remplit des fonctions différentes selon son emplacement. En lisière, un arbre-chandelle sert de poste d’affût pour les rapaces (crécerelle, épervier) et de site de nidification pour les pics. Près de la mare, un tas de bois humide attire les amphibiens et les couleuvres. En sous-bois, un gros tronc au sol crée un corridor d’humidité pour la salamandre et un substrat de germination pour les semis forestiers. En bordure du potager, un tas de branchages offre un gîte au hérisson et à l’orvet, qui réguleront les limaces des cultures voisines.
On évitera de placer du bois mort directement contre les fondations d’une maison (risque de termites dans les régions concernées) ou contre le tronc d’un arbre fruitier en production (risque de contamination par des champignons pathogènes). En revanche, un tronc en décomposition déposé à 3-4 mètres d’un arbre fruitier ne présente aucun risque et enrichit le sol à proximité.
Créer des tas de bois structurés
Un simple tas de branches jetées en vrac se tasse rapidement et perd ses interstices. Un tas de bois structuré, conçu pour maximiser les micro-habitats, se construit en alternant des couches de gros rondins (qui forment l’ossature et maintiennent les espaces), de branchages moyens (qui créent un réseau de galeries) et de feuilles mortes (qui retiennent l’humidité). La base, posée sur le sol nu (pas sur une bâche), permet aux organismes du sol de coloniser le tas par en dessous. Une orientation nord-sud, avec la face sud exposée au soleil et la face nord à l’ombre, crée un gradient thermique qui multiplie les niches. Dimensions idéales : 1,5 à 2 m de long, 1 m de large, 1 m de haut — suffisant pour héberger un hérisson hivernant, plusieurs espèces d’amphibiens et des dizaines d’espèces d’insectes.
Le cycle complet — de l’humus à l’arbre, de l’arbre à l’humus
Le bois mort ferme le cycle du jardin-forêt. L’arbre a poussé en puisant l’eau, les minéraux et le carbone dans le sol et l’atmosphère. En mourant, il restitue ces éléments — non pas d’un coup, comme un feu de bois, mais progressivement, sur des décennies, en passant par une cascade de transformations biologiques qui nourrissent des milliers d’espèces. Chaque organisme qui participe à la décomposition prélève sa part et rend le reste sous une forme plus simple, plus assimilable par le suivant, jusqu’à ce que les éléments retournent au sol sous forme d’humus — prêts à nourrir un nouvel arbre.
Ce cycle n’est pas un cercle fermé. À chaque tour, de l’énergie solaire est captée et de la complexité biologique est créée. Un jardin-forêt qui intègre consciemment le bois mort dans son design ne fait pas que tolérer la mort des arbres — il l’utilise comme moteur de fertilité, de biodiversité et de résilience. Le tronc pourri qui gît au pied du pommier nourrit les champignons qui colonisent les racines du pommier, qui produisent des fruits, qui tombent au sol, qui nourrissent les vers de terre, qui creusent les galeries qui infiltrent l’eau qui alimente le noyer, qui un jour mourra à son tour et nourrira le sol de sa mort lente. C’est le métabolisme même de la forêt — et le jardin-forêt, en l’accueillant, accueille la vie dans toute son épaisseur.
Bibliographie
- Barron G.L., Thorn R.G. (1987). Destruction of nematodes by species of Pleurotus. Canadian Journal of Botany, 65(4), 774-778.
- Brustel H. (2001). Coléoptères saproxyliques et valeur biologique des forêts françaises. Les dossiers forestiers de l’ONF, 13, 1-297.
- Christensen M., Hahn K., Mountford E.P., Ódor P., Standovár T., Rozenbergar D., Diaci J., Wijdeven S., Meyer P., Winter S., Vrska T. (2005). Dead wood in European beech (Fagus sylvatica) forest reserves. Forest Ecology and Management, 210(1-3), 267-282.
- Cichewicz R.H., Kouzi S.A. (2004). Chemistry, biological activity, and chemotherapeutic potential of betulinic acid for the prevention and treatment of cancer and HIV infection. Medicinal Research Reviews, 24(1), 90-114.
- Glamočlija J., Ćirić A., Nikolić M., Fernandes Â., Barros L., Calhelha R.C., Ferreira I.C.F.R., Soković M., Van Griensven L.J.L.D. (2015). Chemical characterization and biological activity of Chaga (Inonotus obliquus), a medicinal « mushroom ». Journal of Ethnopharmacology, 162, 323-332.
- Grienke U., Zöll M., Peintner U., Rollinger J.M. (2014). European medicinal polypores — a modern view on traditional uses. Journal of Ethnopharmacology, 154(3), 564-583.
- Jin X., Ruiz Beguerie J., Sze D.M., Chan G.C.F. (2016). Ganoderma lucidum (Reishi mushroom) for cancer treatment. Cochrane Database of Systematic Reviews, 4, CD007731.
- Larrieu L., Paillet Y., Winter S., Bütler R., Kraus D., Krumm F., Lachat T., Michel A.K., Regnery B., Vandekerkhove K. (2018). Tree related microhabitats in temperate and Mediterranean European forests: a hierarchical typology for inventory standardization. Ecological Indicators, 84, 194-207.
- Müller J., Bütler R. (2010). A review of habitat thresholds for dead wood: a baseline for management recommendations in European forests. European Journal of Forest Research, 129(6), 981-992.
- Naef-Daenzer B., Keller L.F. (1999). The foraging performance of great and blue tits (Parus major and P. caeruleus) in relation to caterpillar development, and its consequences for nestling growth and fledging weight. Journal of Animal Ecology, 68(4), 708-718.
- Peintner U., Pöder R., Pümpel T. (1998). The iceman’s fungi. Mycological Research, 102(10), 1153-1162.
- Stokland J.N., Siitonen J., Jonsson B.G. (2012). Biodiversity in Dead Wood. Cambridge University Press.
- Wachtel-Galor S., Yuen J., Buswell J.A., Benzie I.F.F. (2011). Ganoderma lucidum (Lingzhi or Reishi): a medicinal mushroom. In Herbal Medicine: Biomolecular and Clinical Aspects. 2e éd., CRC Press, chapitre 9.
- Wardhaugh C.W. (2015). How many species of arthropods visit flowers? Arthropod-Plant Interactions, 9(6), 547-565.