Introduction — le fruit et la graine, aboutissement de la fleur
Toute fleur porte en elle la promesse d’un fruit. Après la fécondation, l’ovaire se transforme en fruit et les ovules deviennent des graines — deux structures dont la diversité morphologique rivalise avec celle des fleurs elles-mêmes. Pour le botaniste de terrain, les fruits et les graines sont des outils de détermination irremplaçables : ils persistent souvent plus longtemps que les fleurs, restent identifiables en hiver, et leur forme traduit directement les stratégies écologiques de la plante.
Ce cinquième volet des Bases botaniques parcourt la morphologie des fruits — depuis leur formation à partir de la fleur jusqu’à leur classification détaillée — puis celle des graines et de la germination. L’accent est mis sur ce qui s’observe sur le terrain : la texture du péricarpe, le mode d’ouverture, les appendices de dissémination, la structure visible de la graine. Chaque type de fruit est relié à la famille botanique qui le produit, créant un pont direct entre la carpologie (l’étude des fruits) et l’identification systématique.
Comprendre les fruits, c’est aussi comprendre le mouvement des plantes. Immobiles par essence, les végétaux ont inventé des dizaines de stratégies pour projeter leurs descendants aussi loin que possible du pied mère — par le vent, l’eau, les animaux, la gravité, ou par leurs propres mécanismes balistiques. Ces stratégies de dissémination, lisibles dans la morphologie du fruit, constituent l’un des chapitres les plus fascinants de l’écologie végétale.
Première partie — Du fruit : formation et structure
1. Origine florale du fruit
Le fruit résulte de la transformation de la fleur après la fécondation. Dans le cas le plus simple, seul l’ovaire participe au fruit — on parle de vrai fruit. Mais d’autres pièces florales peuvent contribuer :
- L’ovaire seul → vrai fruit (cerise, haricot, tomate)
- L’ovaire + le réceptacle → faux fruit ou fruit complexe (fraise — le réceptacle charnu porte les vrais fruits qui sont les akènes de surface ; pomme — le réceptacle en coupe enveloppe les carpelles)
- L’ovaire + le calice → fruit enveloppé (alkékenge, noisette dont l’involucre foliacé est d’origine bractéale)
- L’ovaire + l’axe de l’inflorescence → fruit composé (ananas — fusion de multiples ovaires et de l’axe ; figue — réceptacle creux renfermant les fleurs puis les fruits)
2. Le péricarpe — paroi du fruit
La paroi du fruit, ou péricarpe, dérive de la paroi de l’ovaire. Elle comprend trois couches, de l’extérieur vers l’intérieur :
- Épicarpe (exocarpe) — couche externe, souvent la « peau » du fruit. Fine et colorée chez la cerise, épaisse et coriace chez l’orange (le zeste), ligneuse chez la noix.
- Mésocarpe — couche intermédiaire. C’est la chair comestible des drupes (pêche, abricot) et des baies (tomate, raisin). Chez les fruits secs, il est mince et membraneux.
- Endocarpe — couche interne, en contact avec les graines. Lignifié en « noyau » chez les drupes (cerise, olive, pêche), membraneux ou gélatineux dans les baies, parcheminé dans les gousses.
Sur le terrain, la texture du péricarpe à maturité détermine la grande division entre fruits charnus (mésocarpe épais et juteux) et fruits secs (péricarpe mince, sec, membraneux ou ligneux).
3. Fruit simple, fruit multiple, fruit composé
Le fruit simple
Dérive d’un seul ovaire (qu’il soit formé d’un ou plusieurs carpelles soudés) d’une seule fleur. C’est le cas le plus fréquent : cerise, tomate, gousse de haricot, gland, akène de pissenlit.
Le fruit multiple (polycarpe)
Dérive de plusieurs ovaires libres (carpelles apocarpes) d’une même fleur. Chaque carpelle donne un petit fruit élémentaire, et l’ensemble reste groupé :
- Polyakène — fraisier (akènes sur réceptacle charnu), renoncule (akènes sur réceptacle sec), rosier (akènes dans un hypanthe charnu = cynorrhodon)
- Polydrupe — framboisier, mûrier (drupelets agrégés)
- Polyfollicule — pivoine, hellébore, ancolie (follicules groupés)
Le fruit composé (infrutescence)
Dérive de la transformation d’une inflorescence entière en une unité fonctionnelle de dissémination :
- Ananas — fusion des baies d’un épi dense avec l’axe et les bractées
- Figue — réceptacle creux (sycone) contenant les akènes
- Mûre du mûrier (Morus) — drupes issues de fleurs distinctes, agrégées en faux fruit
Deuxième partie — Classification des fruits secs
1. Fruits secs déhiscents — ils s’ouvrent à maturité
Les fruits secs déhiscents libèrent activement leurs graines en s’ouvrant selon des lignes de déhiscence prédéterminées.
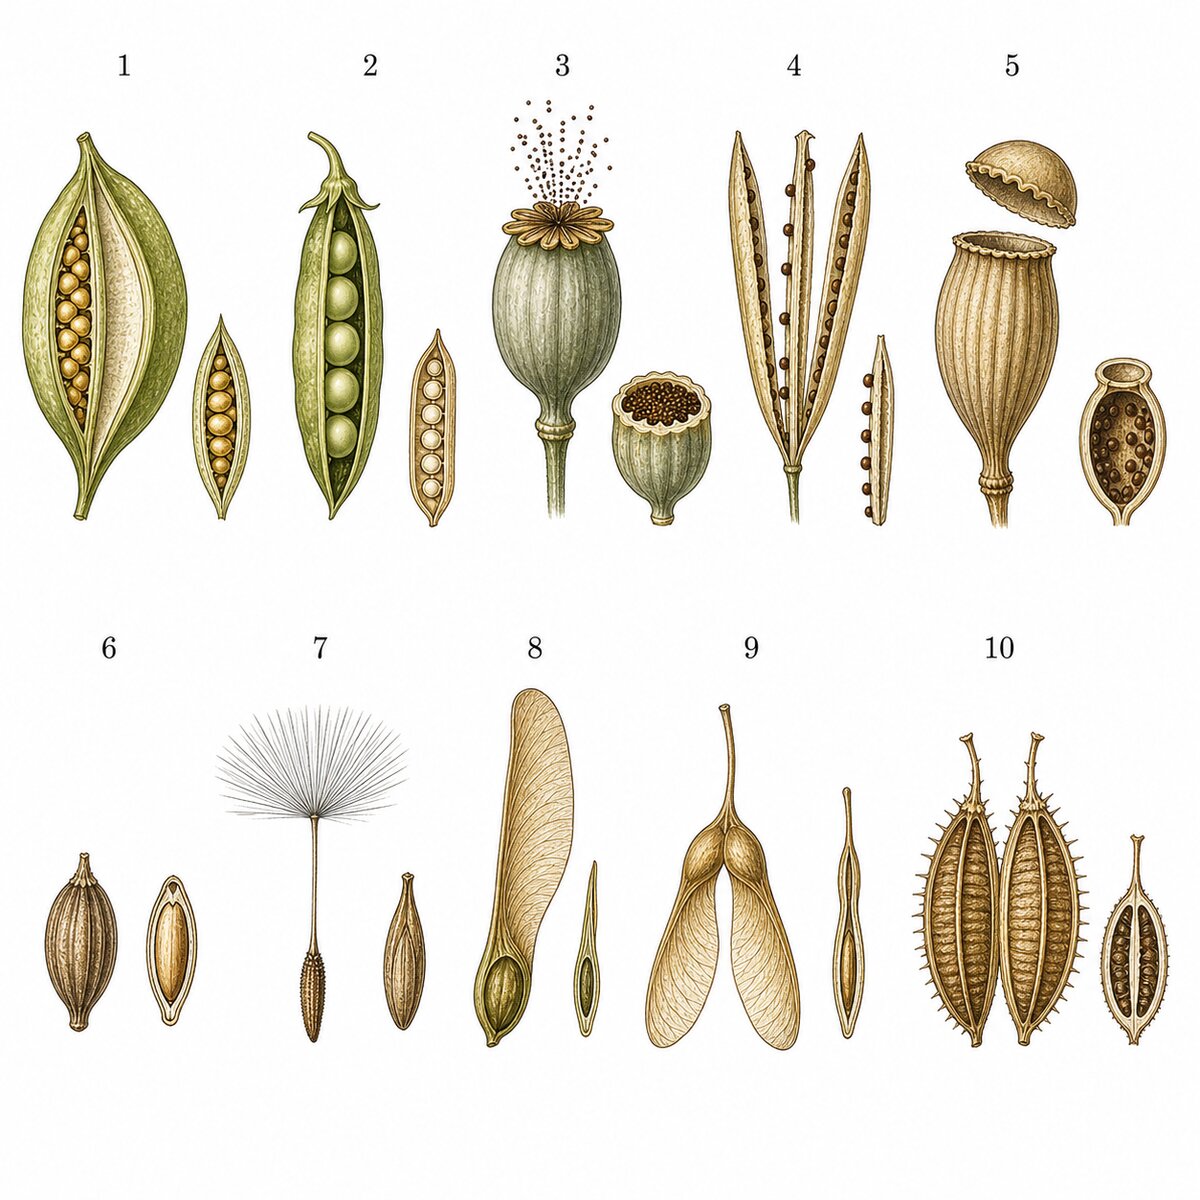
Le follicule
Dérive d’un seul carpelle et s’ouvre par une seule fente (la suture ventrale). Exemples : pivoine, hellébore, ancolie, dauphinelle, magnolia. En phytothérapie, le follicule étoilé de la badiane (Illicium verum) — l’anis étoilé — est formé de 8 follicules rayonnants.
La gousse (légume)
Dérive d’un seul carpelle mais s’ouvre par deux fentes (suture ventrale ET nervure dorsale). C’est le fruit caractéristique des Fabacées — critère familial quasi absolu. Exemples : haricot, pois, lentille, trèfle, glycine, robinier, genêt.
Variantes de la gousse :
- Gousse articulée (lomentum) — se fragmente en articles contenant chacun une graine (sainfoin, coronille)
- Gousse indéhiscente — ne s’ouvre pas spontanément (arachide, certains trèfles)
- Gousse spiralée — enroulée en spirale (luzerne Medicago)
- Gousse enflée — vésiculeuse (baguenaudier, Colutea arborescens)
La capsule
Dérive de plusieurs carpelles soudés (ovaire pluricarpellé syncarpe). C’est le fruit sec déhiscent le plus répandu. Ses modes d’ouverture sont variés et diagnostiques :
- Capsule loculicide — s’ouvre par des fentes au milieu de chaque loge (lis, tulipe, iris, colchique)
- Capsule septicide — s’ouvre le long des cloisons entre les loges (millepertuis, tabac, molène)
- Capsule septifrage — les valves se détachent en laissant les cloisons sur l’axe central (datura)
- Capsule poricidé — s’ouvre par des pores (coquelicot — pores sous le disque stigmatique, campanule)
- Capsule à opercule (pyxide) — le sommet se détache comme un couvercle (mouron rouge, plantain, jusquiame)
- Capsule à déhiscence denticide — s’ouvre par des dents au sommet (œillet, silène, stellaire — Caryophyllacées)
La silique et la silicule
Fruits caractéristiques des Brassicacées (Crucifères), dérivés de 2 carpelles soudés séparés par une fausse cloison (le replum). La silique est au moins 3 fois plus longue que large (moutarde, giroflée, chou) ; la silicule est aussi large que longue ou presque (bourse-à-pasteur, lunaire, tabouret).
À maturité, les deux valves se détachent du cadre formé par le replum, libérant les graines. Ce mode de déhiscence est unique aux Brassicacées — un critère absolu.
2. Fruits secs indéhiscents — ils ne s’ouvrent pas
Ces fruits ne libèrent pas spontanément leur(s) graine(s). L’ensemble fruit + graine constitue l’unité de dissémination (la diaspore).
L’akène
Petit fruit sec à une seule graine, dont le péricarpe n’est pas soudé à la graine (il s’en détache si on le coupe). Exemples : pissenlit, tournesol (la « graine » de tournesol est un akène dont on casse le péricarpe pour manger la vraie graine), renoncule, clématite.
Variantes spécialisées de l’akène :
- Akène à aigrette (pappus) — surmonté de soies plumeuses pour le vol (pissenlit, chardon, séneçon, laitue)
- Akène à aile (samare) — prolongé par une expansion membraneuse (érable = disamare, frêne, orme, bouleau)
- Akène à bec — prolongé par un appendice effilé (géranium — le « bec de grue » est un akène à arête hygroscopique)
- Akène à crochets — couvert d’appendices accrochants (bardane — les capitules entiers forment une boule de crochets ; aigremoine, benoîte)
Le caryopse
Akène dont le péricarpe est intimement soudé à la graine (indissociable). C’est le fruit caractéristique des Poacées (graminées) — blé, riz, maïs, avoine, seigle. Le « grain de blé » est un caryopse : le son est le péricarpe, l’amande est la graine (albumen + embryon).
Le diakène (crémocarpe)
Fruit formé de 2 méricarpes (demi-fruits) qui se séparent à maturité en restant suspendus au sommet d’un axe central (le carpophore). C’est le fruit caractéristique des Apiacées — critère familial absolu. Exemples : carotte (méricarpes à côtes et aiguillons), fenouil, persil, coriandre, anis vert, cumin.
L’ornementation des méricarpes (côtes, ailes, aiguillons, canaux sécréteurs) est utilisée pour distinguer les genres d’Apiacées — critère plus fiable que la fleur dans cette famille à fleurs très uniformes.
Le gland
Akène à péricarpe ligneux, partiellement enveloppé par une cupule (structure d’origine bractéale). Fruit des Fagacées : chêne (cupule écailleuse), hêtre (cupule épineuse = faîne), châtaignier (cupule hérissée = bogue contenant 1-3 akènes).
La noisette
Akène à péricarpe ligneux très dur, entouré d’un involucre foliacé. Fruit du noisetier (Corylus avellana), des charmes (involucre trilobé).
La noix
Au sens botanique strict, c’est un fruit sec indéhiscent à péricarpe entièrement ligneux. La noix du noyer (Juglans regia) est entourée d’un brou charnu (qui est en réalité l’involucre) ; le péricarpe ligneux est la « coquille » à deux valves.
Troisième partie — Classification des fruits charnus
1. La drupe
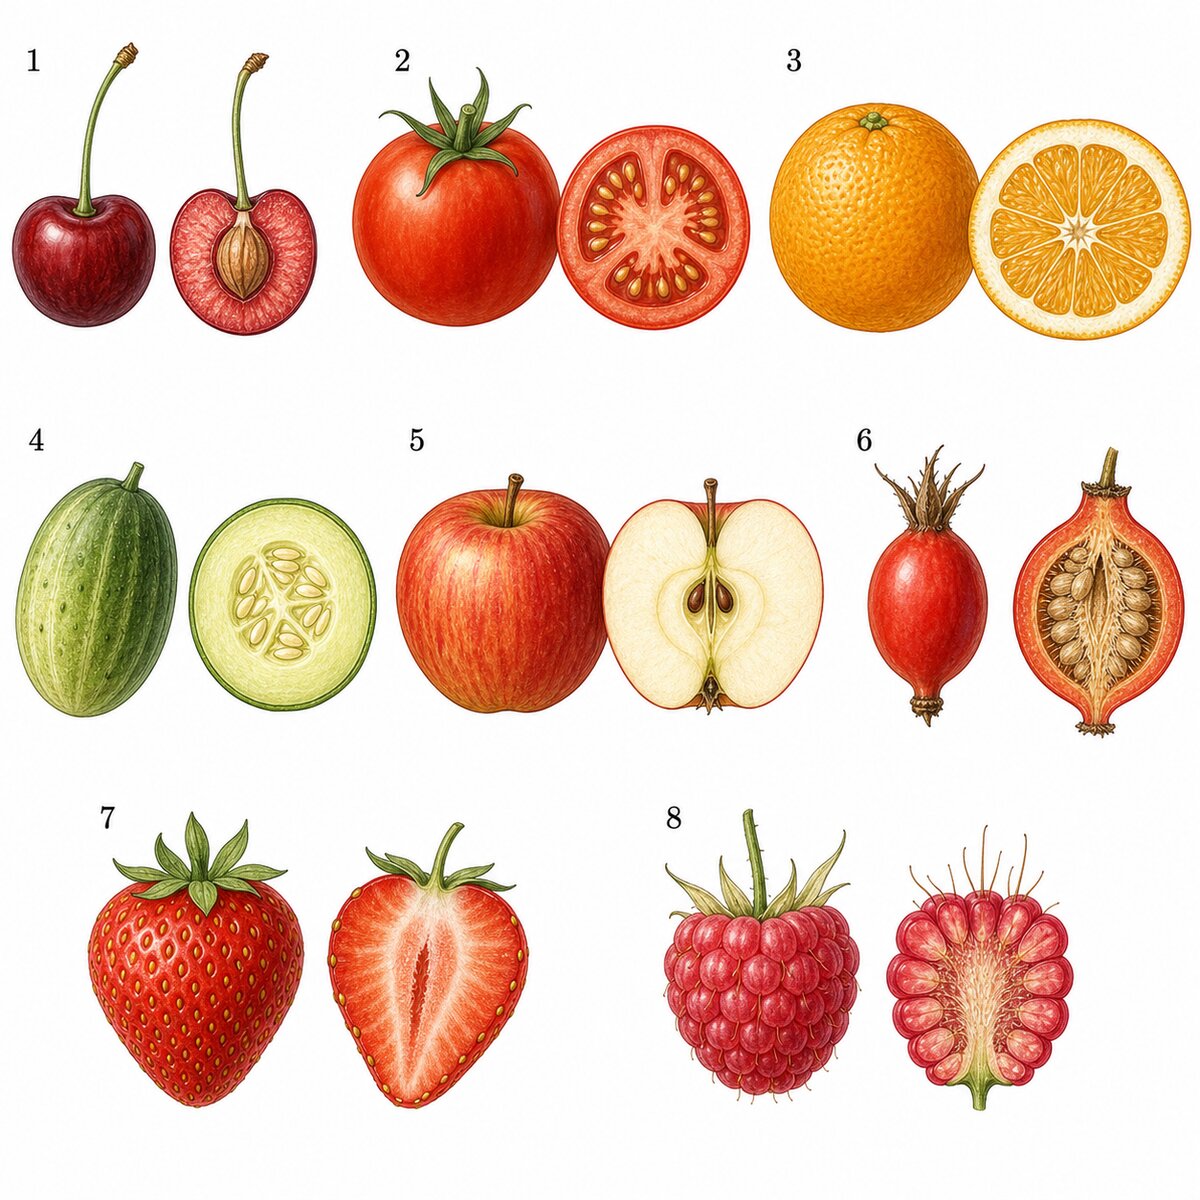
Fruit charnu dont l’endocarpe est lignifié en un « noyau » dur contenant une seule graine. La structure concentrique est : épicarpe (peau) → mésocarpe (chair) → endocarpe (noyau) → graine (amande).
Exemples :
- Rosacées-Prunoïdées — cerise, prune, pêche, abricot, amande (la partie consommée de l’amande est la graine extraite du noyau)
- Oléacées — olive (l’huile est extraite du mésocarpe charnu)
- Juglandacées — noix (discutable : drupe dont on consomme la graine)
- Lauracées — avocat (drupe à gros noyau)
- Cornacées — cornouille
La drupe est le fruit typique du genre Prunus (sous-famille Amygdaloideae des Rosacées). Quand on identifie un arbre fruitier à noyau en Europe, c’est presque certainement un Prunus.
2. La baie
Fruit charnu dont l’endocarpe est membraneux ou gélatineux (jamais lignifié), contenant une ou plusieurs graines directement plongées dans la pulpe. Contrairement à l’usage courant, le terme « baie » en botanique a un sens précis.
Vraies baies au sens botanique :
- Solanacées — tomate, poivron, aubergine, morelle noire, belladone, physalis
- Vitacées — raisin
- Grossulariacées — groseille, cassis
- Ericacées — myrtille, airelle, canneberge
- Actinidiacées — kiwi
- Musacées — banane
- Cucurbitacées — concombre, melon, pastèque (baie à épicarpe durci = péponide)
- Rutacées — orange, citron (baie à endocarpe cloisonné en quartiers = hespéride)
Ne sont PAS des baies au sens botanique : la fraise (réceptacle charnu + akènes), la framboise (polydrupe), la mûre de ronce (polydrupe), la cerise (drupe).
3. Variantes de la baie
L’hespéride
Baie des agrumes (Rutacées) dont l’endocarpe forme des cloisons tapissées de poils juteux (les « quartiers »). L’épicarpe (zeste) est riche en poches à huile essentielle. Orange, citron, pamplemousse, bergamote, cédrat.
La péponide
Baie des Cucurbitacées dont l’épicarpe se durcit en une croûte rigide. L’ovaire est infère, donc les restes du périanthe sont au sommet du fruit. Concombre, melon, pastèque, courge, courgette.
La baie à arille
Chez l’if (Taxus baccata), la graine est entourée d’un arille charnu rouge — structure qui simule une baie mais n’en est pas une (l’if est un Gymnosperme, il n’a pas d’ovaire). L’arille est comestible (apprécié des oiseaux), mais la graine est mortellement toxique (taxine).
4. Le piridion (fruit à pépins)
Fruit des Rosacées-Maloïdées (pommier, poirier, cognassier, néflier, sorbier) où le réceptacle en coupe (hypanthe) se développe en chair autour des carpelles. Les vrais fruits sont les « pépins » — en réalité les loges cartilagineuses contenant les graines. L’essentiel de la chair comestible est du réceptacle, non du péricarpe.
On reconnaît le piridion aux restes du calice visibles au sommet du fruit (opposé au pédoncule) — vestiges des 5 sépales persistants.
5. Le cynorrhodon
Fruit du rosier (Rosa spp.) : le réceptacle en coupe (hypanthe) se referme et devient charnu, enfermant de nombreux akènes hérissés de poils irritants (le « poil à gratter »). Chaque akène est un vrai fruit individuel. Le cynorrhodon est exceptionnellement riche en vitamine C (jusqu’à 20 fois plus que l’orange) et en caroténoïdes — d’où son usage en phytothérapie comme tonique et antioxydant.
Quatrième partie — Fruits et identification des familles
1. Le fruit comme clé d’identification
Certains types de fruits sont si étroitement associés à une famille qu’ils permettent une identification immédiate :
- Gousse (légume) → Fabacées — pratiquement aucune exception en Europe
- Silique ou silicule → Brassicacées — critère absolu
- Diakène (crémocarpe) à 2 méricarpes → Apiacées — critère absolu
- Akène unique + pappus + capitule → Astéracées
- Tétrakène (4 nucules dans le calice persistant) → Lamiacées ou Boraginacées
- Capsule à 3 loges, souvent à déhiscence explosive → Euphorbiacées
- Drupe à noyau → Rosacées-Prunoïdées (en Europe, quasi systématique)
- Piridion (fruit à pépins) → Rosacées-Maloïdées
- Caryopse → Poacées
- Capsule à déhiscence denticide au sommet → Caryophyllacées
2. Tableaux récapitulatifs par grand type
Fruits secs déhiscents et familles associées
| Type de fruit | Origine carpellaire | Déhiscence | Familles typiques |
|---|---|---|---|
| Follicule | 1 carpelle | 1 fente ventrale | Renonculacées, Magnoliacées |
| Gousse | 1 carpelle | 2 fentes | Fabacées |
| Capsule loculicide | Pluricarpellé | Fentes au milieu des loges | Liliacées, Iridacées |
| Capsule septicide | Pluricarpellé | Fentes le long des cloisons | Hypéricacées, Solanacées |
| Capsule poricide | Pluricarpellé | Pores | Papavéracées, Campanulacées |
| Pyxide | Pluricarpellé | Opercule | Primulacées, Plantaginacées |
| Silique / Silicule | 2 carpelles + replum | 2 valves se détachant | Brassicacées |
Fruits secs indéhiscents et familles associées
| Type de fruit | Nombre de graines | Particularité | Familles typiques |
|---|---|---|---|
| Akène simple | 1 | Péricarpe libre de la graine | Renonculacées, Rosacées |
| Akène à pappus | 1 | Aigrette de soies | Astéracées |
| Samare | 1 | Aile membraneuse | Acéracées, Oléacées, Ulmacées |
| Caryopse | 1 | Péricarpe soudé à la graine | Poacées |
| Diakène | 2 (1 par méricarpe) | Se scinde en 2 moitiés | Apiacées |
| Tétrakène | 4 (1 par nucule) | 4 nucules au fond du calice | Lamiacées, Boraginacées |
| Gland | 1 | Cupule basale | Fagacées |
Cinquième partie — La graine
1. Origine et structure
La graine résulte de la transformation de l’ovule fécondé. Elle contient l’embryon de la future plante, entouré ou non de tissus de réserve, le tout protégé par une enveloppe — le tégument.
Structure d’une graine type :
- Le tégument (testa) — enveloppe protectrice externe, dérivée des enveloppes de l’ovule. Peut être mince et membraneux (haricot) ou dur et imperméable (noix, noyaux). Parfois doublé d’un tégument interne (tegmen).
- L’albumen (endosperme) — tissu de réserve triploïde issu de la double fécondation. Riche en amidon (céréales), en lipides (ricin, colza), en protéines, ou en cellulose (palmier-dattier, café). Absent chez les graines exalbuminées (Fabacées, Astéracées) où les réserves sont stockées dans les cotylédons de l’embryon.
- L’embryon — plantule miniature comprenant :
- La radicule — future racine primaire
- La tigelle (hypocotyle) — futur axe sous les cotylédons
- Les cotylédons — 1 (Monocotylédones) ou 2 (Dicotylédones) — feuilles embryonnaires de réserve ou photosynthétiques à la germination
- La gemmule (plumule) — bourgeon terminal, future tige feuillée
2. Graines albuminées et exalbuminées
Graines albuminées
L’albumen persiste à maturité et constitue l’essentiel de la réserve. Les cotylédons sont minces et servent surtout à absorber l’albumen lors de la germination (Poacées) ou à effectuer la photosynthèse après émergence.
- Céréales (blé, riz, maïs) — albumen amylacé (amidon)
- Ricin — albumen lipidique
- Café — albumen corné (cellulose épaissie)
- Noix de coco — albumen liquide (eau de coco) + albumen solide (coprah)
Graines exalbuminées
L’albumen est entièrement absorbé pendant le développement de la graine. Les réserves sont transférées dans les cotylédons qui deviennent épais et charnus.
- Fabacées (haricot, pois, lentille) — cotylédons amylacés et protéiques
- Brassicacées (moutarde, colza) — cotylédons lipidiques
- Astéracées (tournesol) — cotylédons lipidiques
- Fagacées (chêne, hêtre, châtaignier) — cotylédons amylacés
3. Appendices et adaptations de la graine
- Le hile — cicatrice de l’ancien point d’attache de l’ovule au placenta. Visible comme une tache sur le haricot, le marron.
- Le micropyle — petit pore du tégument par lequel le tube pollinique a pénétré et par lequel l’eau entre lors de la germination.
- L’arille — excroissance charnue et colorée enveloppant partiellement la graine (if, muscade — le macis est l’arille de la noix de muscade ; fusain — arille orange vif). L’arille attire les oiseaux disséminateurs.
- L’élaïosome — petit appendice lipidique attirant les fourmis (violette, chélidoine, hellébore). Les fourmis transportent la graine jusqu’au nid pour consommer l’élaïosome, puis abandonnent la graine — myrmécochorie.
- Les ailes — expansions tégumentaires permettant le vol (pin, sapin, épicéa, orme, catalpa)
- Les poils — fins filaments permettant le transport par le vent (saule, peuplier — les « flocons » printaniers sont des graines à soies) ou par l’eau (certaines graines flottantes)
4. Taille et nombre — stratégies r et K
La taille des graines reflète un compromis écologique fondamental :
- Graines petites et nombreuses (stratégie r) — forte capacité de colonisation, germination rapide, mortalité juvénile élevée. Typique des pionnières et des rudérales (orchidées : graines microscopiques par millions ; digitale ; coquelicot : une capsule contient ~3000 graines).
- Graines grosses et peu nombreuses (stratégie K) — réserves abondantes permettant un démarrage vigoureux, compétitivité précoce, mais mobilité réduite. Typique des espèces de milieux stables et compétitifs (chêne : le gland pèse plusieurs grammes ; noyer, marronnier, cocotier).
Sixième partie — La dissémination (diasporie)
1. Pourquoi se disperser ?
La dissémination des graines et des fruits répond à trois pressions sélectives :
- Éviter la compétition avec le parent — les plantules qui germent sous le pied mère sont ombragées et en compétition pour l’eau et les nutriments
- Coloniser de nouveaux sites — étendre l’aire de l’espèce, occuper les milieux perturbés
- Échapper aux pathogènes et prédateurs — effet Janzen-Connell : la mortalité est maximale à proximité de l’adulte (concentration de parasites spécifiques)
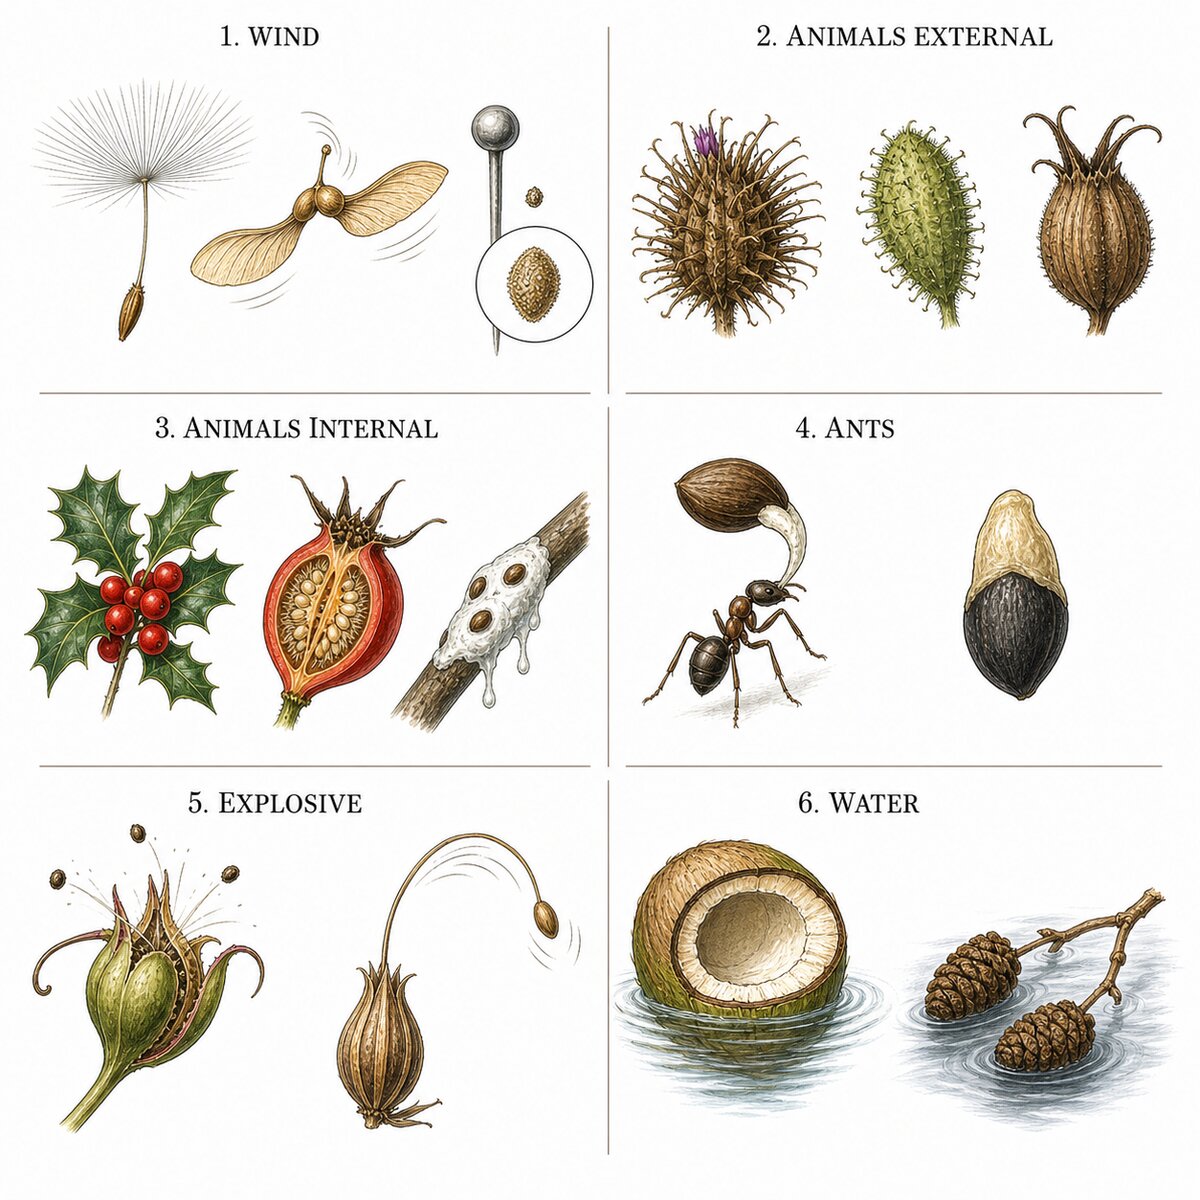
2. L’anémochorie — dissémination par le vent
Adaptations morphologiques au transport éolien :
- Aigrettes (pappus) — soies plumeuses ralentissant la chute (pissenlit, chardon, séneçon, épilobe, saule, peuplier). Un akène de pissenlit peut voyager sur plusieurs kilomètres par vent fort.
- Ailes (samares) — surfaces planes créant une portance (érable : disamare à rotation hélicoïdale ; frêne, orme, bouleau, tilleul — la bractée ailée emporte le fruit).
- Graines poussiéreuses — si petites qu’elles flottent dans l’air comme des particules (orchidées : graines de 0,05 mm ne pesant que quelques microgrammes).
- Fruits « rouleurs » — structures sphériques poussées par le vent au sol (chardon-roulant, Salsola — la plante entière se détache et roule en dispersant ses graines).
3. La zoochorie — dissémination par les animaux
Endozoochorie (transit digestif)
Les fruits charnus sont ingérés, la pulpe digérée, et les graines éliminées intactes dans les fèces, souvent loin du pied mère. La chair (couleur, sucre, arôme) est la « récompense » offerte au disperseur.
- Oiseaux — baies rouges ou noires à graines résistantes (sureau, aubépine, houx, gui, if)
- Mammifères — fruits charnus tombés au sol (pommes, cerises, prunes pour les renards, blaireaux, ours)
- Caractéristiques d’un fruit ornithochore : petit, rouge ou noir, sans odeur forte, riche en lipides et sucres, graines à tégument résistant aux sucs digestifs
Épizoochorie (accrochage au pelage)
Les fruits portent des crochets, épines ou poils adhérents qui s’agrippent à la fourrure (ou aux vêtements du promeneur).
- Bardane (Arctium lappa) — capitules à bractées crochues (a inspiré l’invention du Velcro)
- Gaillet gratteron (Galium aparine) — fruits couverts de poils crochus
- Aigremoine (Agrimonia eupatoria) — calice fructifère à crochets
- Benoîte (Geum urbanum) — styles persistants et crochus
- Carotte sauvage — méricarpes hérissés d’aiguillons
Dyszoochorie (transport et oubli)
Les animaux stockent des graines ou fruits en réserve et en oublient une partie, qui germe. Les geais, écureuils et mulots sont les principaux agents de dissémination des glands et des noisettes. On estime qu’un geai cache jusqu’à 5000 glands par automne et en retrouve environ 70 % — les 30 % oubliés assurent la régénération des chênaies.
Myrmécochorie (transport par les fourmis)
Les graines portent un élaïosome lipidique. Les fourmis les emportent au nid, consomment l’appendice, et rejettent la graine intacte sur leur dépotoir — souvent un site riche en nutriments favorable à la germination.
- Violette — élaïosome blanc bien visible
- Chélidoine — élaïosome huileux
- Hellébore, anémone hépatique, primevère
- Nombreuses plantes de sous-bois printanières
4. L’hydrochorie — dissémination par l’eau
- Flottaison — tégument imperméable renfermant de l’air (noix de coco : peut traverser un océan ; nénuphar ; aulne — les petits cônes flottent et libèrent les graines en milieu aquatique)
- Pluie (ombrochorie) — les capsules en coupe (sédum, saxifrage) ne s’ouvrent que sous l’impact des gouttes de pluie qui projettent les graines à quelques centimètres — mécanisme dit « splash-cup »
- Ruissellement — les graines sont entraînées par les eaux de surface le long des pentes
5. L’autochorie — auto-dissémination
La plante projette elle-même ses graines par des mécanismes actifs :
- Déhiscence explosive (ballochorie) — le fruit s’ouvre brutalement sous tension, éjectant les graines à plusieurs mètres :
- Impatiente (balsamine) — la capsule explose au moindre contact (d’où « impatiens » = impatient)
- Geranium — le bec se recourbe violemment, catapultant les graines
- Genêt — les gousses se vrillent brusquement au soleil par tension différentielle des fibres
- Écballium (concombre d’âne) — le fruit se détache et projette ses graines dans un jet de mucilage sous pression (jusqu’à 6 m)
- Euphorbiacées (sablier, Hura crepitans) — capsule détonante audible à plusieurs mètres
- Barochorie (gravité) — les fruits lourds tombent simplement au pied de l’arbre. La dissémination à distance dépend ensuite d’agents secondaires (animaux, pente, eau). Marron d’Inde, noix, pomme.
6. Dissémination et phytothérapie — conséquences pratiques
La stratégie de dissémination détermine en partie la disponibilité de la drogue végétale :
- Les plantes anémochores colonisent rapidement les friches et sont souvent communes (pissenlit, séneçon, épilobe) — ressource abondante
- Les plantes barochores à grosses graines (chêne, châtaignier) restent groupées en peuplements — récolte concentrée
- Les plantes myrmécochores de sous-bois (violette, hellébore) sont dispersées mais localisées — récolte ponctuelle exigeant la connaissance des stations
- Les plantes à dissémination explosive (balsamine, genêt) perdent rapidement leurs graines à maturité — la récolte doit précéder la déhiscence
Septième partie — La germination
1. Conditions de la germination
La germination est la reprise de croissance de l’embryon qui aboutit à l’émergence de la plantule. Elle nécessite trois conditions environnementales :
- Eau — l’imbibition du tégument permet la réhydratation des tissus embryonnaires et l’activation des enzymes hydrolytiques qui mobilisent les réserves
- Oxygène — la respiration aérobie fournit l’énergie nécessaire à la croissance cellulaire. Les sols engorgés inhibent la germination de la plupart des espèces.
- Température — chaque espèce a un optimum et un seuil minimal. Les espèces tempérées germent généralement entre 5 et 30 °C, avec un optimum autour de 15-20 °C.
Un quatrième facteur intervient chez certaines espèces : la lumière. Les graines photosensibles (positives) ne germent qu’à la lumière — ce qui garantit qu’elles ne sont pas enfouies trop profondément. C’est le cas de nombreuses petites graines de rudérales (laitue, digitale, tabac).
2. La dormance — un verrou adaptatif
Beaucoup de graines ne germent pas immédiatement après la dispersion, même si les conditions sont favorables. Ce délai, la dormance, évite une germination prématurée (par exemple en automne, juste avant l’hiver). Principaux types :
- Dormance tégumentaire — le tégument imperméable empêche l’entrée de l’eau. La levée nécessite une scarification mécanique (abrasion dans le tube digestif d’un animal, gel/dégel, usure dans le sol). Fabacées, Malvacées, Convolvulacées.
- Dormance embryonnaire — l’embryon est physiologiquement immature et nécessite une période de froid humide (stratification) pour achever sa maturation. C’est la dormance la plus courante en milieu tempéré. Rosacées (pommier, rosier, aubépine), Fagacées (chêne, hêtre), Acéracées.
- Dormance photochimique — la germination nécessite un signal lumineux spécifique (rapport rouge/rouge lointain) via le phytochrome. Permet de détecter la présence d’un couvert végétal.
- Dormance chimique — présence d’inhibiteurs dans le péricarpe ou le tégument qui doivent être lessivés par les pluies (composés phénoliques, ABA). Fréquent chez les Apiacées.
3. Types de germination
Germination épigée
L’hypocotyle (tige sous les cotylédons) s’allonge et soulève les cotylédons au-dessus du sol. Les cotylédons verdissent et font une photosynthèse transitoire avant que les premières vraies feuilles ne prennent le relais. Exemples : haricot, tournesol, laitue, tomate, érable.
Sur le terrain au printemps, les plantules à germination épigée se reconnaissent à leurs deux cotylédons (souvent arrondis, différents des feuilles adultes) bien visibles au-dessus du sol.
Germination hypogée
L’épicotyle (tige au-dessus des cotylédons) s’allonge tandis que les cotylédons restent sous terre ou au niveau du sol, servant uniquement de réserves sans jamais verdir. Exemples : pois, chêne, marronnier, blé (le cotylédon unique = scutellum reste enfoui).
Cette distinction est observable en semant des graines en pot : les haricots (épigée) lèvent en soulevant deux gros cotylédons verts ; les pois (hypogée) émettent directement une tige feuillée sans que les cotylédons n’apparaissent en surface.
4. Les étapes de la germination
- Imbibition — la graine absorbe de l’eau (augmentation de 50-200 % de sa masse), le tégument se ramollit
- Activation enzymatique — les gibbérellines induisent la synthèse d’amylases, protéases et lipases qui dégradent les réserves
- Élongation de la radicule — la radicule perce le tégument et s’enfonce dans le sol (géotropisme positif). C’est le premier organe visible.
- Émergence de la tigelle — l’hypocotyle (germination épigée) ou l’épicotyle (germination hypogée) s’allonge vers la lumière (phototropisme positif)
- Déploiement des cotylédons ou des premières feuilles — début de la photosynthèse, autonomie nutritive progressive
- Établissement de la plantule — apparition des premières vraies feuilles (différentes des cotylédons en forme et en taille)
5. Longévité des graines
La durée de viabilité des graines varie considérablement :
- Graines récalcitrantes — perdent rapidement leur viabilité si desséchées (chêne, châtaignier, érable, saule — quelques semaines à quelques mois). Ces espèces germent dès l’automne ou en début de printemps.
- Graines orthodoxes — supportent la dessiccation et peuvent rester viables des années voire des siècles en conditions sèches. Un coquelicot peut germer après 80 ans dans le sol ; un lotus sacré (Nelumbo nucifera) a germé après 1300 ans de conservation naturelle. Les banques de semences exploitent cette propriété.
La constitution de « banques de graines du sol » (seed bank) explique pourquoi des espèces apparemment absentes réapparaissent après un labour ou un incendie : leurs graines attendaient dans le sol depuis des années le signal de germination (lumière, chaleur).
Huitième partie — Cas particuliers et curiosités carpologiques
1. La parthénocarpie — fruits sans graines
Certains fruits se développent sans fécondation, produisant des fruits sans graines (ou à graines avortées). La banane cultivée, le raisin « sans pépins », certains agrumes et l’ananas cultivé sont parthénocarpiques. Ce phénomène peut être induit artificiellement par des hormones (auxines, gibbérellines) — technique utilisée en agriculture.
2. Les fruits myrmécochores
Chez certaines Euphorbiacées, le fruit (capsule triloculaire) éjecte explosiquement ses graines à 2-3 mètres. Chaque graine porte ensuite un élaïosome pour une seconde phase de dissémination par les fourmis — double mécanisme combinant autochorie et myrmécochorie.
3. Les cônes des Gymnospermes
Bien que les Gymnospermes (conifères) ne produisent pas de vrais fruits (pas d’ovaire clos), leurs structures de dissémination méritent mention. Le cône femelle (strobile) est formé d’écailles portant les graines à nu. À maturité, les écailles s’écartent pour libérer les graines ailées (pin, sapin) ou restent fermées en attendant un signal (pin maritime : ouverture par la chaleur d’un incendie — sérotinie).
Le genévrier (Juniperus) fait exception : ses écailles deviennent charnues et fusionnent en un pseudo-fruit (galbule) bleu-noir semblable à une baie — dispersé par les oiseaux. La « baie » de genévrier (utilisée en phytothérapie comme diurétique et antiseptique urinaire) est en réalité un cône charnu.
4. Les faux fruits complexes
- La fraise — le réceptacle convexe et charnu porte à sa surface les vrais fruits (akènes). Ce que l’on mange est un réceptacle hypertrophié.
- La figue — un réceptacle creux (sycone) enfermant des centaines de minuscules fleurs puis de minuscules akènes. La figue est une inflorescence inversée devenue infrutescence.
- L’ananas — fusion de 100 à 200 baies avec l’axe de l’inflorescence et les bractées.
- La pomme — le cœur (5 loges cartilagineuses) est le vrai fruit (péricarpe) ; la chair comestible est le réceptacle en coupe qui a englobé les carpelles.
Conclusion — le fruit comme récit écologique
Un fruit raconte une histoire. Sa forme, sa couleur, sa texture, ses appendices sont autant de réponses évolutives aux contraintes de la dissémination. Le botaniste qui apprend à lire les fruits acquiert simultanément trois compétences : identifier les familles (le type de fruit est un critère taxinomique de premier ordre), comprendre l’écologie de l’espèce (son mode de dispersion détermine son aire, sa dynamique de colonisation, ses associations), et anticiper les usages (la nature du péricarpe et de la graine détermine la partie utile en alimentation comme en phytothérapie).
De la poussière microscopique des graines d’orchidée au gland massif du chêne, du pappus aérien du pissenlit à la capsule détonante du sablier, la diversité carpologique est un hymne à l’inventivité du vivant. Et cette inventivité se lit à l’œil nu, sur le terrain, sans autre instrument que l’attention — à condition de savoir reconnaître une gousse d’un follicule, une drupe d’une baie, un akène d’un caryopse. Ce vocabulaire précis n’est pas un luxe académique : c’est la grammaire qui permet de lire le chapitre final de la vie d’une fleur.
Références
- Judd W.S., Campbell C.S., Kellogg E.A., Stevens P.F., Donoghue M.J. — Plant Systematics: A Phylogenetic Approach. 4th ed. Sinauer Associates, 2016.
- Spjut R.W. — « A systematic treatment of fruit types ». Memoirs of the New York Botanical Garden 70: 1-182, 1994.
- Fenner M., Thompson K. — The Ecology of Seeds. 2nd ed. Cambridge University Press, 2005.
- Baskin C.C., Baskin J.M. — Seeds: Ecology, Biogeography, and Evolution of Dormancy and Germination. 2nd ed. Academic Press, 2014.
- Howe H.F., Smallwood J. — « Ecology of seed dispersal ». Annual Review of Ecology and Systematics 13: 201-228, 1982.
- Van der Pijl L. — Principles of Dispersal in Higher Plants. 3rd ed. Springer, 1982.
- Bewley J.D., Bradford K.J., Hilhorst H.W.M., Nonogaki H. — Seeds: Physiology of Development, Germination and Dormancy. 3rd ed. Springer, 2013.
- Dupont F., Guignard J.-L. — Botanique : les familles de plantes. 16e éd. Elsevier Masson, 2015.
- Rameau J.-C., Mansion D., Dumé G. — Flore forestière française. 3 tomes. IDF, 1989-2008.
- Bonnier G., de Layens G. — Flore complète portative de la France, de la Suisse et de la Belgique. Belin, réédition 2015.
- Troll W. — Die Infloreszenzen. Fischer, 1964-1969. [Morphologie des inflorescences et infrutescences]
- Nathan R., Muller-Landau H.C. — « Spatial patterns of seed dispersal, their determinants and consequences for recruitment ». Trends in Ecology and Evolution 15(7): 278-285, 2000.
- Janzen D.H. — « Herbivores and the number of tree species in tropical forests ». The American Naturalist 104: 501-528, 1970.
- Giladi I. — « Choosing benefits or partners: a review of the evidence for the evolution of myrmecochory ». Oikos 112(3): 481-492, 2006.
- Linkies A., Graeber K., Knight C., Leubner-Metzger G. — « The evolution of seeds ». New Phytologist 186(4): 817-831, 2010.