Chaque feuille que l’on froisse entre ses doigts, chaque racine que l’on arrache à la terre, chaque pétale que l’on observe à la loupe est un assemblage de milliards de cellules. La cellule végétale est l’unité fondamentale du vivant chez les plantes — une micro-usine autonome, protégée par une enceinte rigide, alimentée par la lumière du soleil, et capable de fabriquer des milliers de molécules différentes. Comprendre son architecture, c’est comprendre pourquoi une plante produit des pigments, des parfums, des alcaloïdes ou des tanins — autrement dit, pourquoi les plantes nous soignent.
Cet article propose un voyage à l’intérieur de la cellule végétale, accessible à tous ceux qui s’intéressent aux plantes sans être biologistes. On y découvrira les structures qui distinguent radicalement la cellule végétale de la cellule animale, et comment chacune d’elles contribue à la vie — et à la chimie — du monde végétal.
La paroi cellulaire — une armure souple et vivante
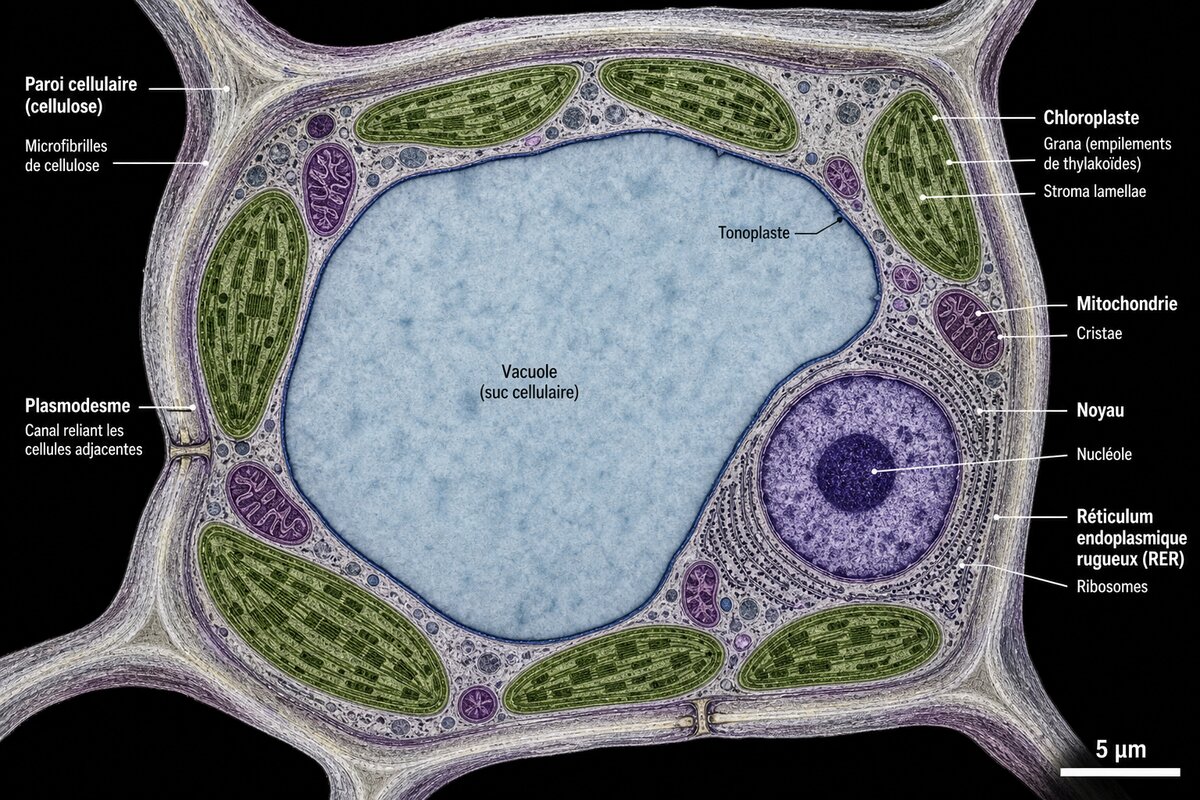
La première chose qui frappe lorsqu’on observe une cellule végétale au microscope, c’est qu’elle est enfermée dans une boîte. Cette boîte, c’est la paroi cellulaire — une structure rigide qui entoure entièrement la cellule et lui donne sa forme. Les cellules animales n’en possèdent pas : elles sont simplement enveloppées d’une fine membrane souple. C’est la raison pour laquelle un morceau de viande est mou et qu’un bout de bois est dur.
De quoi est faite la paroi ?
La paroi cellulaire est principalement constituée de cellulose, un polymère de glucose — c’est-à-dire une longue chaîne de molécules de sucre liées les unes aux autres. Ces chaînes s’assemblent en faisceaux appelés microfibrilles, comparables à des câbles d’acier microscopiques. Elles sont noyées dans une matrice de pectines (les mêmes molécules qui font prendre la confiture) et d’hémicelluloses, qui jouent le rôle de ciment entre les câbles.
On peut imaginer la paroi comme un mur en béton armé : les microfibrilles de cellulose sont les barres d’acier, les pectines et hémicelluloses sont le béton qui les enrobe. Le résultat est une structure à la fois résistante à la traction et capable d’absorber les chocs.
La paroi primaire et la paroi secondaire
Toutes les cellules végétales possèdent une paroi primaire, relativement mince et extensible. Elle se forme pendant la division cellulaire et accompagne la croissance de la cellule en s’étirant. Tant que la cellule grandit, la paroi primaire reste souple.
Certaines cellules, une fois leur croissance achevée, déposent à l’intérieur de la paroi primaire une paroi secondaire, beaucoup plus épaisse et imprégnée de lignine. La lignine est un polymère phénolique extrêmement résistant — c’est elle qui donne au bois sa dureté. Une cellule lignifiée est une cellule morte : la lignine imprègne et rigidifie sa paroi, la cellule perd son contenu vivant et son intérieur devient un tube creux. C’est exactement ce qui se passe dans le bois d’un arbre : les vaisseaux du xylème sont des files de cellules mortes, lignifiées, qui forment des tuyaux creux où circule la sève brute.
Pourquoi la paroi est-elle importante pour le phytothérapeute ?
Parce que la paroi cellulaire est le premier obstacle que rencontre l’eau lorsqu’on prépare une tisane. Pour extraire les principes actifs contenus dans la cellule — les alcaloïdes stockés dans la vacuole, les huiles essentielles accumulées dans les poches sécrétrices —, il faut d’abord que l’eau traverse cette barrière. C’est pourquoi on coupe, on broie ou on écrase les plantes avant de les infuser : on brise mécaniquement les parois pour libérer le contenu cellulaire.
Les racines et les écorces, riches en lignine, nécessitent une décoction prolongée. Les feuilles tendres, dont la paroi est mince et peu lignifiée, libèrent leurs molécules beaucoup plus facilement. La structure de la paroi détermine donc directement le mode de préparation.
La membrane plasmique — le gardien sélectif
Juste sous la paroi cellulaire se trouve la membrane plasmique (ou membrane cellulaire). Contrairement à la paroi, qui est une structure morte et poreuse, la membrane est vivante, fluide et extrêmement sélective. C’est une double couche de phospholipides — des molécules qui possèdent une tête hydrophile (qui aime l’eau) et une queue hydrophobe (qui la repousse). Ces molécules s’organisent spontanément en une bicouche dont les queues se font face, créant une barrière imperméable à la plupart des substances.
La membrane est parsemée de protéines de transport qui fonctionnent comme des portes : elles laissent entrer certaines molécules (eau, ions minéraux, sucres) et en refusent d’autres. C’est grâce à cette sélectivité que la cellule peut maintenir un milieu intérieur différent du milieu extérieur — accumuler du potassium, rejeter du sodium, concentrer des pigments ou des alcaloïdes à des niveaux parfois mille fois supérieurs à ceux du sol.
La membrane plasmique est aussi le siège de la perception de l’environnement. Des récepteurs protéiques enchâssés dans la membrane détectent les signaux extérieurs — lumière, hormones, attaque d’un pathogène — et déclenchent des réponses intracellulaires. Lorsqu’un champignon parasite tente de pénétrer une feuille, c’est la membrane qui sonne l’alarme et déclenche la production de phytoalexines, ces molécules antimicrobiennes que la plante synthétise pour se défendre.
La vacuole — le réservoir multifonction
Si l’on devait choisir une seule structure pour caractériser la cellule végétale, ce serait la vacuole centrale. Dans une cellule végétale mature, la vacuole occupe généralement 80 à 90 % du volume cellulaire. C’est un compartiment gigantesque, délimité par une membrane appelée tonoplaste, rempli d’une solution aqueuse appelée suc vacuolaire.
Un réservoir sous pression
La vacuole est gonflée d’eau, et cette eau exerce une pression considérable contre la paroi cellulaire. Cette pression, appelée pression de turgescence, est ce qui donne leur rigidité aux tissus herbacés. Lorsqu’une plante manque d’eau, les vacuoles se vident partiellement, la pression chute, et la plante fane. Arrosez-la, et en quelques heures, les vacuoles se regonflent : la plante se redresse. Ce mécanisme hydraulique remplace les os et les muscles des animaux — les plantes tiennent debout grâce à la pression de l’eau dans leurs cellules.
Un entrepôt chimique
La vacuole ne contient pas que de l’eau. Elle stocke une extraordinaire diversité de molécules :
— des sucres (glucose, fructose, saccharose), qui servent de réserves énergétiques ;
— des acides organiques (acide malique, acide citrique, acide oxalique), qui contribuent à l’acidité du suc vacuolaire — c’est l’acide citrique de la vacuole qui donne au citron son goût acide ;
— des pigments, notamment les anthocyanes, responsables des couleurs rouge, violet et bleu des fleurs, des fruits et des feuilles automnales. Ces pigments sont solubles dans l’eau et ne se trouvent que dans la vacuole ;
— des tanins, ces polyphénols au goût astringent qui protègent la plante contre les herbivores et les pathogènes. Lorsqu’on boit un thé trop infusé et qu’on ressent cette sensation de sécheresse en bouche, ce sont les tanins vacuolaires qui en sont responsables ;
— des alcaloïdes comme la caféine, la morphine ou la nicotine, synthétisés dans le cytoplasme puis séquestrés dans la vacuole pour éviter qu’ils n’empoisonnent la cellule elle-même ;
— des cristaux d’oxalate de calcium, véritables aiguilles microscopiques appelées raphides, qui transpercent la bouche des herbivores imprudents — c’est ce qui rend les feuilles d’arum ou de dieffenbachia si irritantes.
Une poubelle et un recycleur
La vacuole joue aussi le rôle de compartiment de dégradation, comparable aux lysosomes des cellules animales. Elle contient des enzymes hydrolytiques capables de décomposer des protéines, des lipides et des sucres. Les déchets métaboliques, les molécules endommagées et les toxines absorbées du sol y sont stockés et neutralisés. La vacuole est à la fois la décharge et l’usine de recyclage de la cellule.
Les chloroplastes — les capteurs solaires
Les chloroplastes sont les organites qui réalisent la photosynthèse — cette réaction extraordinaire qui transforme l’énergie lumineuse en énergie chimique. Ils sont la raison pour laquelle les plantes sont vertes, et la raison pour laquelle la vie sur Terre existe sous sa forme actuelle.
Anatomie d’un chloroplaste
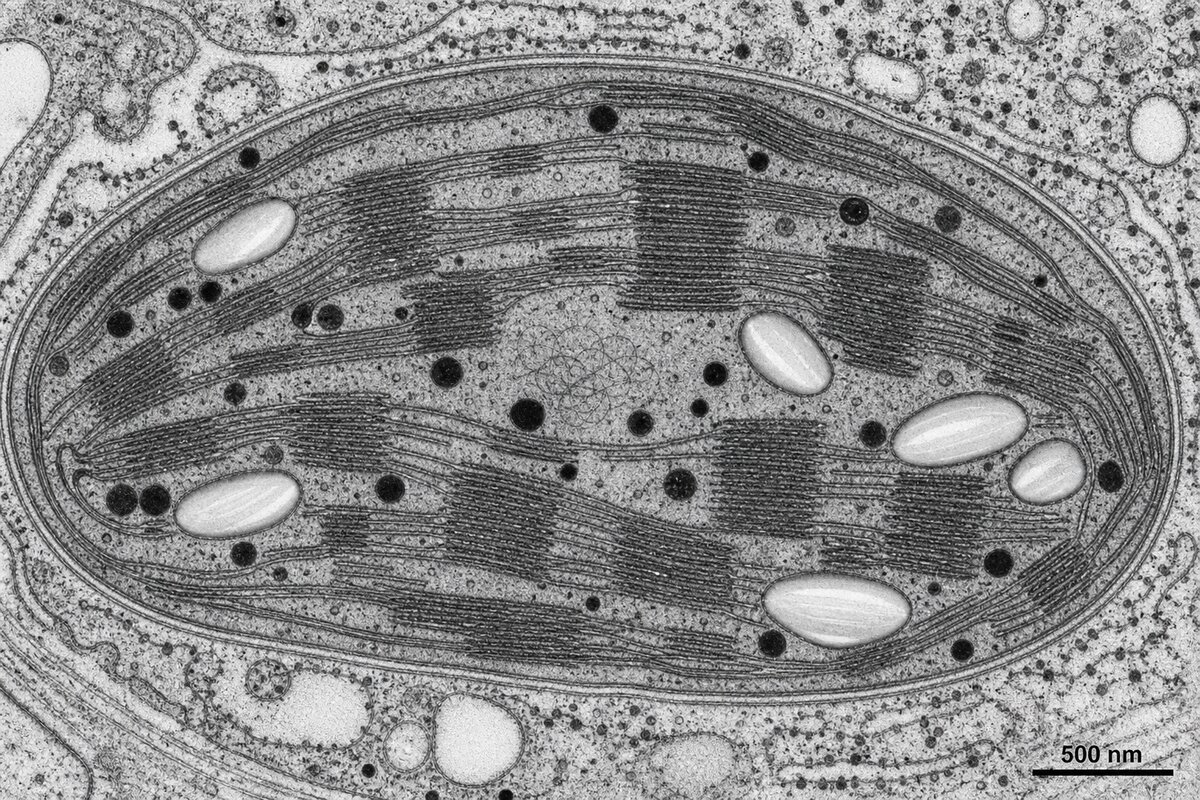
Un chloroplaste est un organite en forme de lentille, d’environ 5 micromètres de diamètre (un cheveu humain fait environ 70 micromètres). Il est entouré d’une double membrane et contient un système interne de membranes repliées appelées thylakoïdes. Ces thylakoïdes s’empilent en colonnes appelées grana (singulier : granum), reliées entre elles par des lamelles. C’est dans les membranes des thylakoïdes que se trouvent les pigments photosynthétiques — principalement la chlorophylle a et la chlorophylle b, qui absorbent la lumière rouge et bleue et réfléchissent la lumière verte (d’où la couleur des feuilles).
L’espace entre les thylakoïdes et la membrane externe du chloroplaste est rempli d’un liquide appelé stroma. C’est dans le stroma que se déroule la phase obscure de la photosynthèse — le cycle de Calvin — au cours de laquelle le CO₂ atmosphérique est fixé et transformé en molécules de sucre.
La photosynthèse en deux temps
La photosynthèse se déroule en deux grandes phases :
Phase lumineuse (dans les thylakoïdes) — La lumière frappe les molécules de chlorophylle, qui libèrent des électrons à haute énergie. Ces électrons sont transférés le long d’une chaîne de protéines membranaires, produisant de l’ATP (la monnaie énergétique de la cellule) et du NADPH (un transporteur d’électrons). En parallèle, des molécules d’eau sont scindées, libérant de l’oxygène — le déchet de la photosynthèse, mais notre gaz vital.
Phase obscure ou cycle de Calvin (dans le stroma) — L’ATP et le NADPH produits lors de la phase lumineuse sont utilisés pour fixer le CO₂ et assembler des molécules de glycéraldéhyde-3-phosphate (G3P), un sucre à trois carbones. Ces G3P servent ensuite à fabriquer du glucose, du saccharose, de l’amidon — et, en aval, toutes les molécules organiques dont la plante a besoin.
Les autres pigments
Les chloroplastes ne contiennent pas que de la chlorophylle. On y trouve aussi des caroténoïdes (β-carotène, lutéine, zéaxanthine), des pigments orange et jaunes qui remplissent deux fonctions : ils absorbent des longueurs d’onde que la chlorophylle ne capte pas (élargissant le spectre utile), et ils protègent la chlorophylle contre les dommages oxydatifs causés par un excès de lumière. Lorsqu’une feuille jaunit en automne, c’est parce que la chlorophylle se dégrade et que les caroténoïdes, jusque-là masqués, deviennent visibles.
Des chloroplastes aux chromoplastes
Les chloroplastes peuvent se transformer en chromoplastes, des organites spécialisés dans l’accumulation de pigments caroténoïdes. C’est ce qui se produit lorsqu’une tomate mûrit : les chloroplastes de la pulpe se convertissent en chromoplastes chargés de lycopène, et le fruit passe du vert au rouge. Les chromoplastes sont aussi responsables de la couleur des carottes (β-carotène), des poivrons et de nombreuses fleurs.
Dans les organes de stockage souterrains (tubercules, racines), les chloroplastes se transforment en amyloplastes, spécialisés dans l’accumulation d’amidon. C’est le cas dans les pommes de terre, les patates douces et les rhizomes de nombreuses plantes médicinales.
Le noyau — la bibliothèque centrale
Le noyau est le plus gros organite de la cellule. Délimité par une enveloppe nucléaire percée de pores, il abrite l’ADN — le code génétique complet de la plante. Chez les plantes, le génome est souvent considérablement plus grand que chez les animaux : le génome du blé contient environ 16 milliards de paires de bases, soit cinq fois plus que le génome humain.
L’ADN et les chromosomes
L’ADN est organisé en chromosomes, dont le nombre varie selon les espèces. L’arabette des dames (Arabidopsis thaliana), la plante modèle des généticiens, n’en possède que 10 (5 paires). Le blé tendre en compte 42 (21 paires), héritage de trois ancêtres sauvages dont les génomes ont fusionné au fil de l’évolution. Certaines fougères détiennent des records avec plus de 1 000 chromosomes.
L’ADN porte les gènes, c’est-à-dire les instructions pour fabriquer les protéines. Parmi ces protéines, on trouve les enzymes — les ouvrières moléculaires qui catalysent toutes les réactions chimiques de la cellule, y compris la synthèse des métabolites secondaires qui intéressent le phytothérapeute.
Le nucléole
À l’intérieur du noyau se trouve le nucléole, une zone dense où sont fabriqués les ribosomes — les machines qui traduisent l’information génétique en protéines. Le nucléole est particulièrement volumineux dans les cellules très actives, comme les cellules méristématiques des bourgeons, qui se divisent intensément.
La polyploïdie — une particularité végétale
Une caractéristique remarquable des plantes est leur capacité à tolérer — et même à exploiter — la polyploïdie, c’est-à-dire la multiplication du nombre complet de chromosomes. Alors que la polyploïdie est presque toujours fatale chez les animaux, elle est extrêmement fréquente chez les plantes : on estime que 70 % des angiospermes ont subi au moins un épisode de polyploïdisation au cours de leur histoire évolutive.
La polyploïdie entraîne souvent une augmentation de la taille des cellules, des organes et de la plante entière. Elle peut aussi modifier la production de métabolites secondaires : certaines variétés polyploïdes de Artemisia annua produisent davantage d’artémisinine que leurs homologues diploïdes. Cette observation a des implications directes pour la sélection de plantes médicinales à haute teneur en principes actifs.
Les mitochondries — les centrales énergétiques
Les mitochondries sont présentes dans toutes les cellules eucaryotes, végétales comme animales. Elles sont le siège de la respiration cellulaire, le processus qui dégrade le glucose pour produire de l’ATP, la molécule universelle de l’énergie.
La respiration cellulaire
La respiration cellulaire est, en quelque sorte, l’inverse de la photosynthèse :
— la photosynthèse utilise le CO₂ et l’eau pour fabriquer du glucose et libérer de l’O₂ ;
— la respiration utilise le glucose et l’O₂ pour produire de l’énergie (ATP), du CO₂ et de l’eau.
La nuit, quand la photosynthèse s’arrête faute de lumière, les mitochondries continuent de fonctionner. C’est pourquoi on dit parfois que les plantes « respirent » la nuit — elles consomment de l’oxygène et rejettent du CO₂, exactement comme nous. En journée, la photosynthèse produit beaucoup plus d’O₂ que la respiration n’en consomme, si bien que le bilan net est largement positif : les plantes sont bien des productrices d’oxygène.
Une double origine
Les mitochondries — comme les chloroplastes — possèdent leur propre ADN, distinct de celui du noyau. C’est un vestige de leur origine : selon la théorie endosymbiotique de Lynn Margulis, les mitochondries étaient à l’origine des bactéries libres, capables de respirer l’oxygène, qui ont été englouties par une cellule ancestrale il y a environ deux milliards d’années. Au lieu d’être digérées, elles se sont installées comme des locataires permanents, échangeant leurs services énergétiques contre la protection et les nutriments de la cellule hôte. Les chloroplastes ont une origine similaire : ce sont d’anciennes cyanobactéries photosynthétiques intégrées par endosymbiose.
Cette double origine explique pourquoi les mitochondries et les chloroplastes se divisent indépendamment du noyau, possèdent des ribosomes de type bactérien et sont sensibles à certains antibiotiques — un détail qui a son importance en phytothérapie, car certaines molécules végétales antimicrobiennes ciblent précisément ces structures d’origine bactérienne.
Le réticulum endoplasmique et l’appareil de Golgi — l’usine de transformation
Le réticulum endoplasmique
Le réticulum endoplasmique (RE) est un réseau de membranes repliées qui s’étend dans tout le cytoplasme, en continuité avec l’enveloppe nucléaire. Il existe sous deux formes :
— le RE rugueux, hérissé de ribosomes sur sa face externe, où sont synthétisées les protéines destinées à être sécrétées ou insérées dans les membranes ;
— le RE lisse, dépourvu de ribosomes, spécialisé dans la synthèse des lipides et dans la détoxification. C’est dans le RE lisse que sont assemblées de nombreuses molécules aromatiques et que fonctionnent les cytochromes P450, une famille d’enzymes essentielles dans la biosynthèse des métabolites secondaires. Ces enzymes catalysent des réactions d’oxydation qui transforment des précurseurs simples en molécules complexes — terpènes, alcaloïdes, flavonoïdes.
L’appareil de Golgi
L’appareil de Golgi (ou dictyosome, dans la terminologie botanique) est une pile de sacs membraneux aplatis appelés citernes. Il reçoit les protéines et les lipides fabriqués par le réticulum endoplasmique, les modifie (glycosylation, phosphorylation), les trie et les expédie vers leur destination finale : membrane plasmique, vacuole ou sécrétion hors de la cellule.
Chez les plantes, l’appareil de Golgi joue un rôle particulièrement important dans la synthèse des polysaccharides de la paroi cellulaire. Les pectines et les hémicelluloses sont fabriquées dans les citernes golgiennes, puis transportées dans des vésicules jusqu’à la surface de la cellule, où elles sont intégrées à la paroi en croissance. Chaque cellule végétale possède des dizaines, voire des centaines de dictyosomes, témoignant de l’intensité de cette activité de construction.
Les plasmodesmes — le réseau de communication
Les cellules végétales ne sont pas des entités isolées. Elles communiquent entre elles grâce à des plasmodesmes, de minuscules canaux qui traversent la paroi cellulaire et connectent les cytoplasmes de cellules adjacentes. Chaque plasmodesme est un tube d’environ 50 nanomètres de diamètre, tapissé par la membrane plasmique et traversé par un fin tubule de réticulum endoplasmique appelé desmotubule.
Un réseau continu : le symplasme
L’ensemble des cytoplasmes interconnectés par les plasmodesmes forme un continuum appelé symplasme. Ce réseau permet la circulation directe de petites molécules — sucres, acides aminés, ions, hormones — d’une cellule à l’autre sans avoir à traverser la membrane plasmique. C’est par le symplasme que circulent les signaux de défense lorsqu’une feuille est attaquée : un signal chimique émis par une cellule blessée peut se propager de proche en proche à travers les plasmodesmes, alertant les cellules voisines et déclenchant la production de molécules de défense bien avant que le pathogène n’atteigne ces cellules.
Un système régulé
Les plasmodesmes ne sont pas de simples trous. Leur ouverture est finement régulée : en cas d’infection virale, par exemple, les cellules saines peuvent réduire le diamètre de leurs plasmodesmes pour limiter la propagation du virus. Inversement, certains virus ont évolué des protéines spécialisées (les protéines de mouvement) capables de forcer l’ouverture des plasmodesmes pour envahir les cellules voisines — une course aux armements moléculaire entre la plante et ses parasites.
Le cytosquelette — la charpente intérieure
Contrairement à ce que l’on pourrait croire, l’intérieur de la cellule n’est pas une simple soupe de molécules. Il est structuré par un réseau de filaments protéiques appelé cytosquelette, qui assure trois fonctions essentielles : le maintien de la forme cellulaire, le transport intracellulaire et la division cellulaire.
Chez les plantes, le cytosquelette est composé de deux types principaux de filaments :
— les microtubules, des tubes creux de 25 nanomètres de diamètre formés par la polymérisation de tubuline. Ils guident le dépôt des microfibrilles de cellulose dans la paroi cellulaire (et donc la direction de croissance de la cellule) et orchestrent la séparation des chromosomes pendant la division cellulaire ;
— les filaments d’actine (ou microfilaments), plus fins (7 nm), qui créent des courants cytoplasmiques appelés cyclose. La cyclose est un mouvement circulaire du cytoplasme, visible au microscope, qui distribue les organites, les nutriments et les enzymes dans toute la cellule. Dans les grandes cellules végétales, dont certaines peuvent atteindre plusieurs centimètres de long (comme les fibres de lin ou de ramie), la cyclose est indispensable pour que les molécules atteignent les régions éloignées du noyau.
Fait notable : les cellules végétales ne possèdent pas de centrosomes, ces organisateurs de microtubules présents dans les cellules animales. Les microtubules s’assemblent à partir de la surface du noyau et du cortex cellulaire, ce qui donne aux divisions cellulaires végétales un aspect différent — avec notamment la formation d’une structure unique appelée phragmoplaste, qui guide la construction de la nouvelle paroi entre les deux cellules filles.
Les métabolites secondaires — la pharmacie de la cellule
Si la cellule végétale intéresse autant le phytothérapeute, c’est parce qu’elle est le lieu de synthèse d’une prodigieuse diversité de métabolites secondaires — des molécules qui ne sont pas directement nécessaires à la croissance ou à la reproduction, mais qui confèrent à la plante un avantage adaptatif considérable.
Trois grandes familles
Les métabolites secondaires se répartissent en trois grands groupes, chacun issu d’une voie de biosynthèse différente :
Les terpénoïdes — Synthétisés à partir de l’isopentényl pyrophosphate (IPP), soit dans le cytoplasme (voie du mévalonate), soit dans les chloroplastes (voie du MEP). Cette famille compte plus de 80 000 molécules connues et inclut les monoterpènes des huiles essentielles (menthol, thymol, linalol), les diterpènes (taxol, forskoline), les triterpènes (acide ursolique, acide oléanolique), les caroténoïdes et les stéroïdes végétaux (phytostérols, saponines).
Les composés phénoliques — Issus de la voie du shikimate et de la voie des phénylpropanoïdes. Cette famille englobe les acides phénoliques (acide rosmarinique, acide chlorogénique), les flavonoïdes (quercétine, rutine, apigénine), les tanins (condensés et hydrolysables), les lignanes, les stilbènes (resvératrol) et les coumarines.
Les alcaloïdes — Dérivés d’acides aminés (tryptophane, tyrosine, lysine, ornithine), ces molécules azotées sont souvent de puissants principes actifs pharmacologiques. On y trouve la morphine, la caféine, la colchicine, la vincristine, l’atropine, la berbérine et des milliers d’autres molécules. Ils sont généralement synthétisés dans le cytoplasme ou le réticulum endoplasmique, puis séquestrés dans la vacuole.
Où sont-ils fabriqués et stockés ?
La synthèse des métabolites secondaires mobilise plusieurs compartiments cellulaires :
— les chloroplastes fabriquent les terpénoïdes de la voie MEP et les précurseurs phénoliques ;
— le réticulum endoplasmique lisse, avec ses cytochromes P450, modifie et diversifie ces précurseurs ;
— la vacuole stocke les produits finis (anthocyanes, alcaloïdes, tanins) ;
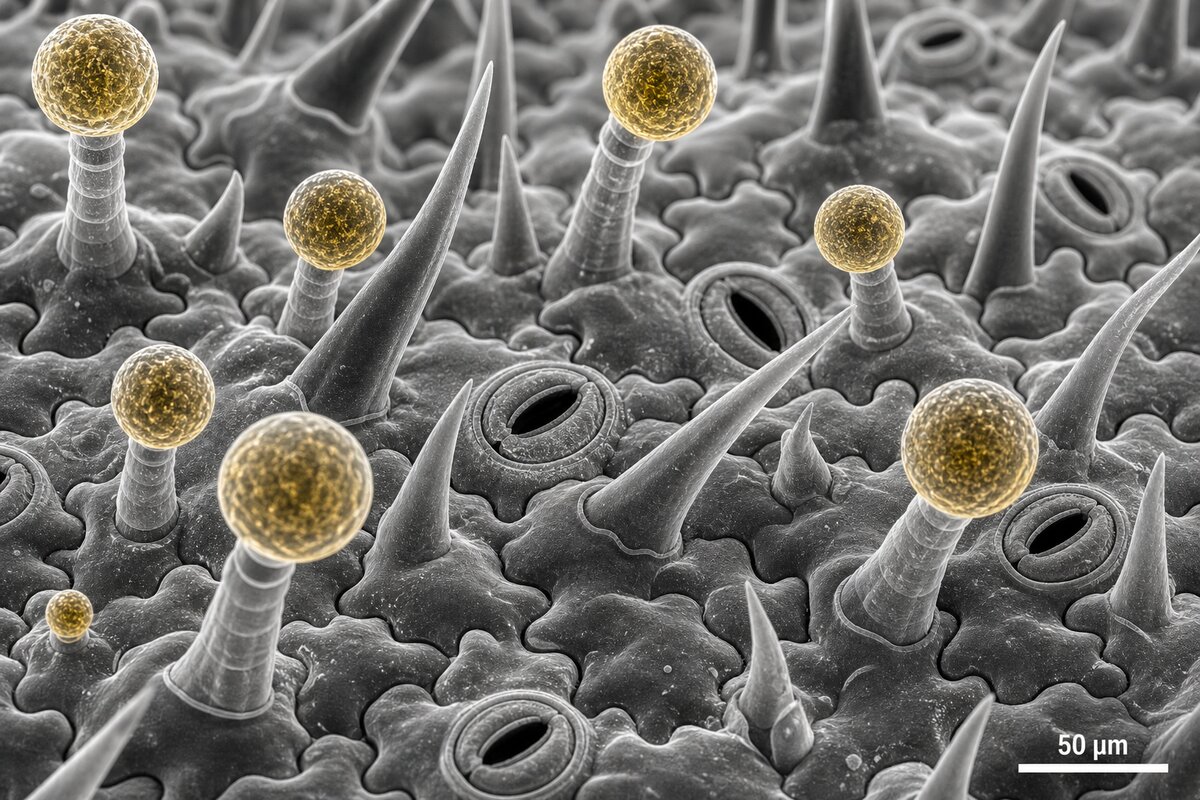
— les trichomes glandulaires (poils sécréteurs à la surface des feuilles et des tiges) accumulent les huiles essentielles dans une poche entre la paroi et la cuticule. Lorsqu’on frotte une feuille de menthe ou de lavande, ce sont ces trichomes qui éclatent et libèrent leur contenu aromatique ;
— les canaux sécréteurs (chez les Apiacées, les Astéracées, les Pinacées) et les laticifères (chez les Euphorbiacées, les Moracées, les Papavéracées) stockent respectivement des résines et du latex chargés en molécules actives.
Cellule végétale et cellule animale — les différences essentielles
Pour bien comprendre ce qui fait la singularité de la cellule végétale, il est utile de la comparer à la cellule animale. Toutes deux sont des cellules eucaryotes (dotées d’un noyau délimité par une enveloppe), mais elles diffèrent sur plusieurs points fondamentaux :
La paroi cellulaire — Présente chez les végétaux (cellulose + lignine), absente chez les animaux. C’est elle qui confère rigidité et forme aux cellules végétales.
La vacuole centrale — Les cellules végétales possèdent une immense vacuole centrale qui occupe la majeure partie du volume cellulaire. Les cellules animales ne possèdent que de petites vésicules.
Les plastes — Chloroplastes, chromoplastes, amyloplastes : ces organites n’existent que chez les végétaux. Ils descendent tous d’un proplaste indifférencié.
Les plasmodesmes — Les cellules végétales communiquent par des plasmodesmes. Les cellules animales utilisent des jonctions communicantes (gap junctions), structuralement très différentes.
La division cellulaire — Chez les animaux, la cellule se divise par étranglement (cytocinèse par sillon de clivage). Chez les végétaux, une nouvelle paroi est construite de l’intérieur vers l’extérieur grâce au phragmoplaste. La paroi rigide empêche tout étranglement.
Les centrosomes — Présents chez les animaux pour organiser les microtubules, absents chez la plupart des plantes à fleurs.
Les lysosomes — Organites de dégradation bien individualisés chez les animaux. Chez les végétaux, c’est la vacuole qui assume cette fonction.
Le stockage de l’énergie — Les animaux stockent l’énergie sous forme de glycogène. Les végétaux utilisent l’amidon, un polymère de glucose structurellement différent.
La cellule végétale, entre permanence et plasticité
L’une des propriétés les plus remarquables de la cellule végétale est sa totipotence : contrairement aux cellules animales, qui se spécialisent de façon généralement irréversible, une cellule végétale différenciée peut, dans les bonnes conditions, retrouver un état indifférencié et régénérer une plante entière. C’est le principe du bouturage et de la culture in vitro. Une simple cellule prélevée sur une feuille de carotte, placée dans un milieu nutritif avec les bonnes hormones, peut reconstituer une plante complète — racines, tige, feuilles et fleurs.
Cette plasticité cellulaire explique aussi pourquoi les plantes peuvent modifier leur chimie en réponse à l’environnement. Une même espèce, cultivée à deux altitudes différentes ou dans deux types de sol, ne produira pas exactement les mêmes métabolites secondaires. Le stress hydrique, le froid, l’exposition aux UV, l’attaque d’herbivores — tous ces facteurs modifient l’expression des gènes dans le noyau, ce qui modifie l’activité des enzymes dans le cytoplasme et le réticulum, ce qui modifie la composition de la vacuole et des trichomes. La cellule végétale est un système dynamique, en perpétuelle adaptation.
C’est cette plasticité qui rend la phytothérapie à la fois si riche et si complexe : la « même » plante n’est jamais tout à fait la même, parce que ses cellules répondent en temps réel aux conditions dans lesquelles elles vivent.
Bibliographie
Alberts, B., Johnson, A., Lewis, J., Raff, M., Roberts, K. & Walter, P. (2014). Molecular Biology of the Cell, 6ᵉ édition. Garland Science. L’ouvrage de référence en biologie cellulaire, avec des chapitres détaillés sur les organites, les membranes et le cytosquelette.
Taiz, L., Zeiger, E., Møller, I.M. & Murphy, A. (2022). Plant Physiology and Development, 7ᵉ édition. Oxford University Press. Le manuel de physiologie végétale le plus complet, couvrant la photosynthèse, la respiration, le transport, la croissance et les métabolites secondaires.
Buchanan, B.B., Gruissem, W. & Jones, R.L. (2015). Biochemistry and Molecular Biology of Plants, 2ᵉ édition. Wiley-Blackwell. Référence incontournable pour la biochimie végétale, de la paroi cellulaire aux voies de biosynthèse des métabolites secondaires.
Raven, P.H., Evert, R.F. & Eichhorn, S.E. (2013). Biology of Plants, 8ᵉ édition. W.H. Freeman. Manuel classique de botanique, excellent pour les descriptions anatomiques et morphologiques de la cellule végétale.
Margulis, L. (1970). Origin of Eukaryotic Cells. Yale University Press. L’ouvrage fondateur de la théorie endosymbiotique, qui explique l’origine bactérienne des mitochondries et des chloroplastes.
Wink, M. (2010). Functions and Biotechnology of Plant Secondary Metabolites. Annual Plant Reviews, vol. 39. Wiley-Blackwell. Synthèse sur les rôles écologiques et les applications des métabolites secondaires, avec une attention particulière aux compartiments cellulaires de synthèse et de stockage.
Croteau, R., Kutchan, T.M. & Lewis, N.G. (2000). Natural products (secondary metabolites). In Biochemistry and Molecular Biology of Plants (Buchanan et al., eds), pp. 1250-1318. American Society of Plant Physiologists. Chapitre fondamental sur les trois grandes familles de métabolites secondaires et leurs voies de biosynthèse.
Robards, A.W. & Lucas, W.J. (1990). Plasmodesmata. Annual Review of Plant Physiology and Plant Molecular Biology, 41 : 369-419. Article de revue qui a fondé la compréhension moderne des plasmodesmes et du symplasme.
Cosgrove, D.J. (2005). Growth of the plant cell wall. Nature Reviews Molecular Cell Biology, 6 : 850-861. Synthèse sur la structure et la croissance de la paroi cellulaire, de la cellulose aux pectines.
Martinoia, E., Maeshima, M. & Neuhaus, H.E. (2007). Vacuolar transporters and their essential role in plant metabolism. Journal of Experimental Botany, 58(1) : 83-102. Article de revue sur les fonctions de la vacuole, ses transporteurs et son rôle dans le stockage des métabolites secondaires.