Coupez une tige de vigne au printemps et observez : en quelques secondes, un liquide translucide perle à la surface de la coupe, s’accumule en gouttelettes, puis s’écoule le long de l’écorce. Ce liquide, c’est la sève brute — de l’eau chargée de sels minéraux que les racines ont puisée dans le sol et qui montait vers les feuilles. Coupez maintenant la même vigne en été, au crépuscule, et grattez l’écorce d’une branche : un liquide plus visqueux, légèrement sucré, suinte des tissus internes. C’est la sève élaborée — un concentré de saccharose et d’acides aminés fabriqué dans les feuilles et redistribué à toute la plante. Deux sèves, deux réseaux de vaisseaux, un seul organisme.
Ce sixième volet de notre série Bases botaniques explore l’architecture vasculaire des plantes — du premier vaisseau primitif apparu il y a 430 millions d’années jusqu’aux implications directes pour la récolte des plantes médicinales et la gemmothérapie. Comprendre comment circule la sève, c’est comprendre comment se distribuent les principes actifs, pourquoi la saison de récolte change tout, et pourquoi un bourgeon concentre davantage de molécules qu’une feuille adulte.
Deux réseaux, un organisme — vue d’ensemble du système vasculaire
Les plantes vasculaires (Tracheophyta) se distinguent des mousses et des hépatiques par la possession de deux tissus conducteurs spécialisés : le xylème et le phloème. Ensemble, ils forment les faisceaux vasculaires (ou faisceaux conducteurs) qui parcourent la plante de la pointe des racines jusqu’aux nervures des feuilles, comme un réseau d’autoroutes reliant chaque organe à tous les autres.
Le xylème — la voie ascendante
Le xylème transporte la sève brute (ou sève xylémienne) des racines vers les parties aériennes. Cette sève est composée principalement d’eau (plus de 99 %) et de sels minéraux dissous — nitrates, phosphates, potassium, calcium, magnésium, fer, manganèse, et les oligo-éléments que la plante absorbe par ses poils absorbants. Le flux est essentiellement unidirectionnel et ascendant, bien que de faibles mouvements latéraux existent via les rayons médullaires.
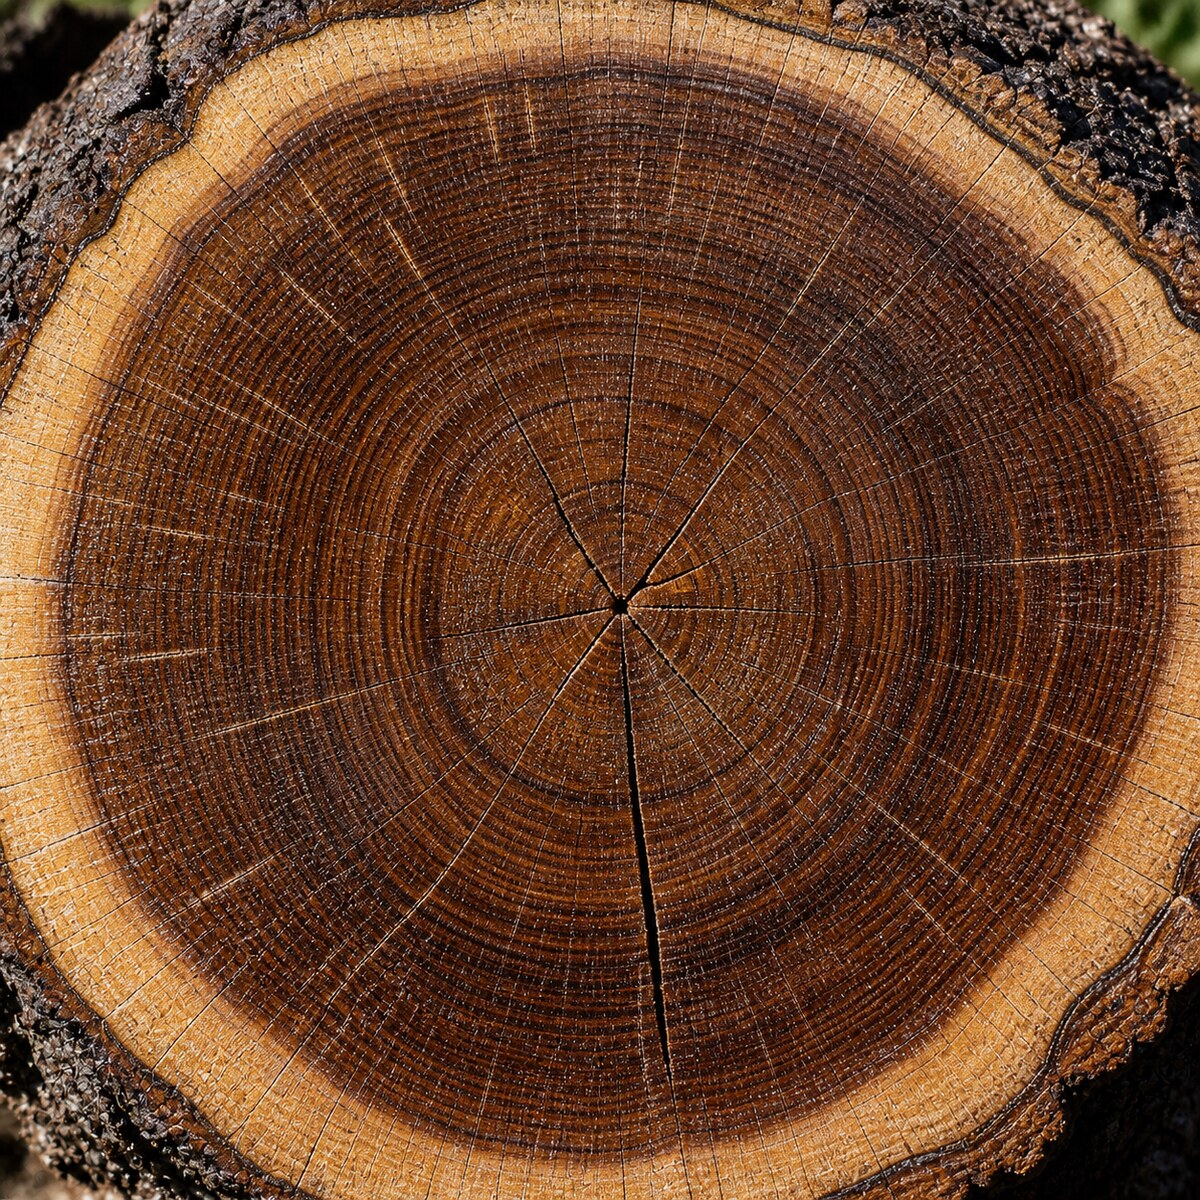
Le mot « xylème » vient du grec xylon, « bois ». Ce n’est pas un hasard : chez les arbres, le bois n’est rien d’autre que du xylème secondaire accumulé année après année. Chaque cerne de croissance que l’on compte sur la tranche d’un tronc est une couche de xylème produite en une saison de végétation.
Le phloème — la voie descendante (et pas seulement)
Le phloème transporte la sève élaborée (ou sève phloémienne) depuis les organes photosynthétiques — les sources (essentiellement les feuilles matures) — vers les organes consommateurs ou de stockage — les puits (racines, fruits, bourgeons, méristèmes, tubercules). Le flux n’est pas strictement descendant : au printemps, les réserves de l’aubier et des racines remontent via le phloème vers les bourgeons en débourrement. La direction du transport phloémien dépend de la relation source-puits du moment.
Le mot « phloème » vient du grec phloios, « écorce ». En effet, le phloème fonctionnel se trouve toujours dans la zone interne de l’écorce, immédiatement sous le liège. C’est pourquoi l’annélation d’un arbre — le retrait d’un anneau complet d’écorce autour du tronc — le tue : elle interrompt le transport de sève élaborée vers les racines, qui meurent de faim en quelques mois.
Organisation dans la tige
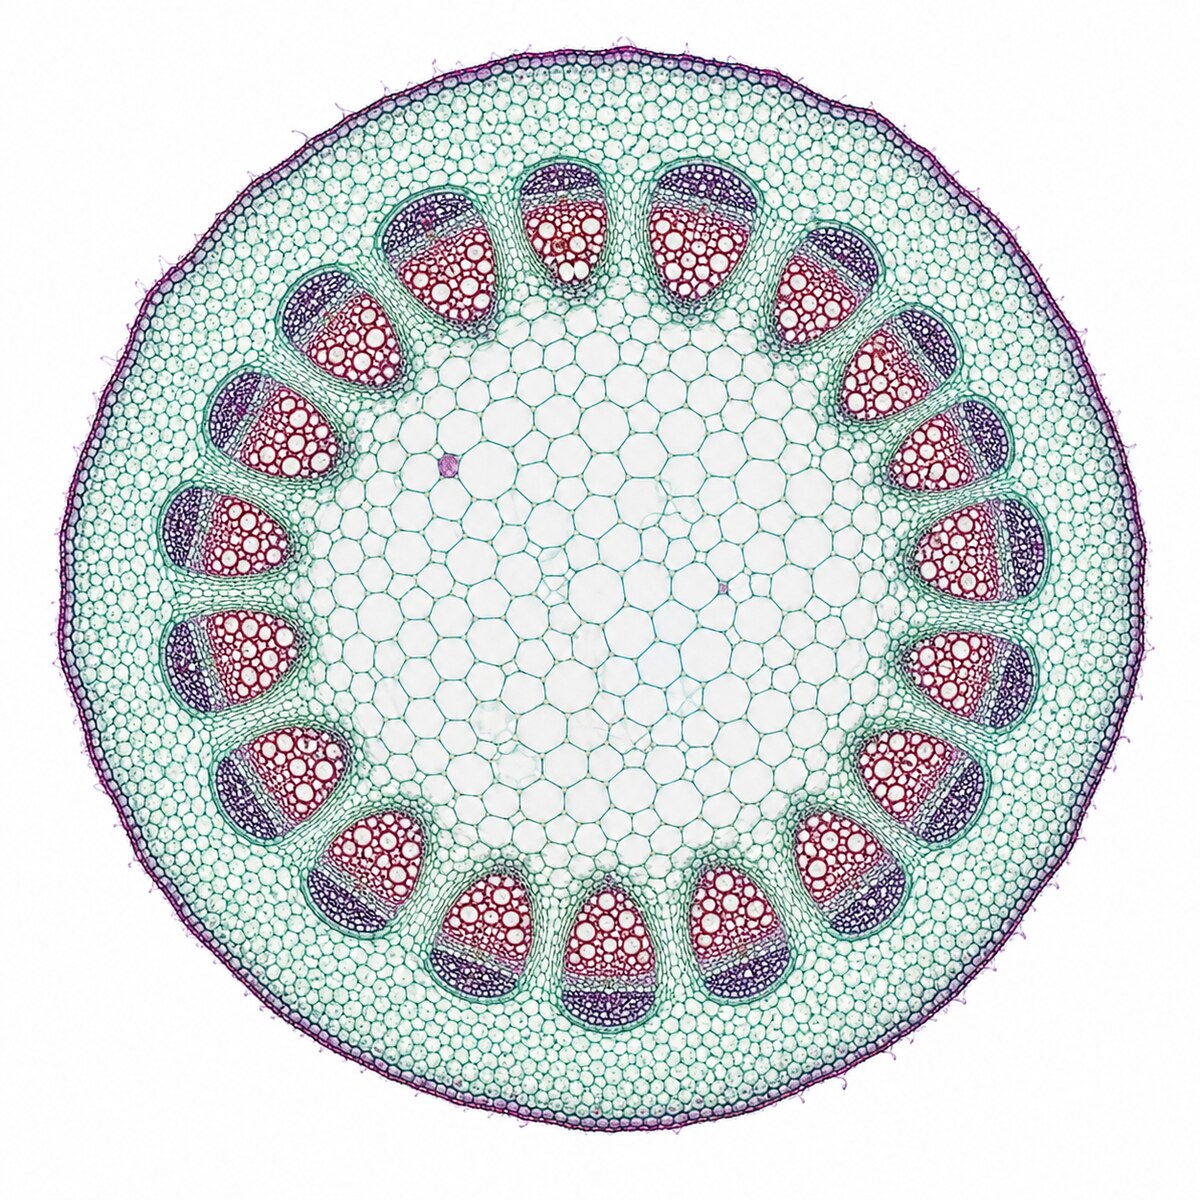
Chez les dicotylédones, les faisceaux vasculaires sont disposés en anneau autour de la moelle centrale. Le xylème est situé vers l’intérieur (côté moelle) et le phloème vers l’extérieur (côté écorce). Entre les deux se trouve le cambium vasculaire, un méristème latéral qui produit du xylème secondaire vers l’intérieur et du phloème secondaire vers l’extérieur. Cette organisation permet la croissance en épaisseur — c’est pourquoi les troncs de chêne ou de noyer s’épaississent d’année en année.
Chez les monocotylédones (graminées, lis, orchidées, palmiers), les faisceaux vasculaires sont dispersés dans le parenchyme médullaire sans organisation annulaire, et il n’y a généralement pas de cambium vasculaire. C’est pourquoi un palmier, bien qu’il puisse atteindre 30 mètres de haut, conserve à peu près le même diamètre de tronc toute sa vie — il ne produit pas de bois secondaire.
Chez les racines, l’organisation est différente : le xylème forme une étoile centrale (diarque, triarque, tétraque ou polyarque selon les espèces) et le phloème occupe les espaces entre les branches de cette étoile. Cette disposition alterne facilite l’absorption radiale de l’eau depuis le sol.
Le xylème — anatomie des conducteurs de sève brute
Le xylème est un tissu complexe composé de plusieurs types cellulaires : les éléments conducteurs (trachéides et éléments de vaisseau), les fibres de soutien et les cellules de parenchyme. Les éléments conducteurs sont les plus remarquables, car ils sont morts à maturité — un paradoxe apparent que l’évolution a résolu de manière élégante.
Les trachéides — le système primitif
Les trachéides sont les éléments conducteurs les plus anciens, présents chez toutes les plantes vasculaires depuis le Silurien supérieur (environ 430 millions d’années). Ce sont des cellules allongées, fusiformes, de 1 à 5 millimètres de long et de 10 à 50 micromètres de diamètre. À maturité, elles ont perdu leur contenu cellulaire (noyau, cytoplasme, vacuole) : il ne reste que la paroi cellulaire lignifiée, rigide et imperméable, formant un tube creux.
L’eau circule d’une trachéide à l’autre non pas par des ouvertures franches, mais à travers des zones amincies de la paroi appelées ponctuations. Chez les conifères, ces ponctuations possèdent une structure particulièrement sophistiquée — les ponctuations aréolées — dotées d’un torus central (un épaississement en forme de disque) qui fonctionne comme une valve de sécurité : si une trachéide se remplit d’air (embolie), le torus s’applique contre l’ouverture et isole la trachéide défaillante, empêchant la bulle d’air de se propager aux trachéides voisines.
Les trachéides assurent à la fois la conduction de l’eau et le soutien mécanique. C’est le seul type d’élément conducteur chez les gymnospermes (conifères, ginkgo, cycas), ce qui explique pourquoi le bois de pin ou de sapin a une structure relativement homogène au microscope — pas de gros vaisseaux, seulement des rangées régulières de trachéides.
Les éléments de vaisseau — l’innovation des angiospermes
Les éléments de vaisseau (ou éléments de trachée) représentent une innovation majeure apparue chez les angiospermes il y a environ 130 millions d’années. Ce sont des cellules plus courtes et plus larges que les trachéides (20 à 500 micromètres de diamètre, parfois davantage chez les lianes), dont les parois terminales sont partiellement ou totalement dissoutes pour former des perforations. Plusieurs éléments de vaisseau alignés bout à bout constituent un vaisseau (ou trachée), véritable tube continu qui peut mesurer de quelques centimètres à plusieurs mètres de long — et jusqu’à 10 mètres chez certains chênes.
La perforation des parois terminales réduit considérablement la résistance au flux hydrique. C’est pourquoi les angiospermes peuvent transporter l’eau beaucoup plus efficacement que les conifères — un avantage décisif qui a contribué à leur domination écologique dans la plupart des biomes terrestres. Le débit d’un vaisseau large de chêne est environ 10 000 fois supérieur à celui d’une trachéide de pin de même longueur.
En contrepartie, les vaisseaux larges sont plus vulnérables à l’embolie par cavitation : une bulle d’air peut se propager facilement à travers les perforations et bloquer tout le vaisseau. C’est un compromis fondamental dans l’évolution des plantes : efficacité hydraulique contre sécurité hydraulique. Les espèces de milieux secs (xérophytes) possèdent généralement des vaisseaux plus étroits et plus nombreux — moins efficaces unitairement, mais plus résistants à la cavitation et facilement remplaçables si l’un d’entre eux est embolisé.
La lignine — la molécule qui a changé le monde
Les parois des trachéides et des éléments de vaisseau sont imprégnées de lignine, un polymère phénolique complexe qui représente 20 à 35 % de la masse sèche du bois. La lignine confère aux parois cellulaires leur rigidité, leur imperméabilité et leur résistance à la dégradation microbienne. C’est la deuxième molécule organique la plus abondante sur Terre après la cellulose, et son apparition au Dévonien (il y a environ 400 millions d’années) a été l’un des événements les plus transformateurs de l’histoire du vivant.
Avant la lignine, les plantes terrestres ne pouvaient pas dépasser quelques centimètres de hauteur — elles n’avaient pas de support rigide pour résister à la gravité ni de conduits imperméables pour transporter l’eau sur de longues distances. La lignine a rendu possible la verticalité : les premières forêts (Archaeopteris, au Dévonien supérieur), la course vers la lumière, et — conséquence inattendue — la séquestration massive de carbone qui a contribué à la glaciation permienne et à l’oxygénation de l’atmosphère terrestre.
Pour le phytothérapeute, la lignine a une importance pratique directe : elle est indigestible pour l’organisme humain (et pour la plupart des organismes, à l’exception de certains champignons lignivores et bactéries du sol). Les parties très lignifiées d’une plante — bois dur, écorce épaisse — libèrent leurs principes actifs beaucoup plus lentement que les parties tendres (feuilles, fleurs). C’est pourquoi les décoctions (ébullition prolongée) sont nécessaires pour extraire les principes actifs des racines et des écorces, alors qu’une simple infusion à départ froid suffit pour les feuilles et les fleurs.
Les épaississements pariétaux — spirales, anneaux et réticulations
La paroi secondaire des éléments du xylème n’est pas déposée uniformément. Selon le stade de développement de l’organe, la lignine forme des motifs caractéristiques visibles au microscope :
— les épaississements annulaires : anneaux de lignine séparés par des zones non lignifiées. Ce sont les premiers éléments formés dans les organes en croissance active (protoxylème). L’espacement entre les anneaux permet à la cellule de s’allonger sans être contrainte par sa paroi rigide ;
— les épaississements spiralés (hélicoïdaux) : une ou deux spirales de lignine enroulées comme un ressort. Comme les anneaux, ils permettent l’élongation cellulaire et caractérisent le protoxylème ;
— les épaississements réticulés : un réseau irrégulier de bandes lignifiées formant un filet. Ils caractérisent le métaxylème, formé après que l’élongation de l’organe est terminée ;
— les épaississements ponctués (scalariformes ou en opposition) : la paroi est presque entièrement lignifiée, à l’exception de petites zones amincies (ponctuations). Ce sont les éléments les plus efficaces pour la conduction et le soutien, caractéristiques du métaxylème tardif et du xylème secondaire.
Ces motifs sont si caractéristiques qu’ils permettent d’identifier au microscope le type de tissu et parfois même l’espèce végétale — un outil précieux en pharmacognosie pour authentifier les drogues végétales (poudres de racines, écorces séchées).
La montée de la sève brute — un défi physique colossal
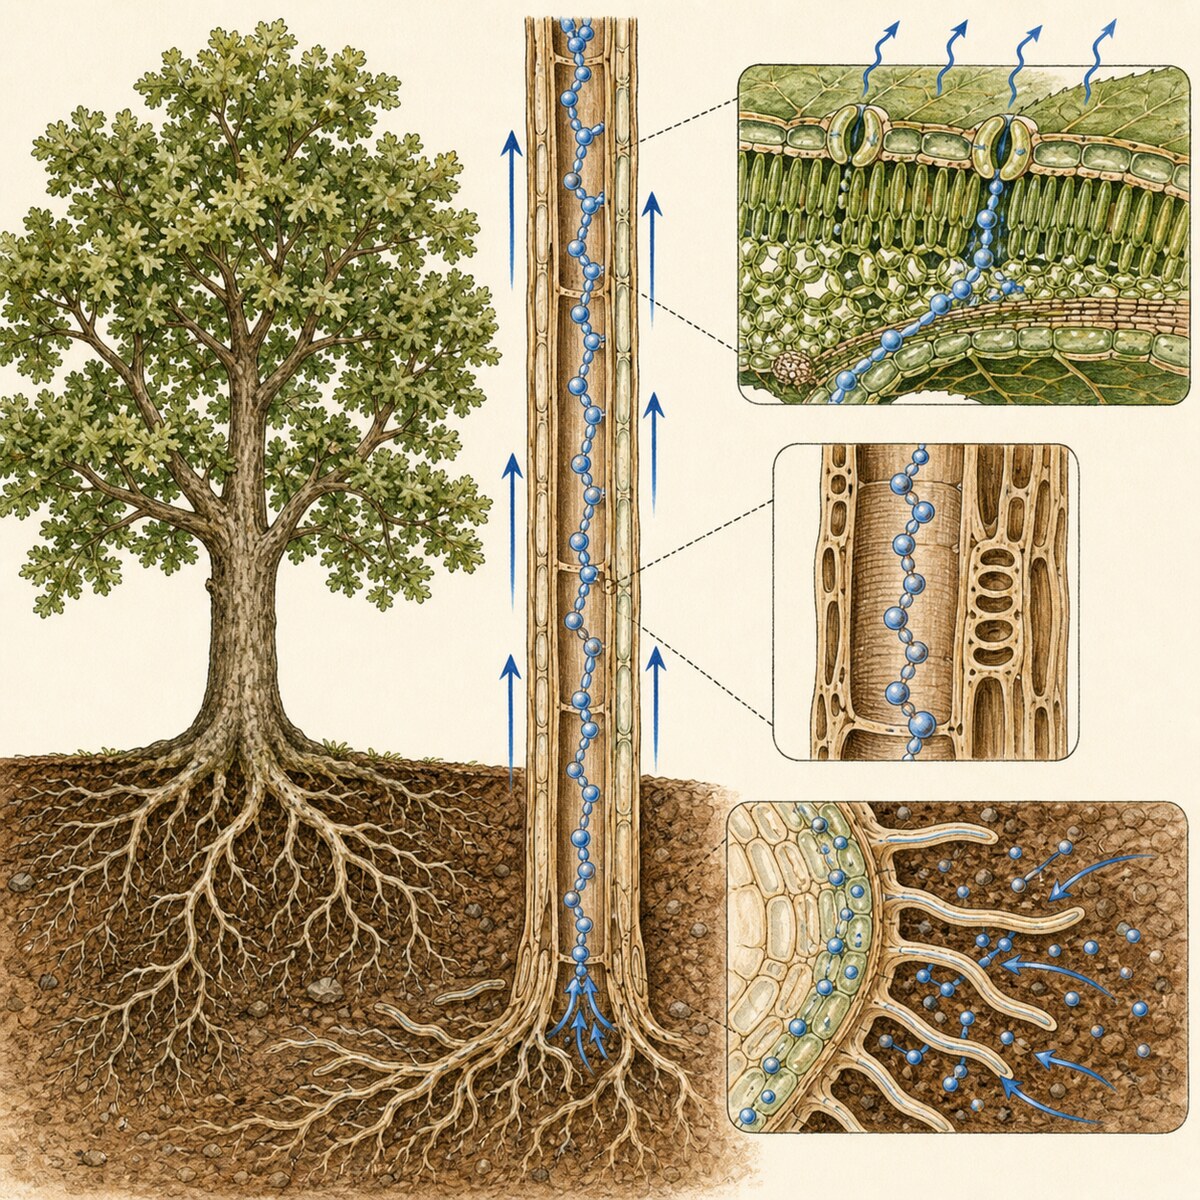
Comment l’eau monte-t-elle du sol jusqu’aux feuilles d’un séquoia de 115 mètres de haut ? La pression atmosphérique ne peut pousser une colonne d’eau que sur environ 10 mètres — c’est la limite théorique d’une pompe aspirante au niveau de la mer. Or les arbres les plus hauts dépassent cette limite d’un facteur dix. La réponse se trouve dans trois mécanismes complémentaires qui, ensemble, résolvent ce défi apparemment impossible.
La pression racinaire — le moteur du sous-sol
Les racines absorbent activement les ions minéraux du sol grâce à des transporteurs membranaires qui utilisent de l’ATP. Cette accumulation d’ions dans les cellules racinaires abaisse leur potentiel hydrique (rend leur solution plus concentrée), ce qui attire l’eau du sol par osmose. L’eau qui entre dans les racines exerce une pression vers le haut dans le xylème — c’est la pression racinaire, généralement de l’ordre de 0,1 à 0,5 MPa (1 à 5 atmosphères).
La pression racinaire est responsable de deux phénomènes observables :
— la guttation : l’exsudation de gouttelettes d’eau aux extrémités des feuilles (par les hydathodes), visible au petit matin chez les graminées, les fraisiers ou les alchémilles. Ce n’est pas de la rosée (condensation atmosphérique), mais de l’eau poussée depuis les racines. Les gouttelettes de guttation contiennent des sels minéraux et parfois des composés organiques — elles laissent en s’évaporant de petits dépôts blanchâtres sur le bord des feuilles ;
— les pleurs de la vigne : au printemps, avant le débourrement des bourgeons (quand il n’y a pas encore de feuilles pour transpirer), la pression racinaire pousse la sève brute dans le xylème. Si l’on taille un sarment, la sève s’écoule abondamment — c’est le phénomène des « pleurs », qui peut représenter plusieurs litres de sève par jour chez un cep vigoureux.
Cependant, la pression racinaire est insuffisante pour expliquer à elle seule la montée de la sève. Elle ne peut pousser l’eau que sur 10 à 20 mètres au maximum, elle est absente chez la plupart des conifères, et elle est nulle en période de transpiration active (quand les feuilles évaporent l’eau plus vite que les racines ne la fournissent). Le moteur principal est ailleurs.
La théorie de la cohésion-tension — le moteur atmosphérique
Le mécanisme dominant de la montée de la sève brute est la théorie de la cohésion-tension, proposée par Henry Horatio Dixon et John Joly en 1895 et confirmée par plus d’un siècle de mesures expérimentales. Cette théorie repose sur trois propriétés physiques de l’eau :
1. La transpiration crée une tension (pression négative). Les stomates des feuilles s’ouvrent pour permettre l’entrée du CO₂ nécessaire à la photosynthèse. Mais chaque molécule de CO₂ absorbée coûte à la plante environ 200 à 400 molécules d’eau, qui s’évaporent par les stomates dans l’atmosphère — c’est la transpiration. L’évaporation de l’eau à la surface des cellules du mésophylle crée une tension (une « aspiration ») dans les colonnes d’eau du xylème, comme lorsque l’on aspire dans une paille.
2. La cohésion maintient la colonne d’eau intacte. Les molécules d’eau sont liées entre elles par des liaisons hydrogène — chaque molécule forme jusqu’à quatre liaisons avec ses voisines. Cette cohésion est remarquablement forte : la résistance à la traction d’une colonne d’eau pure peut atteindre 30 MPa en théorie (300 atmosphères). En pratique, dans les vaisseaux du xylème, la résistance effective est de l’ordre de 3 à 10 MPa, largement suffisante pour maintenir une colonne d’eau continue jusqu’au sommet d’un séquoia (qui ne nécessite « que » environ 2 à 3 MPa pour vaincre la gravité et les frottements).
3. L’adhésion aux parois empêche le décollement. Les molécules d’eau adhèrent aux parois hydrophiles des vaisseaux du xylème par des forces d’adhésion. Cette interaction eau-paroi (en grande partie due aux groupements hydroxyles de la cellulose) contribue à la capillarité et empêche la colonne d’eau de se décrocher des parois.
Le résultat est un système de colonnes d’eau continues et sous tension, tirées vers le haut par l’évaporation foliaire. L’énergie qui fait monter la sève ne vient ni de la plante ni du sol : elle vient du soleil, qui fait évaporer l’eau des feuilles. La plante ne pompe pas sa sève — elle la laisse monter en utilisant l’énergie gratuite de l’évaporation. C’est un système passif d’une élégance remarquable.
Les tensions mesurées dans le xylème des arbres varient de -0,5 MPa chez un arbre bien hydraté à -3 ou -4 MPa chez un arbre en stress hydrique sévère. Chez certaines espèces désertiques, des tensions de -10 MPa ou plus ont été mesurées — des valeurs que l’on ne pensait pas possibles avant le développement des chambres à pression (bombe de Scholander).
Les stomates — vannes de régulation du flux
Les stomates (du grec stoma, « bouche ») sont les ouvertures microscopiques de l’épiderme des feuilles, bordées par deux cellules de garde en forme de haricot. Chaque feuille en possède des milliers à des centaines de milliers (typiquement 100 à 300 par mm² sur la face inférieure). En s’ouvrant, ils permettent l’entrée du CO₂ et la sortie de la vapeur d’eau. En se fermant, ils réduisent la transpiration mais aussi la photosynthèse.
L’ouverture et la fermeture des stomates sont contrôlées par la turgescence des cellules de garde. Lorsque ces cellules accumulent des ions potassium (K⁺) et des solutés organiques (malate, saccharose), leur potentiel osmotique diminue, l’eau y entre par osmose, la turgescence augmente, et les cellules de garde se courbent vers l’extérieur — le stomate s’ouvre. Le processus inverse les ferme.
Plusieurs facteurs modulent l’ouverture stomatique :
— la lumière : les stomates s’ouvrent à l’aube et se ferment au crépuscule (sauf chez les plantes CAM, qui font l’inverse) ;
— le statut hydrique : en cas de déficit hydrique, les racines et les feuilles produisent de l’acide abscissique (ABA), une hormone qui provoque la fermeture rapide des stomates — c’est le mécanisme d’urgence anti-sécheresse ;
— la concentration en CO₂ : un taux élevé de CO₂ dans la chambre sous-stomatique déclenche la fermeture (la plante a « assez » de CO₂) ;
— la température : au-delà de 30-35 °C, les stomates se ferment chez la plupart des espèces tempérées, limitant à la fois la transpiration et la photosynthèse.
Un arbre adulte peut transpirer 200 à 400 litres d’eau par jour en été — un chêne mature peut dépasser 1 000 litres par jour de forte chaleur. Un hectare de forêt feuillue transpire entre 3 000 et 5 000 tonnes d’eau par an, ce qui a un effet mesurable sur le climat local : la température de l’air au-dessus d’une forêt est de 2 à 5 °C inférieure à celle au-dessus d’un champ labouré. Les forêts ne se contentent pas de refroidir l’air — elles créent littéralement leur propre pluie en injectant de la vapeur d’eau dans l’atmosphère.
L’embolie et la cavitation — quand le système lâche
Sous une tension extrême (sécheresse, gel, blessure mécanique), les colonnes d’eau peuvent se rompre : de l’air dissous dans la sève nucléé en bulles qui grossissent et remplissent le vaisseau. C’est la cavitation. Le vaisseau embolisé ne conduit plus l’eau — il est « court-circuité » par ses voisins via les ponctuations latérales. Si trop de vaisseaux cavitent en même temps, la conductance hydraulique chute brutalement et le rameau se dessèche.
Les plantes disposent de plusieurs mécanismes pour limiter les dégâts :
— le cloisonnement : les ponctuations entre vaisseaux adjacents agissent comme des portes coupe-feu, empêchant la propagation des bulles d’air d’un vaisseau à l’autre ;
— la réparation nocturne : la nuit, quand la transpiration cesse, la pression racinaire peut suffire à redissoudre les petites bulles et restaurer la continuité de la colonne d’eau ;
— la production de nouveaux vaisseaux : chaque printemps, le cambium produit une nouvelle couche de xylème fonctionnel, remplaçant les vaisseaux endommagés l’année précédente ;
— le bois de tension et de compression : les arbres penchés ou exposés au vent produisent du bois de réaction asymétrique (bois de tension chez les feuillus, bois de compression chez les résineux) pour renforcer leur structure et limiter les contraintes mécaniques sur les colonnes d’eau.
Le changement climatique aggrave le risque de cavitation. Les sécheresses plus intenses et plus longues imposent aux arbres des tensions xylèmiennes jamais atteintes dans leur histoire évolutive. Des épisodes de mortalité forestière massive — comme ceux observés dans les forêts de pins du sud de la France en 2022 ou dans les forêts d’eucalyptus en Australie — sont directement liés à l’embolie hydraulique généralisée.
Le phloème — anatomie des conducteurs de sève élaborée
Si le xylème est un réseau de canalisations mortes, le phloème est un réseau de cellules vivantes — et cette différence fondamentale détermine tout : la structure, le mécanisme de transport, la régulation et la vulnérabilité aux agressions.
Les tubes criblés — un cytoplasme sans noyau
Les éléments conducteurs du phloème s’appellent les éléments de tube criblé. À maturité, ces cellules ont subi une transformation radicale : elles ont perdu leur noyau, leurs ribosomes, leur tonoplaste (membrane vacuolaire) et la plupart de leurs organites. Il ne reste qu’un cytoplasme pariétal réduit, traversé de filaments protéiques (protéines P ou protéines de flétrissement), et une membrane plasmique fonctionnelle.
La caractéristique la plus distinctive est la plaque criblée : la paroi terminale de la cellule est percée de pores (0,5 à 15 µm de diamètre) bordés de cylindres de callose (un polysaccharide de β-1,3-glucane) et traversés par des plasmodesmes modifiés. Ces pores permettent le passage direct de la sève élaborée d’un élément de tube criblé au suivant, formant un tube criblé continu de plusieurs mètres de long.
La durée de vie d’un tube criblé est limitée — généralement une saison de végétation chez les angiospermes (parfois deux). Les plaques criblées finissent par s’obstruer de callose (le cal définitif), et de nouveaux tubes criblés sont produits par le cambium. C’est une différence majeure avec le xylème secondaire, qui reste fonctionnel pendant plusieurs années (voire des décennies dans l’aubier).
Les cellules compagnes — le cerveau des tubes criblés
Chaque élément de tube criblé est flanqué d’une ou plusieurs cellules compagnes, cellules parenchymateuses possédant un noyau fonctionnel, un cytoplasme dense et une forte activité métabolique. Les cellules compagnes et les éléments de tube criblé sont issus de la division d’une même cellule mère (division inégale), et restent connectés par de nombreux plasmodesmes ramifiés.
Les cellules compagnes assurent les fonctions vitales que les tubes criblés ne peuvent plus remplir seuls : synthèse des protéines, production d’ATP, régulation du chargement et du déchargement de la sève. Sans ses cellules compagnes, un tube criblé cesse de fonctionner en quelques heures. C’est une symbiose intracellulaire remarquable — comparable, toutes proportions gardées, à la relation entre un globule rouge (qui a perdu son noyau) et les organes qui le produisent.
Chez les angiospermes, il existe trois types de cellules compagnes, qui correspondent à trois stratégies de chargement du phloème :
— les cellules compagnes ordinaires, avec peu de plasmodesmes vers les cellules du mésophylle, qui chargent le saccharose activement via des transporteurs membranaires ;
— les cellules intermédiaires, avec des plasmodesmes étroits et ramifiés, qui utilisent un mécanisme de « piégeage polymère » (le saccharose est converti en raffinose et stachyose, trop gros pour refluer par les plasmodesmes) ;
— les cellules de transfert, avec des invaginations pariétales qui augmentent la surface de membrane, optimisant le transport actif de solutés.
Les protéines P et la callose — les systèmes de réparation d’urgence
Lorsqu’un tube criblé est blessé (morsure d’insecte, blessure mécanique, taille), il doit être colmaté rapidement pour éviter la fuite de sève élaborée — un liquide précieux, riche en sucres et en acides aminés, très attractif pour les ravageurs. Deux mécanismes de colmatage se déclenchent en quelques secondes :
— les protéines P (protéines de phloème) se déplient et s’agrègent en un bouchon protéique qui obstrue temporairement les pores de la plaque criblée ;
— la callose est synthétisée rapidement par les enzymes callose-synthases et déposée autour des pores, formant un scellement durable.
Ces mécanismes expliquent pourquoi il est si difficile de récolter la sève phloémienne en quantité : dès que l’on incise l’écorce, le tube criblé se colmate. Les pucerons ont résolu ce problème de manière ingénieuse : leur stylet buccal, d’un diamètre infime (quelques micromètres), pénètre directement dans un tube criblé sans déclencher la réponse de colmatage. Le puceron devient alors un parasite passif — la pression dans le phloème (0,5 à 3 MPa) pousse la sève directement dans son tube digestif, si bien que l’excédent de sucre est excrété sous forme de miellat, cette substance collante qui attire les fourmis.
La circulation de la sève élaborée — le modèle de Münch
Composition de la sève élaborée
La sève phloémienne est un liquide complexe dont la composition varie selon l’espèce, la saison et l’organe. Ses principaux constituants sont :
— le saccharose : sucre de transport majoritaire chez la plupart des angiospermes, à des concentrations de 15 à 30 % (masse/volume). Certaines espèces transportent d’autres sucres : le sorbitol chez les Rosacées (pommier, cerisier), le mannitol chez les Oléacées (frêne, olivier), le raffinose et le stachyose chez les Cucurbitacées ;
— les acides aminés : principalement la glutamine, l’asparagine, l’aspartate et le glutamate, à des concentrations de 0,5 à 5 % ;
— les acides organiques : malate, citrate ;
— les ions minéraux : potassium (K⁺) surtout, qui joue un rôle crucial dans le maintien de la pression osmotique du phloème ;
— les hormones végétales : auxines, gibbérellines, cytokinines, acide abscissique — le phloème est une voie majeure de signalisation hormonale à longue distance ;
— les ARN messagers et petits ARN : découverte récente et fascinante, le phloème transporte des ARN qui régulent l’expression génique dans les organes distants — une sorte de « messagerie génétique » à l’échelle de la plante entière ;
— les métabolites secondaires : alcaloïdes, glucosinolates, composés phénoliques — les molécules qui intéressent directement le phytothérapeute circulent (au moins partiellement) via le phloème.
Le pH de la sève phloémienne est alcalin (7,5 à 8,5), ce qui la distingue nettement de la sève xylémienne (pH 5 à 6,5, légèrement acide).
Le flux de pression — le modèle de Münch
Le mécanisme de transport dans le phloème a été élucidé par le botaniste allemand Ernst Münch en 1930. Son modèle, confirmé depuis par de nombreuses expériences, repose sur un gradient de pression hydrostatique entre les sources et les puits :
Au niveau de la source (feuille mature), le saccharose produit par la photosynthèse est activement chargé dans les tubes criblés par les cellules compagnes. Cette accumulation de saccharose abaisse le potentiel osmotique de la sève phloémienne, provoquant une entrée d’eau par osmose depuis le xylème adjacent. La pression hydrostatique dans le tube criblé augmente.
Au niveau du puits (racine, fruit, bourgeon), le saccharose est déchargé des tubes criblés — soit par diffusion facilitée, soit par hydrolyse enzymatique (l’enzyme invertase scinde le saccharose en glucose et fructose, qui sont ensuite absorbés par les cellules du puits). Le retrait du saccharose élève le potentiel osmotique de la sève, l’eau quitte le tube criblé (retournant au xylème), et la pression hydrostatique diminue.
Le gradient de pression entre la source (haute pression) et le puits (basse pression) crée un flux de masse (bulk flow) qui entraîne passivement le saccharose et tous les autres solutés le long des tubes criblés. L’énergie consommée n’est pas celle du transport lui-même (qui est passif), mais celle du chargement actif du saccharose au niveau de la source — typiquement 1 molécule d’ATP pour 1 molécule de saccharose chargée.
La vitesse du flux phloémien est de l’ordre de 0,5 à 1,5 mètre par heure — environ 1 000 fois plus lente que la vitesse maximale du flux xylémien. Mais cette vitesse est suffisante pour alimenter un fruit en croissance rapide : une pomme reçoit environ 1 à 2 grammes de saccharose par heure pendant la phase de grossissement, soit 25 à 50 grammes par jour.
Sources, puits et plasticité du transport
La notion de source et de puits n’est pas fixe — elle change au cours du développement de la plante et des saisons :
— au printemps, avant le débourrement : les racines et l’aubier (qui ont accumulé de l’amidon pendant l’automne) sont les sources. Les bourgeons en débourrement sont les puits. La sève élaborée monte ;
— en été : les feuilles matures sont les sources. Les fruits, les racines, les jeunes feuilles et les méristèmes sont les puits. La sève élaborée descend principalement ;
— en automne : les feuilles sénescentes recyclent leurs nutriments (azote, phosphore, potassium) et les envoient vers les racines et l’aubier pour stockage hivernal. Les feuilles redeviennent des sources, mais cette fois de nutriments de recyclage plutôt que de photosynthétats frais ;
— en hiver : le flux phloémien est très réduit chez les espèces à feuilles caduques, mais ne s’arrête pas complètement — un métabolisme de maintenance persiste dans les tissus vivants du tronc et des racines.
Cette plasticité a des implications directes pour la récolte des plantes médicinales, que nous explorerons plus loin.
Le cambium vasculaire — la fabrique perpétuelle
Entre le xylème et le phloème des dicotylédones et des gymnospermes se trouve le cambium vasculaire, un méristème latéral d’une seule couche de cellules — la zone cambiale — qui est le siège de la croissance secondaire en épaisseur. Chaque division d’une cellule cambiale (appelée initiale fusiforme) produit soit une cellule-fille tournée vers l’intérieur qui se différenciera en xylème secondaire (bois), soit une cellule-fille tournée vers l’extérieur qui se différenciera en phloème secondaire (liber).
Le rythme saisonnier — naissance des cernes
Sous les climats tempérés, l’activité cambiale est saisonnière. Elle démarre au printemps (mars-avril dans l’hémisphère nord), atteint son maximum en mai-juin, puis décroît progressivement pour s’arrêter en automne. Chaque saison de croissance produit une couche de xylème secondaire visible en coupe transversale : c’est le cerne annuel.
Un cerne se compose de deux zones :
— le bois de printemps (bois initial) : produit au début de la saison, quand l’eau est abondante et la croissance rapide. Les vaisseaux sont larges, les parois fines, la couleur claire. Chez les essences à zone poreuse (chêne, frêne, orme), les vaisseaux printaniers sont considérablement plus larges que les vaisseaux estivaux — jusqu’à 300-400 µm de diamètre chez le chêne sessile ;
— le bois d’été (bois final) : produit en fin de saison, quand l’eau se raréfie et la croissance ralentit. Les vaisseaux sont plus étroits, les parois plus épaisses, les fibres plus abondantes, la couleur plus sombre. Ce bois est plus dense et plus résistant mécaniquement.
La largeur des cernes reflète les conditions de croissance de chaque année : un printemps humide et chaud produit un cerne large, une sécheresse estivale sévère produit un cerne étroit. C’est le principe de la dendrochronologie, la science de la datation par les cernes, qui permet de reconstituer le climat passé avec une résolution annuelle sur des milliers d’années.
Aubier et duramen — le bois vivant et le bois mort
Dans le tronc d’un arbre adulte, on distingue deux zones de xylème secondaire :
— l’aubier (sapwood) : la zone externe, de couleur généralement plus claire, constituée de cernes récents dont les vaisseaux sont encore fonctionnels (conduisent la sève) et dont les cellules de parenchyme sont encore vivantes. L’aubier sert de réserve d’eau et d’amidon. Son épaisseur varie de 2 à 5 cm chez le chêne à 15-20 cm chez les résineux ;
— le duramen (ou bois de cœur, heartwood) : la zone interne, de couleur souvent plus foncée, constituée de cernes anciens dont les vaisseaux sont obstrués (par des thylles — excroissances de parenchyme — ou par des dépôts de gommes et de résines) et dont toutes les cellules sont mortes. Le duramen ne conduit plus la sève et ne stocke plus de réserves, mais il assure le soutien mécanique du tronc.
La transformation de l’aubier en duramen s’accompagne de l’accumulation de substances extractibles — tannins, résines, huiles, composés phénoliques — qui donnent au duramen sa couleur, son odeur et sa résistance à la pourriture. Le duramen du cèdre rouge (Thuja plicata) contient de la thujaplicine, un antifongique naturel qui le rend pratiquement imputrescible. Le duramen du bois de santal (Santalum album) est riche en santols, responsables de son parfum caractéristique.
Pour le phytothérapeute, cette distinction est capitale : l’écorce (qui contient le phloème et le cambium) est biologiquement active, tandis que le duramen est chimiquement inerte — récolter du bois de cœur au lieu de l’écorce ou de l’aubier, c’est récolter un matériau sans principes actifs accessibles.
Les rayons médullaires — les autoroutes radiales
Les rayons médullaires (ou rayons ligneux) sont des bandes de cellules parenchymateuses qui traversent radialement le bois et le liber, de la moelle jusqu’à l’écorce. Ils assurent le transport latéral des nutriments et de l’eau entre le xylème et le phloème, et servent de sites de stockage pour l’amidon et les lipides de réserve.
Chez le chêne, les rayons médullaires sont particulièrement larges et visibles — ce sont les « maillures » caractéristiques du bois de chêne débité sur quartier, très prisées en ébénisterie et en tonnellerie. Chez les résineux, les rayons sont plus étroits et moins visibles. Chez le hêtre, ils forment de fines lignes brillantes sur les surfaces tangentielles.
Au printemps, les cellules des rayons médullaires jouent un rôle crucial dans le débourrement : elles hydrolysent l’amidon stocké en saccharose, qui est transféré latéralement au phloème puis transporté vers les bourgeons. C’est pourquoi un sirop d’érable de qualité se récolte à la fin de l’hiver, quand la remobilisation des réserves bat son plein — le saccharose transit momentanément dans la sève xylémienne et peut être collecté par entaillage.
Exsudats et latex — les sécrétions vasculaires
Outre les sèves brute et élaborée, de nombreuses plantes produisent des liquides spécialisés qui circulent dans des systèmes de canaux distincts ou dans des cellules isolées. Ces exsudats sont souvent riches en métabolites secondaires et présentent un intérêt considérable en phytothérapie.
Les résines
Les résines sont des mélanges visqueux de terpènes, de sesquiterpènes et d’acides résiniques, produits principalement par les conifères (Pinacées, Cupressacées) mais aussi par certaines angiospermes (Burséracées, Anacardiacées). Elles circulent dans des canaux résinifères, des espaces intercellulaires bordés de cellules sécrétrices.
La résine remplit une fonction défensive : lorsqu’un insecte xylophage (scolyte, par exemple) perce l’écorce, la résine s’écoule sous pression, noie l’agresseur et durcit en séchant, colmatant la blessure. Un pin en bonne santé peut produire suffisamment de résine pour repousser des centaines d’attaques de scolytes par saison. Un pin affaibli par la sécheresse, dont la pression de résine est diminuée, succombe.
Parmi les résines d’intérêt phytothérapique : l’encens (Boswellia spp.), dont les acides boswelliques ont des propriétés anti-inflammatoires documentées ; la myrrhe (Commiphora myrrha), antiseptique et cicatrisante ; et le mastic de Chios (Pistacia lentiscus), utilisé depuis l’Antiquité pour les troubles digestifs.
Le latex
Le latex est un liquide laiteux, généralement blanc ou jaunâtre, qui circule dans des cellules spécialisées appelées laticifères. Contrairement aux canaux résinifères, les laticifères sont de vraies cellules vivantes — soit articulées (tubes formés de files de cellules dont les parois transversales sont dissoutes), soit non articulées (cellules géantes ramifiées qui s’infiltrent dans tous les tissus de la plante).
Le latex est un système défensif chimique et mécanique : il contient des alcaloïdes (morphine et codéine chez Papaver somniferum), des terpènes (le caoutchouc chez Hevea brasiliensis), des enzymes protéolytiques (papaïne chez Carica papaya, ficine chez Ficus), et des particules de caoutchouc qui polymérisent à l’air et colmatent la blessure. Le goût amer et parfois toxique du latex dissuade les herbivores, tandis que la polymérisation du caoutchouc referme physiquement la plaie.
Parmi les latex d’intérêt thérapeutique : le latex de pissenlit (Taraxacum), utilisé traditionnellement contre les verrues ; le latex de chélidoine (Chelidonium majus), riche en alcaloïdes (chélidonine, berbérine) et utilisé en dermatologie ; le latex de papaye, dont la papaïne est une enzyme protéolytique utilisée en digestion et en cicatrisation.
Les gommes et mucilages
Les gommes sont des polysaccharides hydrosolubles produits par certaines espèces en réponse à une blessure — c’est la gommose. La gomme arabique (Acacia senegal) est la plus connue. Les mucilages sont des polysaccharides qui gonflent au contact de l’eau pour former un gel visqueux. Ils sont présents dans les graines de lin, de chia, de psyllium, et dans les feuilles de guimauve (Althaea officinalis) et de mauve (Malva sylvestris).
En phytothérapie, les mucilages sont utilisés comme émollients (adoucissants des muqueuses irritées — gorge, estomac, intestin) et comme laxatifs de lest (le psyllium, en gonflant dans l’intestin, augmente le volume des selles et facilite le transit). Leur mode d’action est essentiellement mécanique — ils forment un film protecteur sur les muqueuses et n’ont pas besoin d’être absorbés pour être efficaces.
La guttation et les hydathodes
La guttation, déjà mentionnée, est l’exsudation de sève xylémienne par les hydathodes — des pores situés aux extrémités des nervures, au bord des feuilles, et qui ne possèdent pas de mécanisme de fermeture (contrairement aux stomates). La guttation se produit lorsque la pression racinaire est forte et la transpiration faible (nuit, atmosphère saturée d’humidité).
Le liquide de guttation n’est pas de l’eau pure — il contient des sels minéraux, des acides organiques et parfois des alcaloïdes ou d’autres métabolites secondaires. Chez certaines espèces toxiques, le liquide de guttation peut être dangereux pour les insectes qui le consomment. C’est un mécanisme de défense passif dont l’importance écologique est probablement sous-estimée.
Implications pour la phytothérapie
La compréhension du système vasculaire végétal n’est pas un exercice académique pour le phytothérapeute — elle fonde directement plusieurs pratiques essentielles.
La saisonnalité de la récolte
La distribution des principes actifs dans les organes de la plante varie au cours de l’année, en lien direct avec les flux de sève :
— les racines se récoltent de préférence en automne (octobre-novembre) ou en début de printemps (mars), lorsque les réserves (amidon, inuline, alcaloïdes, saponines) sont maximales. En été, une partie de ces réserves a été mobilisée et envoyée vers les parties aériennes via le xylème — la racine est « vidée » ;
— les feuilles se récoltent en pleine saison de croissance (mai-juillet), quand la photosynthèse est à son maximum et que les métabolites secondaires s’accumulent ;
— les fleurs se récoltent au début de la floraison, avant que les pétales ne commencent à faner et que les nutriments ne soient réorientés vers l’ovaire en développement ;
— les écorces se récoltent au printemps, quand l’activité cambiale est maximale et que l’écorce se détache facilement du bois. À cette saison, la sève brute monte activement dans l’aubier et les cellules cambiales sont turgescentes — la zone cambiale est gorgée d’eau et se décolle sans effort. C’est aussi le moment où le phloème secondaire (liber) est le plus riche en composés transportés.
La gemmothérapie — la médecine des bourgeons
La gemmothérapie, développée par le médecin belge Pol Henry dans les années 1960, utilise les bourgeons et les jeunes pousses récoltés au stade de débourrement. La justification physiologique de cette pratique trouve un éclairage direct dans la biologie vasculaire :
— le bourgeon est un carrefour vasculaire : au moment du débourrement, il reçoit simultanément la sève brute montante (eau, minéraux, cytokinines racinaires) et la sève élaborée provenant de la remobilisation des réserves (saccharose, acides aminés, auxines, gibbérellines) ;
— le bourgeon contient des cellules méristématiques en division active, riches en facteurs de croissance, en acides nucléiques et en enzymes ;
— les métabolites secondaires commencent à être synthétisés dans le bourgeon mais n’ont pas encore été dilués par la croissance foliaire — leur concentration est donc maximale par unité de masse ;
— les hormones végétales (auxines, gibbérellines, cytokinines) transitent massivement par les tissus vasculaires du bourgeon, ce qui pourrait contribuer à l’activité biologique des macérats glycérinés utilisés en gemmothérapie.
La fenêtre de récolte est étroite — quelques jours à deux semaines — car une fois le bourgeon éclaté et les premières feuilles déployées, la composition change rapidement.
Le transport des alcaloïdes et des glucosinolates
Tous les métabolites secondaires ne circulent pas de la même manière dans la plante :
— les alcaloïdes de la nicotine (Nicotiana tabacum) sont synthétisés dans les racines et transportés vers les feuilles via le xylème. Si l’on greffe une tomate sur un porte-greffe de tabac, les feuilles de tomate accumulent de la nicotine — preuve que c’est la racine, et non la feuille, qui est l’usine de production ;
— les glucosinolates des Brassicacées (moutarde, colza, chou) sont synthétisés dans les feuilles et redistribués aux organes de stockage et de reproduction via le phloème ;
— les huiles essentielles (terpènes volatils) ne circulent généralement pas dans les vaisseaux — elles sont synthétisées et stockées localement dans des structures sécrétrices spécialisées (trichomes glandulaires, poches sécrétrices, canaux oléifères) ;
— les composés phénoliques (tannins, flavonoïdes) ont une distribution mixte : certains sont synthétisés localement, d’autres sont transportés sur de courtes distances via le phloème.
Ces différences de transport ont des conséquences pratiques sur le choix de l’organe à récolter et sur la forme galénique à utiliser.
L’écorçage — une pratique délicate
La récolte de l’écorce médicinale (saule, chêne, bourdaine, cannelier) interrompt le phloème et le cambium sur la zone prélevée. Si l’écorçage est partiel (une bande étroite sur un côté du tronc), l’arbre peut cicatriser grâce à la régénération cambiale depuis les bords de la blessure. Si l’écorçage est annulaire (tout le tour du tronc), l’arbre meurt par interruption totale du flux phloémien — les racines, privées de saccharose, cessent de fonctionner en quelques mois.
Les règles de récolte durable de l’écorce découlent directement de cette physiologie : ne prélever qu’un quart à un tiers de la circonférence, sur des branches secondaires plutôt que sur le tronc principal, et espacer les récoltes de plusieurs années pour permettre la régénération.
Pathologies vasculaires des plantes
Le système vasculaire est une cible privilégiée pour les pathogènes, car son obstruction entraîne rapidement le dépérissement de la plante. Plusieurs maladies majeures exploitent cette vulnérabilité.
La graphiose de l’orme
La graphiose est causée par le champignon Ophiostoma novo-ulmi, transmis par les scolytes de l’orme. Le champignon envahit les vaisseaux du xylème et provoque leur obstruction par des thylles et des gommes. La réponse immunitaire de l’arbre (production de phytoalexines, compartimentation) aggrave paradoxalement l’obstruction. Le résultat est un flétrissement rapide des rameaux, suivi de la mort de l’arbre en quelques semaines à quelques mois. La graphiose a décimé les populations d’ormes en Europe et en Amérique du Nord entre 1960 et 1990 — des centaines de millions d’arbres ont été tués.
Les fusarioses vasculaires
Les champignons du genre Fusarium (notamment F. oxysporum) colonisent le xylème de nombreuses espèces cultivées (tomate, banane, coton, palmier dattier) et provoquent un flétrissement vasculaire en obstruant les vaisseaux par leurs hyphes et par les réponses de défense de la plante. La fusariose du bananier (maladie de Panama, race tropicale 4) menace actuellement la production mondiale de bananes Cavendish — les plantations infectées deviennent improductives sans possibilité de traitement curatif.
Le feu bactérien
La bactérie Erwinia amylovora cause le feu bactérien des Rosacées (pommier, poirier, cognassier, aubépine). Elle se propage dans le phloème et le parenchyme cortical, produisant des exsudats bactériens visqueux qui suintent à travers l’écorce. Les rameaux infectés prennent un aspect « brûlé » caractéristique (noircissement, courbure en crosse). Le feu bactérien est une maladie réglementée en Europe, soumise à des mesures d’éradication obligatoires.
Les phytoplasmes
Les phytoplasmes sont des bactéries sans paroi (apparentées aux mycoplasmes) qui vivent exclusivement dans les tubes criblés du phloème. Transmis par des insectes piqueurs-suceurs (cicadelles), ils provoquent des symptômes spectaculaires : jaunissement, prolifération de bourgeons (phénomène de « balai de sorcière »), verdissement des fleurs (virescence), et dépérissement progressif. La flavescence dorée de la vigne, causée par un phytoplasme, est l’une des maladies les plus redoutées de la viticulture française.
Conclusion
Le système vasculaire des plantes est une prouesse d’ingénierie biologique. Deux réseaux complémentaires — l’un fait de cellules mortes tirant l’eau vers le ciel par la seule force de l’évaporation, l’autre fait de cellules vivantes propulsant des sucres par gradient de pression osmotique — assurent la distribution de l’eau, des nutriments et de l’information chimique dans un organisme qui peut atteindre 115 mètres de haut et vivre plusieurs millénaires.
Pour le botaniste de terrain, les cernes du bois, la couleur de l’aubier et du duramen, les pleurs de la vigne, la guttation du fraisier, le latex du pissenlit — tous ces phénomènes observables à l’œil nu deviennent lisibles dès que l’on comprend la logique vasculaire sous-jacente. Pour le phytothérapeute, cette compréhension éclaire les gestes fondamentaux du métier : pourquoi récolter les racines à l’automne, les bourgeons au débourrement, les écorces au printemps. Pourquoi une décoction extrait davantage du bois qu’une infusion. Pourquoi la gemmothérapie a une justification physiologique réelle.
Le prochain article de cette série explorera les métabolites secondaires — ces molécules que la plante fabrique non pas pour vivre, mais pour survivre : alcaloïdes, terpènes, composés phénoliques, et toutes les substances qui constituent la pharmacopée végétale.
Références
1. Dixon, H.H. & Joly, J. (1895). On the ascent of sap. Philosophical Transactions of the Royal Society of London B, 186, 563-576.
2. Münch, E. (1930). Die Stoffbewegungen in der Pflanze. Gustav Fischer Verlag, Jena.
3. Tyree, M.T. & Zimmermann, M.H. (2002). Xylem Structure and the Ascent of Sap. 2ᵉ éd., Springer-Verlag, Berlin. 283 p.
4. Taiz, L. & Zeiger, E. (2015). Plant Physiology and Development. 6ᵉ éd., Sinauer Associates, Sunderland. Chapitres 4-6 (Water and Minerals, Translocation in the Phloem).
5. Lucas, W.J. et al. (2013). The plant vascular system: evolution, development and functions. Journal of Integrative Plant Biology, 55(4), 294-388.
6. Raven, P.H., Evert, R.F. & Eichhorn, S.E. (2013). Biology of Plants. 8ᵉ éd., W.H. Freeman. Chapitres 23-24 (Xylem and Phloem).
7. Brodribb, T.J. et al. (2020). Linking xylem network failure with leaf gas exchange: could hydraulic failure be a non-stomatal factor limiting photosynthesis? Plant, Cell & Environment, 43(9), 2163-2176.
8. van Bel, A.J.E. (2003). The phloem, a miracle of ingenuity. Plant, Cell & Environment, 26(1), 125-149.
9. Choat, B. et al. (2012). Global convergence in the vulnerability of forests to drought. Nature, 491(7426), 752-755.
10. Sperry, J.S., Hacke, U.G. & Pittermann, J. (2006). Size and function in conifer tracheids and angiosperm vessels. American Journal of Botany, 93(10), 1490-1500.
11. Hölttä, T. et al. (2006). Modeling xylem and phloem water flows in trees according to cohesion theory and Münch hypothesis. Trees, 20(1), 67-78.
12. Knoblauch, M. & Peters, W.S. (2010). Münch, morphology, microfluidics — our structural problem with the phloem. Plant, Cell & Environment, 33(3), 305-317.
13. Schweingruber, F.H. (2007). Wood Structure and Environment. Springer-Verlag, Berlin. 279 p.
14. Henry, P. (1970). Gemmothérapie — Thérapeutique par les extraits embryonnaires végétaux. Éditions Amyris, Bruxelles.
15. Turgeon, R. & Wolf, S. (2009). Phloem transport: cellular pathways and molecular trafficking. Annual Review of Plant Biology, 60, 207-221.