Une plante fabrique du glucose pour vivre — c’est son métabolisme primaire. Mais elle fabrique aussi de la morphine, de la caféine, du menthol, du tanin, de la digitaline, de l’acide salicylique et des milliers d’autres molécules dont elle n’a strictement pas besoin pour respirer, croître ou se reproduire. Ce sont les métabolites secondaires — des composés que la plante synthétise non pas pour vivre, mais pour survivre : repousser un herbivore, attirer un pollinisateur, résister à un champignon, filtrer un excès d’ultraviolets, empoisonner un concurrent racinaire. Et ce sont précisément ces molécules de survie qui constituent, depuis l’aube de l’humanité, la pharmacopée végétale.
Ce septième volet de notre série Bases botaniques explore les trois grandes familles de métabolites secondaires — terpénoïdes, composés phénoliques et alcaloïdes —, leurs voies de biosynthèse, leurs fonctions écologiques, et les raisons pour lesquelles la compréhension de leur chimie change la manière dont on récolte, prépare et utilise les plantes médicinales.
Métabolisme primaire et métabolisme secondaire — une frontière poreuse
La distinction entre métabolites primaires et secondaires remonte au chimiste allemand Albrecht Kossel, qui proposa le terme en 1891. Les métabolites primaires — sucres, acides aminés, acides gras, nucléotides — sont universels : on les retrouve dans toutes les cellules vivantes, végétales ou animales, et ils sont indispensables à la croissance, à la reproduction et au métabolisme énergétique. Les métabolites secondaires, en revanche, ont une distribution restreinte : chaque espèce, chaque famille, parfois chaque population produit un cocktail unique de molécules spécialisées.
On a longtemps considéré les métabolites secondaires comme des « déchets » métaboliques sans fonction — des sous-produits accidentels de réactions enzymatiques imparfaites. Cette vision est aujourd’hui complètement révolue. Les recherches des cinquante dernières années ont démontré que chaque métabolite secondaire remplit une ou plusieurs fonctions écologiques précises, et que la sélection naturelle a façonné leur diversité avec autant de rigueur que celle des enzymes ou des protéines structurales.
La frontière entre les deux métabolismes est d’ailleurs poreuse. Les précurseurs des métabolites secondaires sont tous issus du métabolisme primaire : l’acétyl-CoA (issu de la glycolyse), le shikimate (issu de la voie des pentoses phosphates), le mévalonate et le méthylérythritol phosphate (issus du métabolisme des sucres), les acides aminés aromatiques (phénylalanine, tyrosine, tryptophane). Les voies de biosynthèse secondaire se branchent sur le métabolisme primaire comme des embranchements sur une autoroute — et c’est à ces carrefours que se joue la diversité chimique du monde végétal.
L’ampleur de la diversité
On estime aujourd’hui que les plantes terrestres produisent collectivement entre 200 000 et 1 000 000 de métabolites secondaires distincts. Environ 80 000 ont été identifiés et caractérisés chimiquement. Une seule espèce peut en produire plusieurs centaines : le tabac (Nicotiana tabacum) en synthétise plus de 3 000, le cannabis (Cannabis sativa) plus de 500. Cette diversité est le résultat d’une course aux armements coévolutive entre les plantes et leurs agresseurs — insectes, champignons, bactéries, herbivores — qui dure depuis 450 millions d’années.
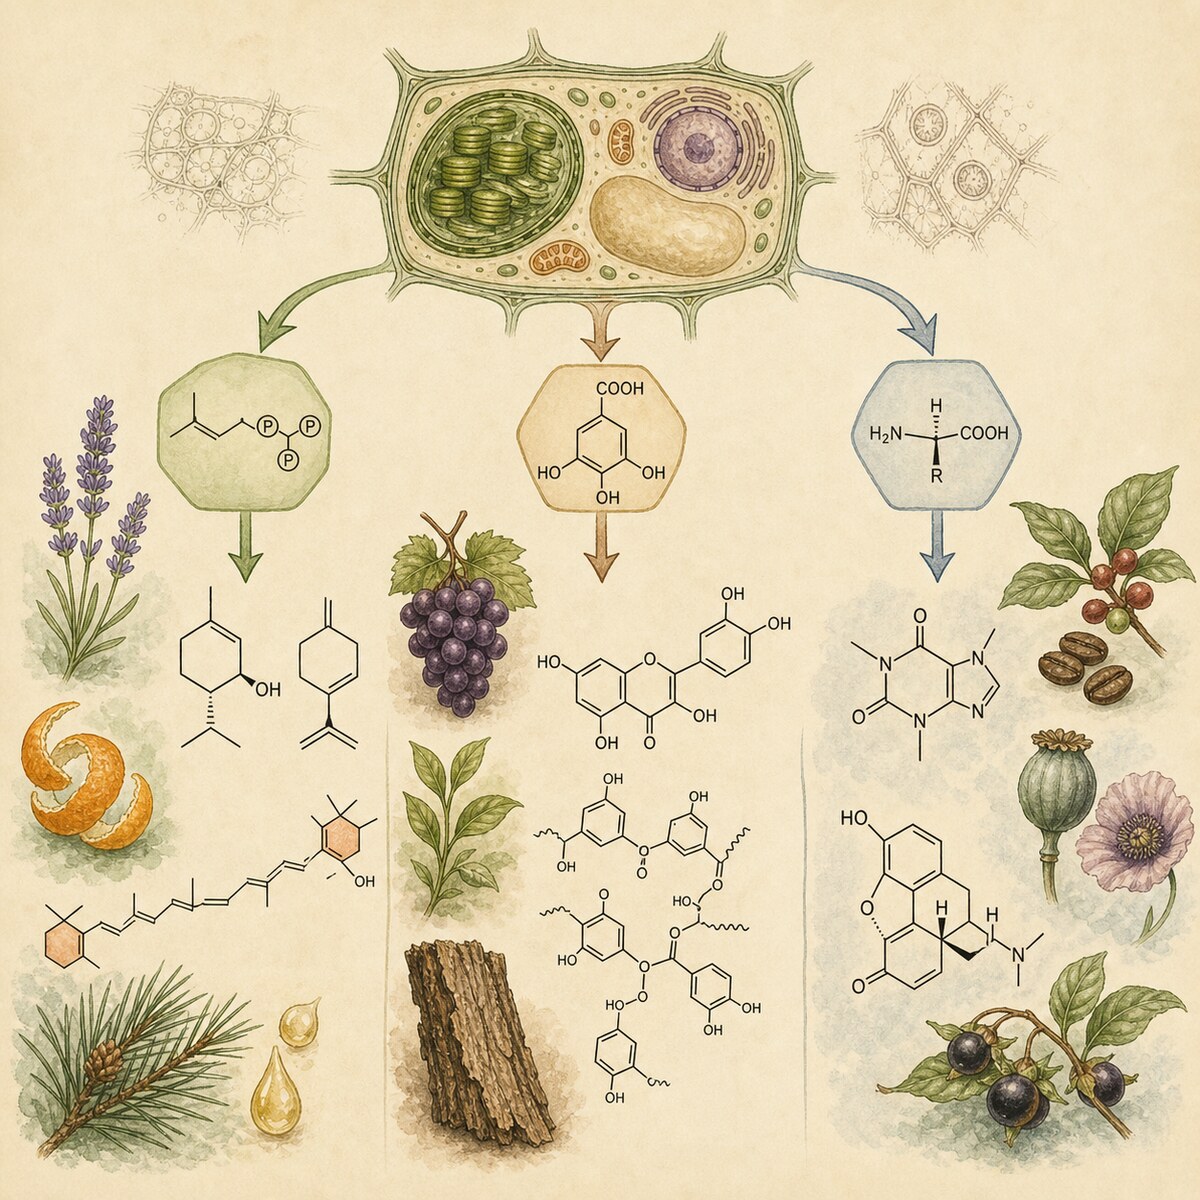
Les métabolites secondaires se répartissent en trois grandes familles chimiques, définies par leur voie de biosynthèse et leur squelette carboné : les terpénoïdes (issus de la voie de l’isoprène), les composés phénoliques (issus de la voie du shikimate et/ou de la voie des polyacétates) et les alcaloïdes (dérivés d’acides aminés et contenant au moins un atome d’azote dans un cycle).
Les terpénoïdes — le plus vaste empire chimique du vivant
Les terpénoïdes (ou isoprénoïdes) constituent la plus grande famille de métabolites secondaires, avec plus de 80 000 structures connues. Leur point commun : ils sont tous construits à partir d’une brique élémentaire à cinq carbones, l’isopentényl pyrophosphate (IPP), lui-même issu de l’unité isoprène (C₅H₈). C’est la « règle de l’isoprène » formulée par Leopold Ružička en 1953 : tous les terpénoïdes sont des polymères ou des dérivés de l’isoprène.
Les deux voies de biosynthèse
Les plantes disposent de deux voies métaboliques pour synthétiser l’IPP :
— la voie du mévalonate (MVA), localisée dans le cytosol et le réticulum endoplasmique. Elle part de l’acétyl-CoA et produit l’IPP via six réactions enzymatiques. C’est la voie principale pour la synthèse des sesquiterpènes (C₁₅), des triterpènes (C₃₀) et des stéroïdes ;
— la voie du méthylérythritol phosphate (MEP), localisée dans les plastes (chloroplastes et leucoplastes). Elle part du pyruvate et du glycéraldéhyde-3-phosphate et produit l’IPP via sept réactions. C’est la voie principale pour la synthèse des monoterpènes (C₁₀), des diterpènes (C₂₀) et des tétraterpènes (C₄₀ = caroténoïdes).
L’existence de deux voies parallèles dans des compartiments cellulaires différents est une particularité des plantes (les animaux ne possèdent que la voie MVA). Elle offre une souplesse métabolique considérable et explique la diversité exceptionnelle des terpénoïdes végétaux.
Classification par taille
Les terpénoïdes se classent selon le nombre d’unités isoprène (C₅) qu’ils contiennent :
Hémiterpènes (C₅) — une seule unité isoprène. L’isoprène lui-même est le plus simple, émis en quantités colossales par les forêts (environ 600 millions de tonnes par an à l’échelle mondiale). Il protège les membranes thylakoïdiennes contre le stress thermique et contribue à la chimie atmosphérique (formation de l’ozone troposphérique et des aérosols organiques).
Monoterpènes (C₁₀) — deux unités isoprène. Ce sont les principaux composants des huiles essentielles. Parmi les plus connus : le limonène (agrumes), le menthol (menthe), le linalol (lavande), le thymol (thym), le cinéol (eucalyptus), le pinène (pin), le géraniol (géranium). Leur volatilité (ils s’évaporent facilement à température ambiante) explique qu’on les perçoit comme des odeurs. Fonctions écologiques : répulsion des herbivores, attraction des pollinisateurs, activité antimicrobienne, allélopathie (inhibition de la germination des concurrents). En phytothérapie, les monoterpènes sont utilisés pour leurs propriétés antiseptiques, expectorantes, antispasmodiques, analgésiques et anxiolytiques.
Sesquiterpènes (C₁₅) — trois unités isoprène. Moins volatils que les monoterpènes, ils contribuent aux notes de fond des huiles essentielles. Exemples : le β-caryophyllène (clou de girofle, poivre noir — anti-inflammatoire, agoniste du récepteur CB2), le farnésol (camomille — antimicrobien), l’artémisinine (armoise annuelle, Artemisia annua — antipaludique majeur, prix Nobel 2015 pour Tu Youyou), le chamazulène (camomille allemande — anti-inflammatoire, responsable de la couleur bleu profond de l’huile essentielle). Les lactones sesquiterpéniques des Astéracées (parthénolide de la grande camomille, hélénaline de l’arnica) possèdent des propriétés anti-inflammatoires puissantes mais aussi un potentiel allergisant cutané.
Diterpènes (C₂₀) — quatre unités isoprène. Les acides résiniques des conifères (acide abiétique, acide pimarique) sont des diterpènes. Le taxol (paclitaxel), extrait de l’if (Taxus brevifolia), est un diterpène antimitotique utilisé en chimiothérapie anticancéreuse — l’un des médicaments anticancéreux les plus importants jamais découverts. Le forskoline du Coleus forskohlii, activateur de l’adénylate cyclase, et les gibbérellines (hormones de croissance végétales) sont également des diterpènes.
Triterpènes (C₃₀) — six unités isoprène. Cette classe comprend les stéroïdes végétaux (phytostérols comme le β-sitostérol et le stigmastérol), les saponines triterpéniques (glycyrrhizine de la réglisse, acide oléanolique), et les cucurbitacines (composés amers des Cucurbitacées). Les saponines tirent leur nom du latin sapo, « savon » : elles moussent dans l’eau grâce à leur structure amphiphile (une partie hydrophobe triterpénique liée à des sucres hydrophiles). Cette propriété tensioactive explique leur utilisation ancestrale comme savon (saponaire, Saponaria officinalis) et leur activité hémolytique (elles détruisent les membranes des globules rouges in vitro, bien que cet effet soit rarement observé par voie orale car elles sont peu absorbées). Les acides boswelliques de l’encens (Boswellia serrata) sont des triterpènes pentacycliques aux propriétés anti-inflammatoires documentées, qui inhibent la 5-lipoxygénase.
Tétraterpènes (C₄₀) — huit unités isoprène. Ce sont les caroténoïdes, déjà abordés dans l’article sur la photosynthèse : β-carotène, lycopène, lutéine, zéaxanthine. Pigments et antioxydants, ils jouent un rôle crucial dans la photoprotection.
Polyterpènes — de nombreuses unités isoprène. Le caoutchouc naturel (cis-1,4-polyisoprène) est un polyterpène de très haute masse moléculaire (100 000 à 1 000 000 d’unités isoprène), produit dans le latex de l’hévéa (Hevea brasiliensis) et d’autres espèces. La gutta-percha (trans-1,4-polyisoprène), extraite de Palaquium gutta, est son isomère structural.
Le stockage des terpénoïdes
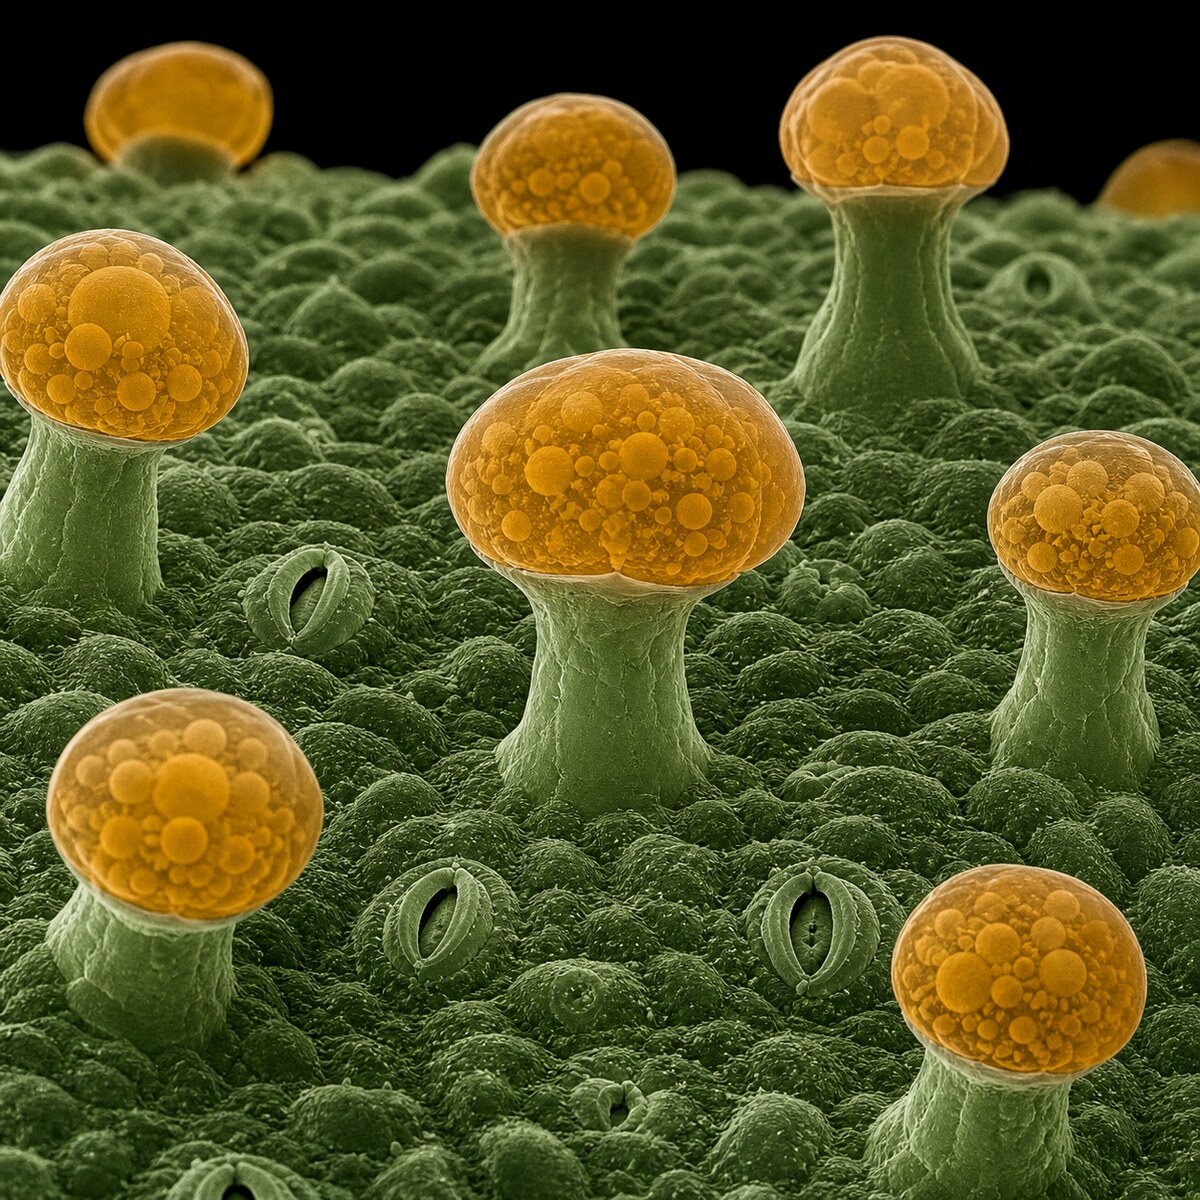
Les monoterpènes et sesquiterpènes volatils ne sont pas libres dans le cytoplasme — ils seraient toxiques pour les cellules qui les produisent. Ils sont séquestrés dans des structures spécialisées :
— les trichomes glandulaires : poils épidermiques à tête sécrétrice, visibles à la loupe sur les feuilles de menthe, de thym, de lavande ou de cannabis. C’est dans ces glandes microscopiques que sont synthétisées et stockées les huiles essentielles ;
— les poches sécrétrices schizogènes : cavités formées par l’écartement de cellules, présentes dans les feuilles des Rutacées (agrumes — les points translucides visibles par transparence dans une feuille d’oranger sont des poches à huile essentielle) et des Myrtacées (eucalyptus, myrte) ;
— les canaux sécréteurs : tubes bordés de cellules sécrétrices, présents chez les Apiacées (angélique, fenouil — canaux oléifères dans les côtes des fruits) et les Pinacées (canaux résinifères du bois et de l’écorce).
Pour le phytothérapeute, la connaissance de ces structures est directement utile : froisser une feuille de menthe entre ses doigts rompt les trichomes glandulaires et libère le menthol — c’est le test organoleptique de base pour vérifier la qualité d’une drogue. La distillation à la vapeur des huiles essentielles repose entièrement sur la rupture thermique de ces structures de stockage.
Les composés phénoliques — la défense par la chimie aromatique
Les composés phénoliques (ou polyphénols au sens large) sont des molécules possédant au moins un cycle aromatique porteur d’un ou plusieurs groupements hydroxyles (-OH). Avec plus de 10 000 structures connues, c’est la deuxième famille de métabolites secondaires par la diversité. Ils sont ubiquitaires dans le règne végétal — toutes les plantes en produisent, sans exception.
La voie du shikimate — carrefour biosynthétique
La plupart des composés phénoliques dérivent de la voie du shikimate, une séquence de sept réactions enzymatiques qui convertit le phosphoénolpyruvate (PEP, issu de la glycolyse) et l’érythrose-4-phosphate (issu de la voie des pentoses phosphates) en acide chorismique, précurseur des trois acides aminés aromatiques : la phénylalanine, la tyrosine et le tryptophane.
Cette voie n’existe que chez les plantes, les champignons et les micro-organismes — les animaux en sont dépourvus, ce qui explique que la phénylalanine et le tryptophane soient des acides aminés essentiels dans notre alimentation (nous devons les obtenir des plantes). Le glyphosate, l’herbicide le plus utilisé au monde, agit en inhibant l’enzyme EPSPS de cette voie — il bloque la synthèse des acides aminés aromatiques et, par extension, de tous les composés phénoliques qui en dérivent.
La phénylalanine est le point de départ de la voie des phénylpropanoïdes, la plus importante voie de biosynthèse des composés phénoliques chez les plantes. L’enzyme clé est la phénylalanine ammonia-lyase (PAL), qui désamime la phénylalanine en acide cinnamique — le premier phénylpropanoïde (un squelette C₆-C₃). À partir de l’acide cinnamique, une cascade de réactions enzymatiques produit l’acide p-coumarique, l’acide caféique, l’acide férulique, et tous les composés phénoliques complexes qui en dérivent.
Les acides phénoliques — les plus simples
Les acides phénoliques sont les composés phénoliques les plus simples. On distingue :
— les acides hydroxybenzoïques (C₆-C₁) : acide gallique (base des tannins hydrolysables), acide protocatéchique, acide vanillique ;
— les acides hydroxycinnamiques (C₆-C₃) : acide caféique (le plus abondant dans l’alimentation humaine — présent dans le café, les fruits, les céréales), acide chlorogénique (ester de l’acide caféique et de l’acide quinique — abondant dans le café vert, l’artichaut, l’échinacée), acide rosmarinique (romarin, mélisse, sauge — antioxydant et anti-inflammatoire puissant), acide férulique (parois cellulaires des graminées).
L’acide salicylique, précurseur de l’aspirine, est un acide hydroxybenzoïque particulier. Chez les plantes, il joue un rôle d’hormone de défense : synthétisé au site d’infection par un pathogène, il se propage dans toute la plante via le phloème et déclenche la résistance systémique acquise (SAR), un état d’alerte généralisé qui prépare les tissus non infectés à résister. Les saules (Salix) et les reines-des-prés (Filipendula ulmaria) accumulent des quantités importantes de dérivés salicylés (salicine, salicylate de méthyle), ce qui fonde leur usage ancestral comme antidouleur et anti-inflammatoire — un usage que la chimie moderne a transformé en acide acétylsalicylique (aspirine) en 1897.
Les flavonoïdes — la palette chimique des plantes
Les flavonoïdes constituent le plus grand sous-groupe de composés phénoliques, avec plus de 6 000 structures connues. Leur squelette de base est un noyau à 15 carbones (C₆-C₃-C₆) — deux cycles aromatiques (A et B) reliés par un hétérocycle oxygéné (C). Les variations de l’oxydation, de l’hydroxylation, de la méthylation et de la glycosylation de ce squelette produisent une diversité structurale considérable.
Les principales sous-classes sont :
Les flavones — apigénine (persil, céleri, camomille), lutéoline (artichaut, thym, menthe). Antioxydantes, anti-inflammatoires, antispasmodiques.
Les flavonols — quercétine (oignon, pomme, thé, millepertuis), kaempférol (brocoli, chou frisé, thé), rutine (sarrasin, rue officinale, sophora). La quercétine est le flavonoïde le plus étudié : anti-inflammatoire (inhibition de la lipoxygénase et de la cyclo-oxygénase), antioxydant (piégeage des radicaux libres, chélation du fer), antihistaminique (stabilisation des mastocytes), antiviral (inhibition de la réplication de plusieurs virus). Sa biodisponibilité orale est faible (2-5 %) mais augmente en présence de lipides et de certains autres polyphénols.
Les flavanones — naringénine (pamplemousse), hespérétine (orange, citron). Veinotoniques — l’hespéridine (glycoside de l’hespérétine) est utilisée en phlébologie sous le nom commercial Daflon®.
Les isoflavones — génistéine et daidzéine (soja). Ce sont des phytoestrogènes : leur structure tridimensionnelle ressemble suffisamment à celle du 17β-estradiol pour qu’elles puissent se lier aux récepteurs des estrogènes (ERα et ERβ), avec une affinité environ 1 000 fois plus faible que l’hormone naturelle. Cette activité estrogénique faible explique à la fois leur intérêt thérapeutique potentiel (troubles de la ménopause) et les controverses sur leur sécurité (interaction avec les cancers hormono-dépendants).
Les flavan-3-ols (catéchines) — catéchine, épicatéchine, épigallocatéchine-3-gallate (EGCG). Ces molécules sont les monomères des tannins condensés (proanthocyanidines). L’EGCG du thé vert est le polyphénol le plus étudié au monde, avec des milliers de publications sur ses effets antioxydants, anticancéreux, cardioprotecteurs et neuroprotecteurs in vitro — bien que les preuves cliniques restent plus modestes que les études cellulaires ne le suggèrent.
Les anthocyanidines — cyanidine (cerise, framboise), delphinidine (myrtille, aubergine), pélargonidine (fraise, géranium). Ce sont les pigments responsables des couleurs rouge, violet et bleu des fleurs, des fruits et des feuilles automnales. Leur couleur dépend du pH (rouge en milieu acide, bleu en milieu basique) et de la présence d’ions métalliques (les complexes aluminium-delphinidine produisent le bleu intense des hortensias). Fonctions écologiques : attraction des pollinisateurs et des disperseurs de graines. Chez l’humain, les anthocyanes sont de puissants antioxydants, mais leur biodisponibilité est très faible et leur métabolisme rapide — l’essentiel de leur activité biologique s’exerce probablement au niveau du tractus gastro-intestinal et via leurs métabolites bactériens (acides phénoliques produits par le microbiote colique).
Les tannins — l’arme chimique anti-herbivore
Les tannins sont des polyphénols de masse moléculaire élevée (500 à 20 000 daltons) capables de se lier aux protéines et de les précipiter. Cette propriété de « tannage » — d’où leur nom, emprunté au processus de transformation du cuir — est leur mécanisme d’action principal, tant écologique que pharmacologique.
On distingue deux types :
— les tannins hydrolysables : esters d’acide gallique ou d’acide ellagique liés à un sucre central (glucose). Exemples : les gallotannins du chêne, les ellagitannins de la grenade, du framboisier, de l’épilobe. Ils sont hydrolysés par les acides, les bases et les enzymes (tannase) ;
— les tannins condensés (proanthocyanidines) : polymères de flavan-3-ols (catéchine, épicatéchine) liés par des liaisons carbone-carbone résistantes à l’hydrolyse. Ils sont omniprésents : bois de chêne (œnologie), écorce de pin maritime (Pycnogenol®), pépins de raisin, canneberge, aubépine.
Fonctions écologiques des tannins : lorsqu’un herbivore mâche une feuille riche en tannins, les tannins se lient aux protéines salivaires et digestives de l’animal, réduisant la digestibilité du repas et provoquant une sensation d’astringence désagréable (la « bouche sèche » du vin rouge tannique ou du kaki pas mûr). Les ruminants ont développé des parades évolutives : leurs glandes salivaires sécrètent des protéines riches en proline, qui « capturent » les tannins avant qu’ils n’atteignent les enzymes digestives.
En phytothérapie, les tannins sont utilisés comme astringents (resserrement des tissus, réduction des sécrétions), hémostatiques (arrêt des petits saignements), antidiarrhéiques (précipitation des protéines de la muqueuse intestinale, formation d’un film protecteur) et antiseptiques (précipitation des protéines de surface des bactéries). Les gargarismes de décoction de feuilles de ronce ou d’écorce de chêne exploitent cette propriété astringente.
Les lignanes et les stilbènes
Les lignanes sont des dimères de phénylpropanoïdes. Le sécoisolaricirésinol et le matairésinol (graines de lin) sont des phytoestrogènes convertis par le microbiote intestinal en entérolactone et entérodiol, dont les effets protecteurs cardiovasculaires et anticancéreux sont étudiés. La podophyllotoxine, extraite du podophylle (Podophyllum peltatum), est un lignane antimitotique dont les dérivés semi-synthétiques (étoposide, téniposide) sont utilisés en chimiothérapie.
Les stilbènes sont des composés en C₆-C₂-C₆. Le plus célèbre est le resvératrol, produit par la vigne (Vitis vinifera) en réponse à l’infection par Botrytis cinerea — c’est une phytoalexine, une molécule de défense induite. Le resvératrol est présent dans le vin rouge (le plus souvent 1 à 5 mg/L) et a fait l’objet d’un engouement médiatique considérable pour ses propriétés antioxydantes et de longévité. Les données in vitro sont impressionnantes (activation des sirtuines, inhibition de NF-κB), mais les essais cliniques chez l’humain ont donné des résultats beaucoup plus modestes, en partie à cause de sa biodisponibilité très faible et de son métabolisme rapide.
Les coumarines
Les coumarines sont des lactones du phénylpropanoïde (benzopyranones). La coumarine simple, responsable de l’odeur caractéristique du foin coupé, de l’aspérule odorante (Galium odoratum) et de la fève tonka, est hépatotoxique à doses élevées. Les furanocoumarines (psoralène, bergaptène) sont photoréactives : elles s’intercalent dans l’ADN et, sous l’action des UV, forment des pontages covalents qui bloquent la réplication — d’où leur utilisation en PUVAthérapie (traitement du psoriasis) et les brûlures cutanées provoquées par le contact avec la berce du Caucase (Heracleum mantegazzianum) suivi d’une exposition au soleil (phytophotodermatite).
L’esculine et la fraxine, coumarines glycosylées du marronnier d’Inde (Aesculus hippocastanum) et du frêne (Fraxinus excelsior), ont des propriétés veinotoniques et sont utilisées dans le traitement de l’insuffisance veineuse.
Les alcaloïdes — les molécules azotées du combat chimique
Les alcaloïdes sont des composés organiques azotés, généralement d’origine végétale, possédant au moins un atome d’azote inclus dans un cycle hétérocyclique. Avec environ 20 000 structures connues, ils constituent la troisième grande famille de métabolites secondaires. Ce sont souvent les molécules les plus pharmacologiquement actives du monde végétal — et les plus dangereuses à mauvais dosage.
Le terme « alcaloïde » (de l’arabe al-qali, « la soude ») fait référence à leur caractère basique : la plupart des alcaloïdes sont des bases faibles, solubles dans les acides et peu solubles en milieu basique. Cette propriété influence directement leur extraction : une décoction acide (ajout de vinaigre ou de citron) extrait davantage d’alcaloïdes qu’une décoction neutre.
Classification par précurseur aminé
Les alcaloïdes se classent selon l’acide aminé dont ils dérivent :
Alcaloïdes dérivés de l’ornithine — L’ornithine, acide aminé du cycle de l’urée, est le précurseur des alcaloïdes tropaniques : atropine et scopolamine (belladone, datura, jusquiame), cocaïne (coca), hyoscyamine. Ces molécules agissent comme antagonistes des récepteurs muscariniques de l’acétylcholine — elles bloquent le système nerveux parasympathique, provoquant dilatation pupillaire, tachycardie, assèchement des sécrétions et, à doses toxiques, hallucinations et mort. L’atropine reste un médicament essentiel en anesthésie et en ophtalmologie. Les alcaloïdes pyrrolizidiniques (sénécionine, rétronécine) des Boraginacées (consoude, bourrache) et des Astéracées (séneçon) sont également dérivés de l’ornithine — ils sont hépatotoxiques et potentiellement cancérigènes, ce qui a conduit à restreindre l’usage interne de la consoude dans de nombreux pays.
Alcaloïdes dérivés de la lysine — Les alcaloïdes pipéridiniques : pipérine (poivre noir — augmente la biodisponibilité de la curcumine et d’autres composés), coniine (grande ciguë, Conium maculatum — le poison de Socrate, paralysant neuromusculaire). Les alcaloïdes quinolizidiniques : spartéine, lupanine (genêts, lupins) — cardioactifs.
Alcaloïdes dérivés de la tyrosine — Classe immense comprenant : les alcaloïdes isoquinoléiques (morphine, codéine, papavérine, noscapine du pavot — analgésiques, antitussifs, antispasmodiques ; berbérine de l’épine-vinette et de l’hydraste — antimicrobien, hypoglycémiant), les alcaloïdes benzylisoquinoléiques (tubocurarine du curare — myorelaxant utilisé en anesthésie), et les bétalaïnes (pigments rouges des betteraves, qui ne sont pas des anthocyanes malgré leur couleur similaire).
Alcaloïdes dérivés du tryptophane — Les alcaloïdes indoliques constituent l’un des groupes les plus pharmacologiquement puissants : strychnine (noix vomique — convulsivant), vincristine et vinblastine (pervenche de Madagascar, Catharanthus roseus — anticancéreux majeurs utilisés dans le traitement des leucémies et des lymphomes), ergotamine et acide lysergique (ergot de seigle, Claviceps purpurea — vasoconstricteurs, antimigraineux ; le LSD est un dérivé semi-synthétique de l’acide lysergique), quinine et quinidine (quinquina — antipaludiques, antiarythmiques), camptothécine (Camptotheca acuminata — anticancéreux inhibiteur de la topoisomérase I).
Alcaloïdes dérivés de l’histidine — Les alcaloïdes imidazoliques : pilocarpine (jaborandi — traitement du glaucome par constriction pupillaire).
Alcaloïdes dérivés de l’acide nicotinique — La nicotine (tabac) est un agoniste des récepteurs nicotiniques de l’acétylcholine. À faible dose, elle est stimulante ; à dose élevée, elle est paralysante. La trigonelline (fenugrec) est un dérivé méthylé de l’acide nicotinique aux propriétés hypoglycémiantes.
Les pseudo-alcaloïdes
Certains composés azotés cycliques ne dérivent pas d’acides aminés mais de la voie des terpénoïdes ou de la voie de l’acétate. On les appelle pseudo-alcaloïdes. Les plus importants sont :
— les alcaloïdes stéroïdiques : solanine et tomatine des Solanacées (pomme de terre, tomate). La solanine des pommes de terre verdies est toxique — elle inhibe l’acétylcholinestérase et perturbe les membranes cellulaires ;
— les alcaloïdes diterpéniques : aconitine de l’aconit (Aconitum napellus) — l’un des poisons végétaux les plus puissants (dose létale : 1 à 2 mg chez l’humain). L’aconitine ouvre les canaux sodiques voltage-dépendants, provoquant une dépolarisation permanente des neurones et du myocarde ;
— la caféine, la théobromine et la théophylline : alcaloïdes puriques (dérivés de la xanthine, elle-même dérivée de la purine). La caféine est le psychostimulant le plus consommé au monde — elle bloque les récepteurs de l’adénosine (A₁ et A₂A), supprimant le signal de fatigue et augmentant la libération de dopamine et de noradrénaline.
Fonctions écologiques des alcaloïdes
Les alcaloïdes sont principalement des armes chimiques défensives contre les herbivores et les pathogènes. Leur amertume dissuade la consommation, leur toxicité punit les imprudents. Certains insectes ont néanmoins développé des résistances : les chenilles du papillon monarque (Danaus plexippus) séquestrent les glycosides cardiotoniques de l’asclépiade dans leurs tissus, devenant elles-mêmes toxiques pour les oiseaux prédateurs.
Quelques alcaloïdes remplissent aussi des fonctions de réserve d’azote (le lupanine des lupins est dégradé lors de la germination pour fournir de l’azote aux plantules) ou de protection UV (les bétalaïnes des Caryophyllales).
Autres familles de métabolites secondaires
Les glucosinolates — le piquant des Brassicacées
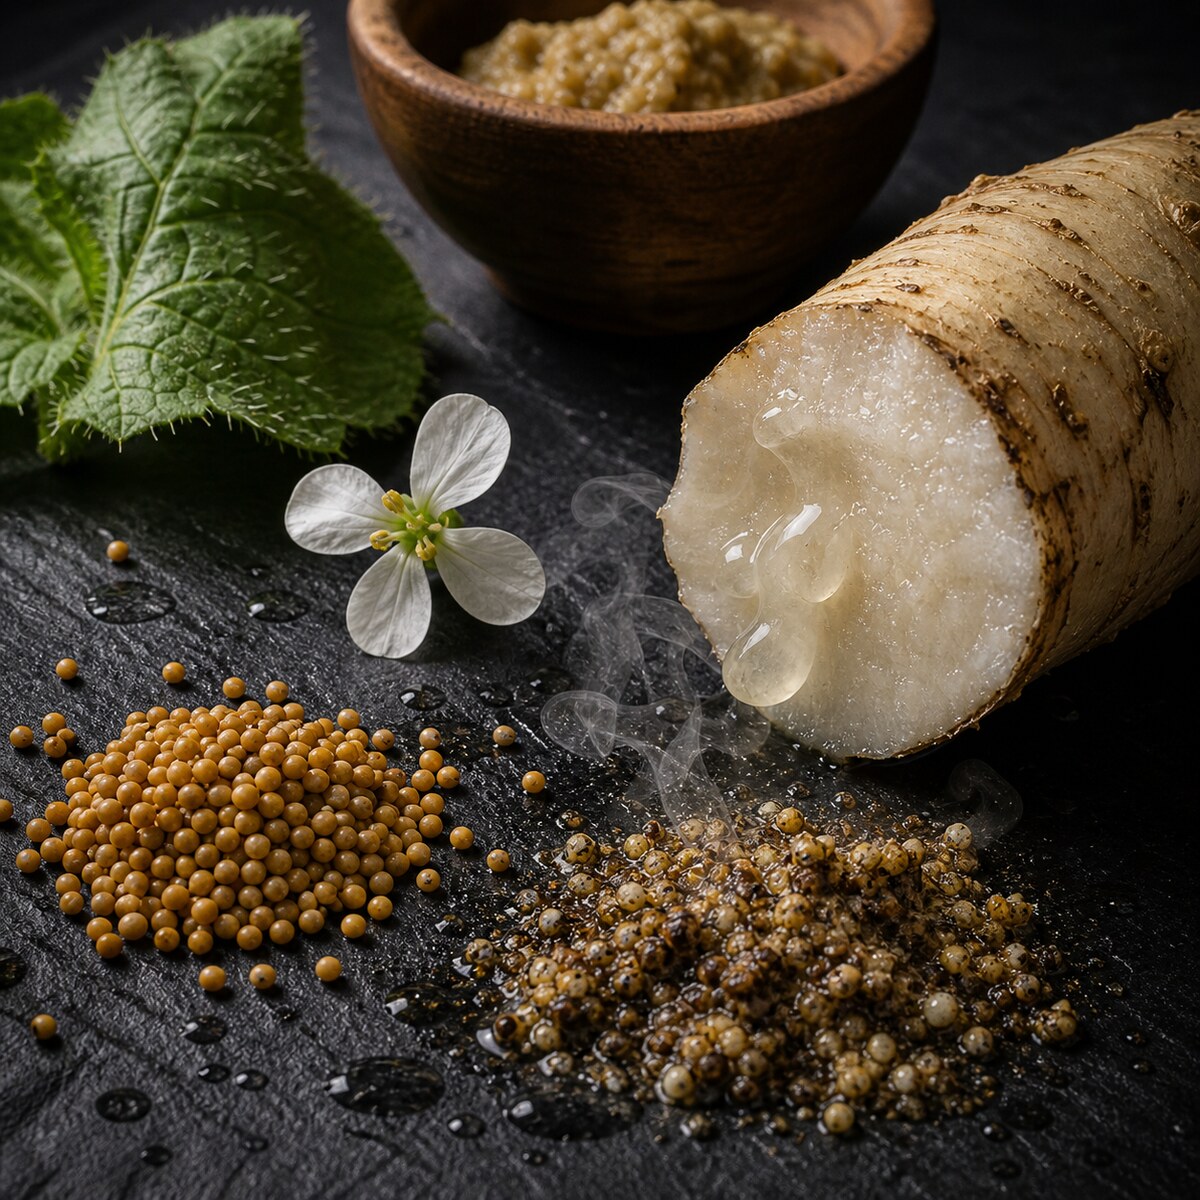
Les glucosinolates sont des thioglucosides (composés soufrés liés à un glucose) caractéristiques des Brassicacées (chou, moutarde, colza, cresson, radis) et de quelques familles apparentées. Ils sont inactifs sous leur forme glycosylée, stockés dans la vacuole des cellules. Lorsque la cellule est brisée (par la mastication, le gel ou une blessure), l’enzyme myrosinase (stockée dans un compartiment cellulaire séparé) hydrolyse le glucosinolate en isothiocyanate — la molécule piquante et irritante responsable du goût de la moutarde et du wasabi.
Ce système est une véritable « bombe chimique à retardement » : tant que le tissu est intact, rien ne se passe. Dès que le tissu est endommagé, l’enzyme et le substrat se rencontrent et produisent instantanément un irritant puissant. C’est un mécanisme de défense remarquablement efficace contre les insectes herbivores — les chenilles qui mordent dans une feuille de chou reçoivent une dose d’isothiocyanate directement dans la bouche.
Le sulforaphane, isothiocyanate du brocoli, est l’un des composés alimentaires les plus étudiés en chimioprévention du cancer. Il active le facteur de transcription Nrf2, qui contrôle la batterie d’enzymes de détoxification de phase II (glutathion-S-transférases, quinone réductases) — en d’autres termes, il stimule les défenses propres de la cellule contre les agents cancérigènes.
Les glycosides cyanogènes — le cyanure en réserve
Certaines plantes stockent du cyanure d’hydrogène (HCN) sous forme liée à un sucre — les glycosides cyanogènes. Comme les glucosinolates, c’est un système binaire : le glycoside est stocké dans la vacuole, l’enzyme (β-glucosidase) dans le cytoplasme. Lorsque la cellule est broyée, l’enzyme libère le HCN, gaz toxique qui bloque la chaîne respiratoire mitochondriale (inhibition du cytochrome c oxydase).
La amygdaline (amandes amères, noyaux de pêche, de cerise, d’abricot) et la linamarine (manioc, lin, trèfle blanc) sont les glycosides cyanogènes les plus connus. La toxicité du manioc cru, base alimentaire de 700 millions de personnes dans les régions tropicales, est entièrement due à la linamarine — les techniques traditionnelles de préparation (trempage prolongé, fermentation, cuisson) visent toutes à éliminer le HCN avant la consommation.
Les composés organosoufrés — l’alchimie de l’ail
Les Alliacées (ail, oignon, poireau, échalote, ciboulette) possèdent un système de défense chimique original basé sur des composés soufrés. L’alliine, un acide aminé soufré stocké dans le cytoplasme de l’ail, est convertie en allicine par l’enzyme alliinase lorsque le bulbe est écrasé. L’allicine est un thiosulfinate instable qui se décompose rapidement en une cascade de composés soufrés (ajoène, disulfure de diallyle, trisulfure de diallyle) responsables de l’odeur caractéristique de l’ail et de ses propriétés biologiques : antimicrobien à large spectre, hypolipémiant, antiagrégant plaquettaire, hypotenseur.
Le parallèle avec les glucosinolates est frappant : dans les deux cas, un substrat inactif et une enzyme destructrice sont séparés physiquement dans la cellule intacte et ne se rencontrent que lors de la destruction cellulaire — une stratégie de défense que les biochimistes appellent la « bombe chimique binaire ».
Écologie chimique — pourquoi les plantes fabriquent ces molécules
Les métabolites secondaires ne sont pas produits au hasard. Leur synthèse représente un coût métabolique significatif — de l’énergie et des nutriments détournés de la croissance et de la reproduction. La sélection naturelle ne maintient ce coût que s’il est compensé par un bénéfice en termes de survie ou de reproduction.
La défense constitutive et induite
Les plantes disposent de deux stratégies défensives :
— la défense constitutive : les métabolites secondaires sont produits en permanence, indépendamment de la présence d’un agresseur. C’est le cas des tannins des chênes, des alcaloïdes de la belladone, des huiles essentielles du thym. Avantage : la défense est immédiatement disponible. Inconvénient : le coût métabolique est permanent ;
— la défense induite : les métabolites secondaires ne sont synthétisés qu’en réponse à une agression. C’est le cas des phytoalexines (resvératrol de la vigne, camalexine d’Arabidopsis), des inhibiteurs de protéases (chez la tomate, en réponse aux blessures de chenilles), et de l’augmentation de la teneur en nicotine dans les feuilles de tabac après une attaque d’herbivore. Avantage : le coût n’est engagé que quand la menace est réelle. Inconvénient : un délai de plusieurs heures à quelques jours avant que la défense soit effective.
La plupart des plantes combinent les deux stratégies : un niveau de base constitutif (la « garde permanente ») augmenté par une réponse induite en cas d’agression (le « renfort »).
La communication chimique entre plantes
Découverte dans les années 1980 et longtemps controversée, la communication chimique entre plantes est aujourd’hui solidement établie. Lorsqu’une plante est attaquée par un herbivore, elle émet des composés organiques volatils (COV) — principalement des terpénoïdes — qui sont perçus par les plantes voisines. Ces voisines activent alors préventivement leurs défenses chimiques, avant même d’être elles-mêmes attaquées.
Le mécanisme est encore plus sophistiqué : les COV émis par une plante attaquée peuvent attirer les ennemis naturels de l’herbivore. Une plante de maïs attaquée par une chenille de pyrale émet un cocktail spécifique de terpénoïdes qui attire les guêpes parasitoïdes (Cotesia), lesquelles pondent leurs œufs dans la chenille. La plante ne se défend pas directement — elle appelle des renforts. Ce phénomène est appelé défense indirecte.
La théorie de l’apparence
En 1976, le chimiste écologiste Paul Feeny proposa la théorie de l’apparence pour expliquer la répartition des types de défenses chimiques dans le monde végétal. Selon cette théorie :
— les plantes « apparentes » (grandes, longévives, faciles à trouver pour les herbivores — les arbres, les arbustes) investissent dans des défenses quantitatives à large spectre : tannins, fibres, lignine — des composés qui réduisent la digestibilité du repas de manière dose-dépendante ;
— les plantes « non apparentes » (petites, éphémères, difficiles à localiser — les herbacées annuelles) investissent dans des défenses qualitatives très toxiques à faible dose : alcaloïdes, glucosinolates, glycosides cyanogènes — des composés qui tuent ou empoisonnent l’herbivore même en petite quantité.
Cette théorie, bien que simplificatrice, explique de nombreuses observations de terrain : les chênes sont riches en tannins, les Solanacées sauvages en alcaloïdes, les Brassicacées annuelles en glucosinolates.
Métabolites secondaires et phytothérapie — conséquences pratiques
La variabilité chimique — pourquoi deux récoltes ne sont jamais identiques
La teneur en métabolites secondaires d’une plante varie considérablement selon :
— le génotype : les chémotypes de thym (thymol, carvacrol, linalol, géraniol, thuyanol, α-terpinéol) produisent des huiles essentielles de composition radicalement différente, bien que les plantes soient morphologiquement indistinguables ;
— le stade phénologique : la teneur en hypéricine du millepertuis est maximale au début de la floraison et chute après la fructification ;
— l’heure de la journée : les huiles essentielles de lavande sont plus concentrées le matin (avant que la chaleur ne provoque l’évaporation des monoterpènes) ;
— le stress environnemental : une sécheresse modérée augmente la concentration en métabolites secondaires (la plante synthétise davantage de défenses), tandis qu’une fertilisation azotée excessive la diminue (l’azote est dirigé vers la croissance plutôt que vers la défense) ;
— l’altitude et la latitude : l’exposition aux UV augmente avec l’altitude, stimulant la production de flavonoïdes et d’anthocyanes photoprotecteurs. Les plantes alpines sont souvent plus riches en polyphénols que leurs équivalents de plaine ;
— le sol : un sol pauvre en azote stimule la voie du shikimate (production de composés phénoliques), tandis qu’un sol riche en azote stimule la synthèse des alcaloïdes (qui contiennent de l’azote).
L’extraction — adapter la méthode à la molécule
Le choix du mode de préparation galénique (infusion, décoction, macération, teinture, distillation) dépend directement de la nature chimique des métabolites secondaires visés :
— les huiles essentielles (monoterpènes, sesquiterpènes volatils) : distillation à la vapeur d’eau. Elles sont insolubles dans l’eau — une infusion ne les extrait pas (ou très marginalement, sous forme d’hydrolat) ;
— les alcaloïdes (bases faibles) : extraction optimale en milieu légèrement acide (décoction avec un filet de vinaigre ou de citron). La forme saline (chlorhydrate, sulfate) est plus soluble que la base libre ;
— les flavonoïdes et tannins (composés polaires) : extraction aqueuse à départ froid ou tiède. Les tannins sont très solubles dans l’eau chaude — un temps d’infusion prolongé d’un thé noir libère davantage de tannins (d’où l’astringence d’un thé trop infusé) ;
— les saponines (amphiphiles) : décoction prolongée. L’eau chaude rompt les interactions hydrophobes et libère les saponines liées aux membranes cellulaires. La mousse produite lors de l’agitation de la décoction est un test simple de la présence de saponines ;
— les résines et les composés lipophiles (diterpènes résiniques, cannabinoïdes, cires) : extraction alcoolique (teinture mère à 60-90 % d’alcool) ou extraction par corps gras (macération huileuse). L’eau ne les extrait pas.
La synergie — le tout est plus que la somme des parties
L’un des arguments les plus solides en faveur de l’utilisation de la plante entière (totum) plutôt que d’un principe actif isolé est la synergie entre les différents métabolites secondaires. Plusieurs mécanismes de synergie ont été documentés :
— la synergie pharmacodynamique : deux composés agissent sur la même cible ou sur des cibles complémentaires. Les multiples flavonoïdes du millepertuis potentialisent l’effet antidépresseur de l’hypéricine ;
— la synergie pharmacocinétique : un composé améliore l’absorption, la distribution ou réduit l’élimination d’un autre. La pipérine du poivre noir inhibe les enzymes de métabolisation hépatique (cytochromes P450) et les transporteurs d’efflux intestinaux (P-glycoprotéine), augmentant la biodisponibilité de la curcumine de 2 000 % ;
— la modulation des effets indésirables : certains composés atténuent les effets secondaires d’autres. Les mucilages de la réglisse protègent la muqueuse gastrique de l’irritation causée par ses saponines.
Conclusion
Les métabolites secondaires sont le langage chimique par lequel les plantes interagissent avec leur environnement — un langage de 200 000 mots et plus, dont nous ne comprenons encore qu’une fraction. Chaque molécule est une réponse évolutive à un problème écologique : un herbivore à dissuader, un pathogène à neutraliser, un pollinisateur à guider, un concurrent à étouffer, un excès de lumière à filtrer.
Pour le phytothérapeute, comprendre cette chimie est fondamental. C’est elle qui explique pourquoi la même plante récoltée à deux saisons différentes n’a pas le même effet. Pourquoi une infusion et une teinture n’extraient pas les mêmes principes. Pourquoi l’altitude, le sol et le stress hydrique modifient la puissance d’une drogue végétale. Et pourquoi le totum d’une plante est souvent plus efficace et mieux toléré qu’un principe actif isolé — parce que 450 millions d’années de coévolution ont composé des mélanges dont la cohérence dépasse notre capacité actuelle d’analyse.
Le prochain article explorera la nomenclature botanique — l’art de nommer les plantes selon le système binomial de Linné, de lire une diagnose latine, et de comprendre pourquoi les noms changent (parfois au grand dam des herboristes).
Références
1. Kossel, A. (1891). Über die chemische Zusammensetzung der Zelle. Archiv für Physiologie, 181-186.
2. Ružička, L. (1953). The isoprene rule and the biogenesis of terpenic compounds. Experientia, 9(10), 357-367.
3. Dewick, P.M. (2009). Medicinal Natural Products: A Biosynthetic Approach. 3ᵉ éd., Wiley-Blackwell, Chichester. 539 p.
4. Taiz, L. & Zeiger, E. (2015). Plant Physiology and Development. 6ᵉ éd., Sinauer Associates. Chapitre 13 (Secondary Metabolites and Plant Defense).
5. Croteau, R., Kutchan, T.M. & Lewis, N.G. (2000). Natural products (secondary metabolites). In: Buchanan, B.B. et al. (eds), Biochemistry and Molecular Biology of Plants. ASPP, Rockville. pp. 1250-1318.
6. Wink, M. (2010). Functions and biotechnology of plant secondary metabolites. In: Annual Plant Reviews, vol. 39. Wiley-Blackwell. 399 p.
7. Feeny, P. (1976). Plant apparency and chemical defense. In: Wallace, J.W. & Mansell, R.L. (eds), Biochemical Interaction Between Plants and Insects. Plenum Press, New York. pp. 1-40.
8. Dixon, R.A. (2001). Natural products and plant disease resistance. Nature, 411(6839), 843-847.
9. Wink, M. (2003). Evolution of secondary metabolites from an ecological and molecular phylogenetic perspective. Phytochemistry, 64(1), 3-19.
10. Hartmann, T. (2007). From waste products to ecochemicals: fifty years research of plant secondary metabolism. Phytochemistry, 68(22-24), 2831-2846.
11. Cheynier, V. et al. (2013). Plant phenolics: recent advances on their biosynthesis, genetics, and ecophysiology. Plant Physiology and Biochemistry, 72, 1-20.
12. Ziegler, J. & Facchini, P.J. (2008). Alkaloid biosynthesis: metabolism and trafficking. Annual Review of Plant Biology, 59, 735-769.
13. Halkier, B.A. & Gershenzon, J. (2006). Biology and biochemistry of glucosinolates. Annual Review of Plant Biology, 57, 303-333.
14. Williamson, E.M. (2001). Synergy and other interactions in phytomedicines. Phytomedicine, 8(5), 401-409.
15. Shitan, N. (2016). Secondary metabolites in plants: transport and self-tolerance mechanisms. Bioscience, Biotechnology, and Biochemistry, 80(7), 1283-1293.
16. Pichersky, E. & Raguso, R.A. (2018). Why do plants produce so many terpenoid compounds? New Phytologist, 220(3), 692-702.