On sait depuis longtemps que les fibres alimentaires sont indispensables à la santé digestive. Ce que l’on sait moins, c’est que les plantes sauvages en contiennent des formes que l’on ne trouve presque jamais dans les légumes cultivés. L’inuline de la racine de pissenlit nourrit les bifidobactéries intestinales. Les mucilages du plantain tapissent la muqueuse digestive et régulent le transit. Les pectines des fruits sauvages — cynorrhodon, prunelle, cenelle — piègent le cholestérol et ralentissent l’absorption du glucose. Les fructo-oligosaccharides de la racine de chicorée sauvage stimulent la production d’acides gras à chaîne courte, le carburant préféré des cellules du côlon. Toutes ces fibres, loin d’être de simples « lests » mécaniques, sont des molécules bioactives qui dialoguent avec le microbiote intestinal et, à travers lui, avec le système immunitaire, le métabolisme et même le cerveau. Cette monographie explore les fibres et les prébiotiques des plantes sauvages européennes : leur nature chimique, leur rôle physiologique, leur impact sur le microbiote, et les manières concrètes de les intégrer à l’alimentation quotidienne.
II. Prébiotiques : définition et mécanismes
III. Microbiote intestinal et fibres fermentescibles
IV. L’inuline : pissenlit, chicorée, bardane
V. Les mucilages : plantain, mauve, guimauve
VI. Les pectines : cynorrhodon, prunelle, cenelle
VII. Cellulose et hémicellulose des feuilles sauvages
VIII. Fructo-oligosaccharides et autres oligosides
IX. β-glucanes des champignons sauvages
X. Acides gras à chaîne courte : le butyrate
XI. Régulation du transit intestinal
XII. Fibres et métabolisme lipidique
XIII. Fibres et contrôle glycémique
XIV. Fibres, microbiote et immunité
XV. Récolte et conservation
XVI. Préparations et recettes
XVII. Précautions et contre-indications
XVIII. Synthèse
I. Fibres alimentaires : rappels fondamentaux
Les fibres alimentaires sont des glucides complexes et des polysaccharides non amylacés que les enzymes digestives humaines ne peuvent pas hydrolyser. Elles traversent l’estomac et l’intestin grêle sans être digérées et arrivent intactes dans le côlon, où elles exercent leurs effets physiologiques — soit par leur volume et leur capacité de rétention d’eau (fibres insolubles), soit par leur fermentation par le microbiote (fibres solubles).
On distingue classiquement deux grandes catégories. Les fibres insolubles — cellulose, hémicellulose, lignine — forment la charpente structurale des parois cellulaires végétales. Elles augmentent le volume du bol fécal, accélèrent le transit et préviennent la constipation. Elles ne sont pas ou très peu fermentées par les bactéries intestinales.
Les fibres solubles — pectines, mucilages, gommes, inuline, fructo-oligosaccharides, β-glucanes — se dispersent dans l’eau et forment des solutions visqueuses ou des gels. Elles ralentissent la vidange gastrique, modulent l’absorption du glucose et du cholestérol, et sont activement fermentées par le microbiote colique — ce qui les qualifie de prébiotiques lorsque cette fermentation stimule sélectivement les bactéries bénéfiques.
L’apport recommandé en fibres est de 25 à 30 g par jour chez l’adulte (ANSES, 2016 ; EFSA, 2010). La consommation moyenne en France est d’environ 17 g/jour — nettement insuffisante. Ce déficit est lié à la diminution de la consommation de légumineuses, de céréales complètes et de fruits et légumes frais au profit d’aliments ultra-transformés pauvres en fibres.
Les plantes sauvages, qui n’ont subi aucune sélection pour la tendreté ou la palatabilité, conservent une richesse en fibres que les variétés cultivées ont largement perdue. C’est l’un de leurs atouts nutritionnels majeurs.
II. Prébiotiques : définition et mécanismes
Le concept de prébiotique a été introduit en 1995 par Glenn Gibson et Marcel Roberfroid. La définition actuelle (ISAPP, 2017) est la suivante : « un substrat qui est sélectivement utilisé par les micro-organismes de l’hôte et qui confère un bénéfice pour la santé ». En pratique, les prébiotiques les mieux documentés sont des glucides non digestibles — inuline, fructo-oligosaccharides (FOS), galacto-oligosaccharides (GOS) — qui stimulent sélectivement la croissance des bifidobactéries et des lactobacilles dans le côlon.
Le mécanisme est simple : les bactéries bénéfiques possèdent les enzymes nécessaires pour fermenter ces substrats, tandis que les bactéries pathogènes (Clostridium, Escherichia coli entérotoxinogène) n’en disposent pas ou moins efficacement. En fermentant les prébiotiques, les bifidobactéries et les lactobacilles produisent des acides gras à chaîne courte (AGCC) — acétate, propionate, butyrate — qui acidifient le milieu colique, inhibent la croissance des pathogènes, nourrissent les cellules de la muqueuse colique et exercent des effets systémiques sur le métabolisme et l’immunité.
La distinction entre « fibre alimentaire » et « prébiotique » est importante. Toutes les fibres ne sont pas des prébiotiques : la cellulose, par exemple, est très peu fermentée et n’a pas d’effet bifidogène significatif. Inversement, certains prébiotiques ne sont pas des fibres au sens strict (les polyphénols, par exemple, exercent un effet prébiotique sans être des polysaccharides). Les plantes sauvages sont intéressantes parce qu’elles fournissent les deux types : des fibres insolubles pour le transit et des fibres solubles prébiotiques pour le microbiote.
III. Microbiote intestinal et fibres fermentescibles
Le microbiote intestinal humain comprend 10 000 milliards à 100 000 milliards de micro-organismes (bactéries, archées, champignons, virus), principalement concentrés dans le côlon. Cette communauté microbienne, dont la masse totale atteint 1,5 à 2 kg, est un véritable organe métabolique qui remplit des fonctions essentielles : fermentation des fibres alimentaires, synthèse de vitamines (K, B12, biotine), maturation du système immunitaire, protection contre les pathogènes (effet barrière), régulation de la motilité intestinale.
La diversité du microbiote est un indicateur clé de santé intestinale. Un microbiote diversifié est plus résilient face aux perturbations (antibiotiques, infections, stress) et produit une gamme plus large de métabolites bénéfiques. L’alimentation est le principal déterminant de la diversité microbienne — et les fibres alimentaires en sont le carburant principal.
Les fibres fermentescibles (solubles) sont dégradées par les bactéries du côlon selon un processus de fermentation anaérobie qui produit trois métabolites principaux : l’acétate (absorbé dans le sang, utilisé comme substrat énergétique par les tissus périphériques), le propionate (capté par le foie, où il inhibe la synthèse de cholestérol et la néoglucogenèse) et le butyrate (le carburant préféré des colonocytes — les cellules de la muqueuse colique — et un puissant agent anti-inflammatoire et anticancéreux).
Un régime pauvre en fibres affame littéralement le microbiote. Privées de substrat fermentescible, certaines bactéries se tournent vers un substrat de substitution : le mucus qui tapisse la paroi intestinale. La dégradation du mucus amincit la barrière protectrice de la muqueuse et augmente la perméabilité intestinale — un phénomène impliqué dans les maladies inflammatoires chroniques de l’intestin (MICI), le syndrome de l’intestin irritable (SII) et les maladies métaboliques.
IV. L’inuline : pissenlit, chicorée, bardane
L’inuline est un polysaccharide de réserve composé de chaînes de fructose liées en β(2→1), terminées par un résidu de glucose. Elle est stockée dans les racines et les rhizomes de nombreuses Astéracées comme réserve énergétique hivernale — l’équivalent fonctionnel de l’amidon chez les céréales, mais non digestible par l’amylase humaine.
Les trois sources sauvages les plus riches en inuline en Europe sont les suivantes.
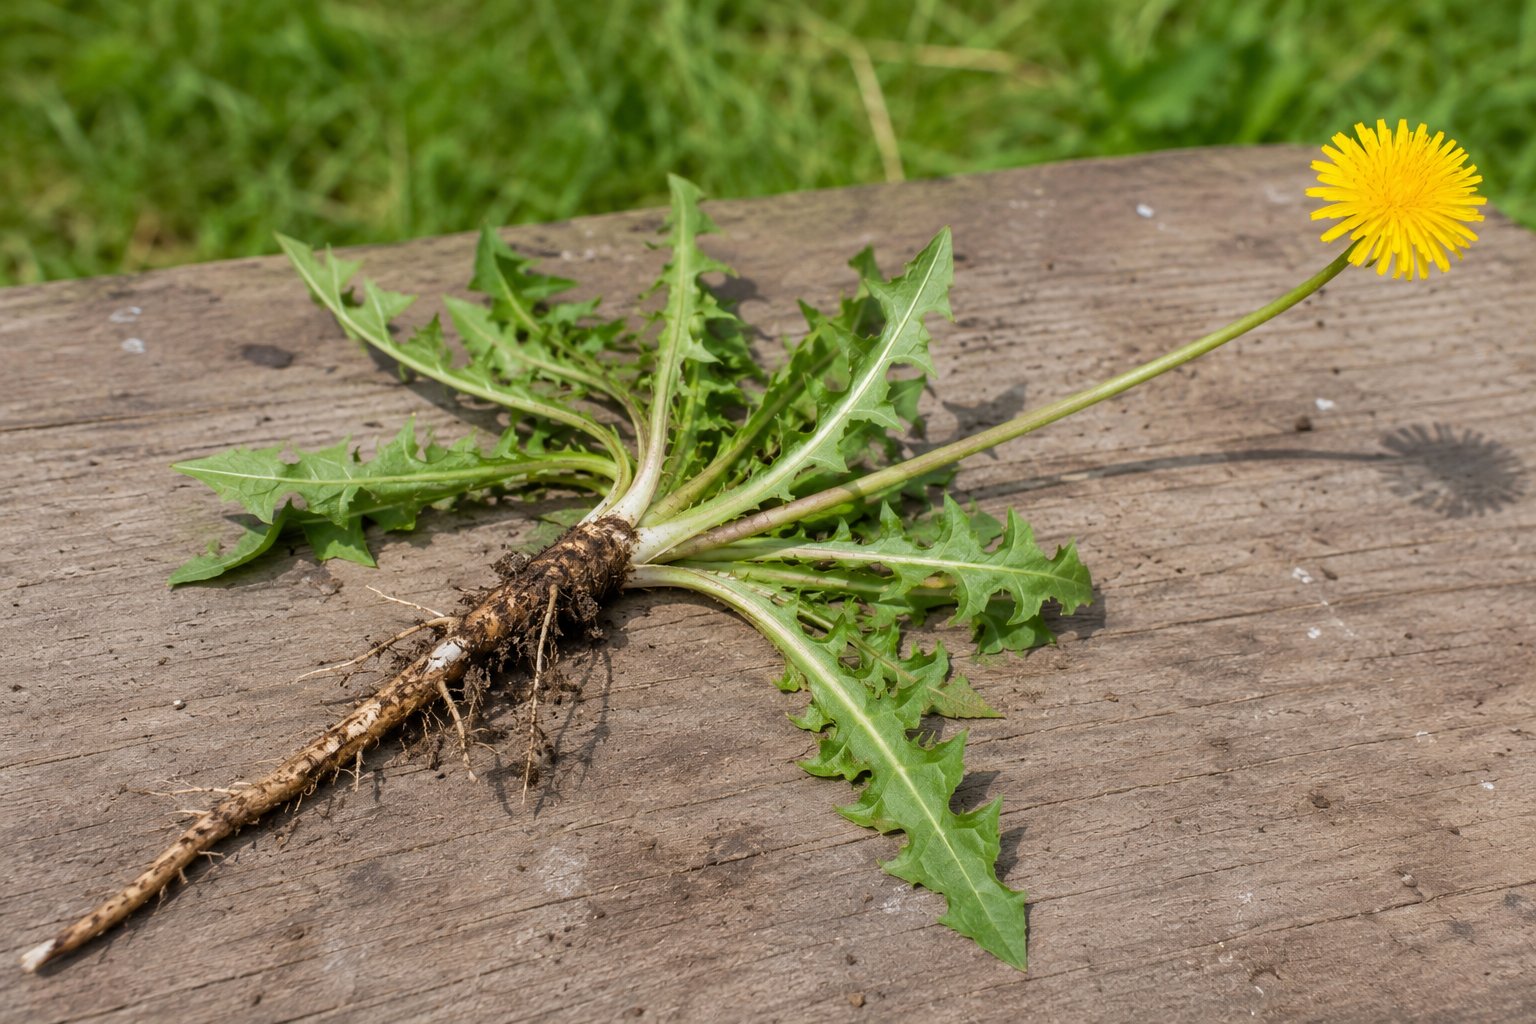
La racine de pissenlit (Taraxacum officinale) contient 12 à 15 % d’inuline sur poids frais (40 à 50 % sur matière sèche) en automne, lorsque les réserves sont maximales. La racine de pissenlit est la source sauvage d’inuline la plus accessible : le pissenlit pousse partout, sa racine pivotante est facile à arracher dans un sol humide, et elle se récolte d’octobre à mars.
La racine de chicorée sauvage (Cichorium intybus) contient 15 à 20 % d’inuline sur poids frais — c’est la source végétale la plus riche au monde, et c’est à partir de chicorée cultivée que l’industrie agroalimentaire produit la quasi-totalité de l’inuline commerciale (Orafti/Beneo en Belgique, Cosucra en France). La chicorée sauvage, reconnaissable à ses fleurs bleues, pousse dans les terrains calcaires, les bords de route et les jachères.
La racine de bardane (Arctium lappa, A. minus) contient 10 à 15 % d’inuline sur poids frais. En cuisine japonaise, la racine de bardane (gobo) est un légume courant, consommé sauté, en soupe ou en tempura. En Europe, elle est tombée dans l’oubli, mais elle mérite d’être redécouverte : son goût rappelle l’artichaut et le salsifis, et sa richesse en inuline en fait un excellent prébiotique alimentaire.
L’inuline est le prébiotique le mieux documenté scientifiquement. Plus de 200 essais cliniques ont démontré ses effets : augmentation significative des bifidobactéries fécales (effet bifidogène), augmentation de l’absorption du calcium et du magnésium, réduction du cholestérol LDL, amélioration de la régularité du transit, augmentation de la satiété. La dose efficace est de 5 à 10 g par jour, facilement atteignable avec une tisane de racine de pissenlit ou un plat de racines de bardane.
Tisane de racine de pissenlit. Couper 10 g de racine fraîche (ou 5 g de racine séchée) en petits morceaux. Placer dans 500 mL d’eau froide. Porter lentement à frémissement, laisser frémir 5 minutes, couper le feu et infuser 10 minutes. Filtrer. Boire 2 à 3 tasses par jour. L’inuline est partiellement soluble dans l’eau chaude : une partie reste dans le marc — pour un effet prébiotique maximal, consommer aussi la racine elle-même (en salade, râpée crue, ou cuite).
V. Les mucilages : plantain, mauve, guimauve
Les mucilages sont des polysaccharides hydrophiles (arabinogalactanes, glucomannanes, rhamnogalacturonanes) qui gonflent au contact de l’eau et forment des gels visqueux. Ils tapissent les muqueuses digestives, les protègent de l’irritation et exercent un effet émollient et anti-inflammatoire local.
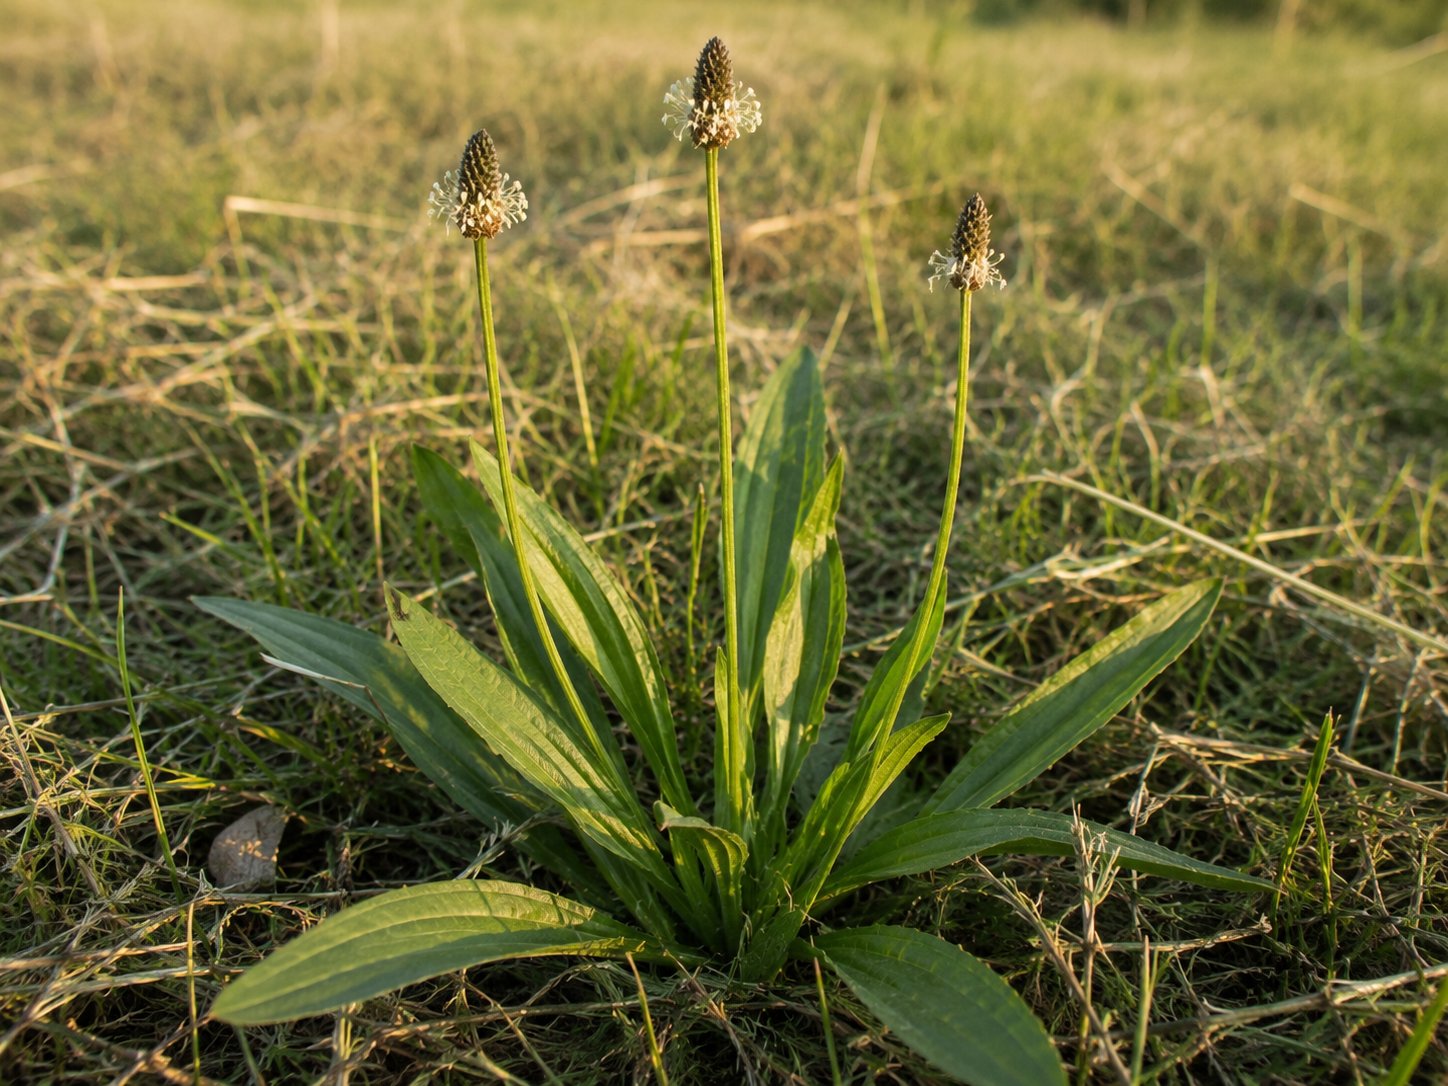
Le plantain (Plantago lanceolata, P. major, P. media) est la source sauvage de mucilages la plus accessible en Europe. Le tégument des graines de plantain (psyllium blond, Plantago ovata, est la forme cultivée commerciale) contient 10 à 30 % de mucilages. Les feuilles de plantain en contiennent 3 à 6 % — suffisamment pour exercer un effet protecteur sur la muqueuse gastrique et intestinale.
Les mucilages du plantain ont deux effets complémentaires sur le transit. En cas de constipation, ils absorbent l’eau et augmentent le volume du bol fécal, stimulant le péristaltisme. En cas de diarrhée, ils absorbent l’excès d’eau et forment un gel qui ralentit le transit et protège la muqueuse irritée. C’est cette double action qui fait du plantain un régulateur du transit plutôt qu’un simple laxatif.
La mauve sauvage (Malva sylvestris) est remarquablement riche en mucilages — jusqu’à 8 % dans les fleurs et les feuilles. L’infusion de fleurs de mauve, d’une belle couleur bleu-violet, est l’un des remèdes traditionnels les plus constants de la phytothérapie européenne contre les irritations de la gorge, les gastrites et les colites. Les mucilages de la mauve forment un film protecteur sur la muqueuse digestive qui réduit l’inflammation et calme la douleur.
La guimauve (Althaea officinalis) est la plante à mucilages par excellence — le mot « guimauve » est devenu synonyme de douceur et de moelleux. La racine de guimauve contient jusqu’à 25-35 % de mucilages, les feuilles 5-10 %. Le macérât à froid de racine de guimauve (laisser tremper 10 g de racine sèche dans 500 mL d’eau froide pendant 4 heures, filtrer) donne un liquide visqueux et doux qui calme les irritations digestives, les reflux gastro-œsophagiens et les toux sèches.
Les mucilages ne sont pas des prébiotiques au sens strict (ils ne stimulent pas sélectivement les bifidobactéries), mais ils exercent un effet bénéfique indirect sur le microbiote en protégeant la muqueuse intestinale et en réduisant l’inflammation locale — conditions nécessaires au bon fonctionnement de l’écosystème microbien.
VI. Les pectines : cynorrhodon, prunelle, cenelle
Les pectines sont des polysaccharides acides (acide galacturonique) présents dans la paroi cellulaire et la lamelle moyenne des cellules végétales. Elles sont particulièrement abondantes dans les fruits, où elles jouent un rôle structurel et participent à la gélification des confitures. Sur le plan nutritionnel, les pectines sont des fibres solubles fermentescibles qui exercent des effets bien documentés sur le métabolisme lipidique et glucidique.
Les fruits sauvages européens sont nettement plus riches en pectines que les fruits cultivés — la sélection variétale a favorisé la jutosité et la douceur au détriment de la fermeté et de la richesse en fibres. Les trois sources sauvages les plus intéressantes sont les suivantes.
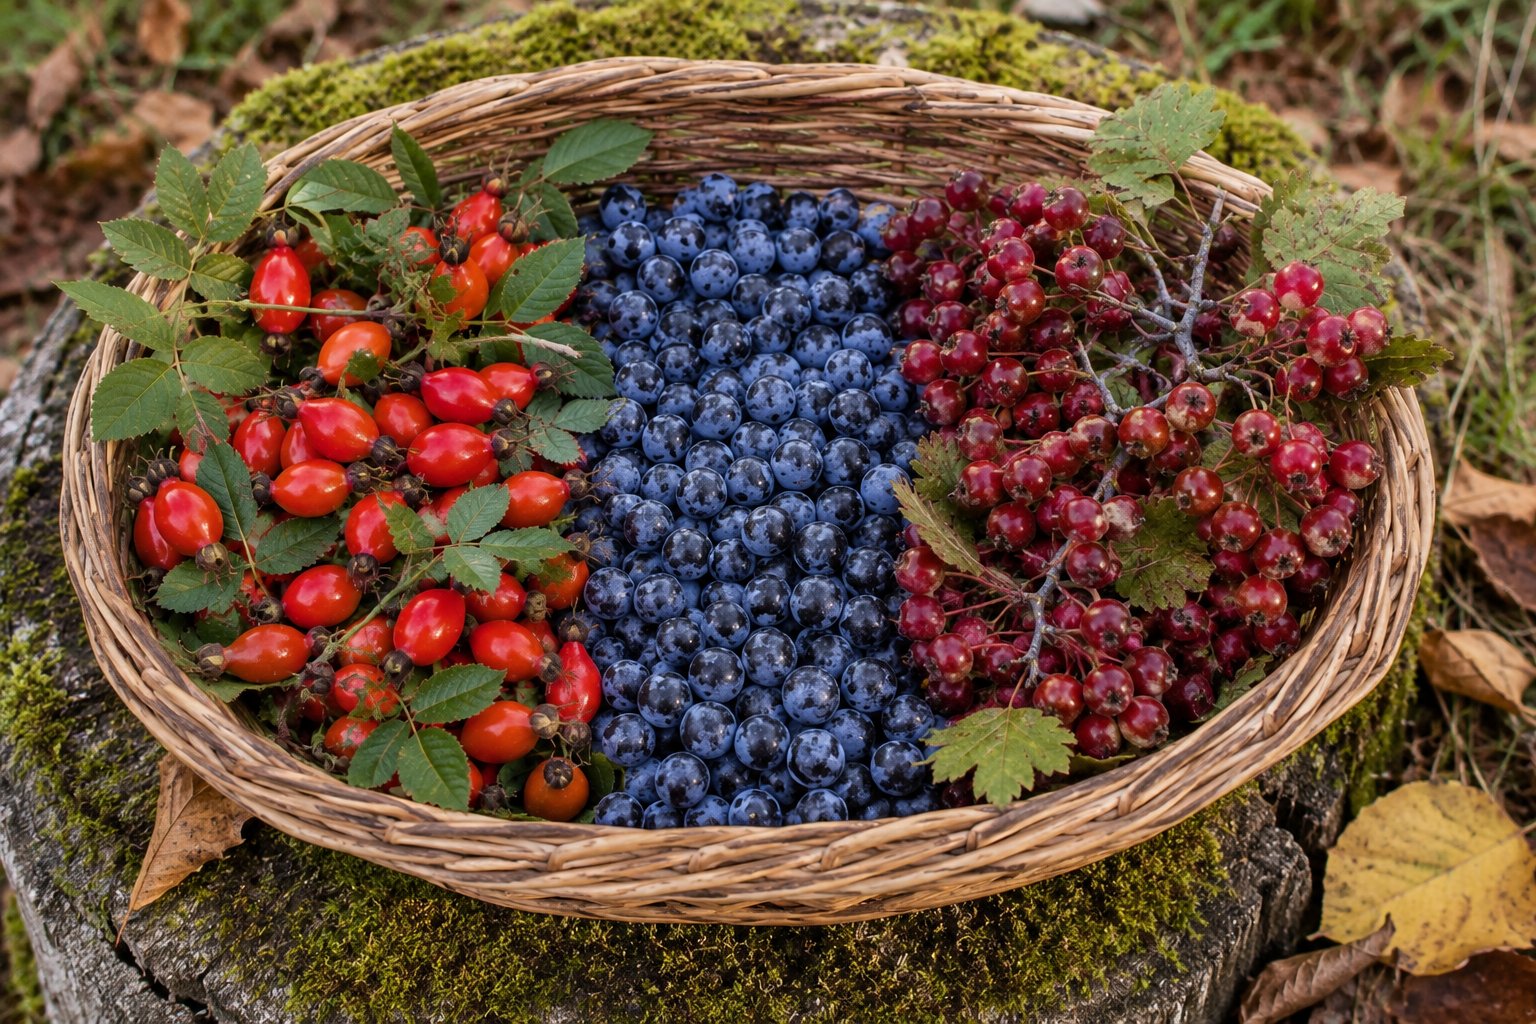
Le cynorrhodon (fruit de l’églantier, Rosa canina) contient 5 à 8 % de pectines sur poids frais (15-20 % sur matière sèche), en plus d’une teneur en vitamine C exceptionnelle (500-2 000 mg/100 g frais, soit 10 à 40 fois plus que l’orange). Les pectines du cynorrhodon forment des gels doux qui ralentissent l’absorption du glucose et captent les sels biliaires, contribuant à la réduction du cholestérol. La confiture de cynorrhodon, spécialité alsacienne et scandinave, gèle naturellement sans ajout de pectine commerciale.
La prunelle (fruit du prunellier, Prunus spinosa) contient 3 à 6 % de pectines, accompagnées de tanins condensés astringents qui diminuent après les premières gelées. La prunelle est traditionnellement utilisée pour préparer des liqueurs (prunelle de Bourgogne), des confitures et des pâtes de fruits. Sa richesse en pectines et en tanins en fait un fruit intéressant pour la régulation du transit et du cholestérol.
La cenelle (fruit de l’aubépine, Crataegus monogyna) contient 2 à 5 % de pectines. Elle est peu consommée en France mais très utilisée dans les traditions chinoises (confiseries) et anglo-saxonnes (gelées). La cenelle cumulant pectines et flavonoïdes cardioprotecteurs, elle est doublement intéressante.
Les pectines exercent leur effet hypocholestérolémiant en piégeant les acides biliaires dans le tube digestif. Les acides biliaires, synthétisés par le foie à partir du cholestérol, sont normalement réabsorbés dans l’iléon et recyclés (cycle entéro-hépatique). Les pectines forment des complexes insolubles avec les acides biliaires, empêchant leur réabsorption et forçant le foie à puiser dans le cholestérol sanguin pour en synthétiser de nouveaux. Résultat : baisse du LDL-cholestérol de 5 à 15 % pour un apport de 6 à 10 g de pectines par jour.
VII. Cellulose et hémicellulose des feuilles sauvages
La cellulose est le composé organique le plus abondant sur Terre. Polymère linéaire de glucose lié en β(1→4), elle constitue l’essentiel de la charpente des parois cellulaires végétales. L’enzyme cellulase, nécessaire à son hydrolyse, est absente du tube digestif humain — la cellulose traverse donc l’intestin intacte, augmentant le volume du bol fécal et stimulant le péristaltisme mécanique.
Les hémicelluloses (xylanes, mannanes, glucomannanes) sont des polysaccharides associés à la cellulose dans la paroi cellulaire. Elles sont partiellement fermentées par le microbiote colique (20-80 % selon le type) et contribuent modestement à la production d’AGCC.
Les feuilles sauvages contiennent globalement davantage de cellulose et d’hémicellulose que les légumes cultivés. L’ortie, le plantain âgé, le pissenlit mûr, le chénopode en fin de saison développent des fibres coriaces que la sélection variétale a éliminées des légumes de supermarché. Cette dureté est un inconvénient gustatif mais un avantage nutritionnel : elle augmente la teneur en fibres insolubles et donc l’effet de lest mécanique sur le transit.
La cuisson prolongée ramollit la cellulose sans la détruire (elle reste non digestible), ce qui rend les feuilles fibreuses comestibles tout en conservant leur apport en fibres. Les soupes de feuilles sauvages mixées sont le meilleur compromis entre palatabilité et richesse en fibres insolubles.
VIII. Fructo-oligosaccharides et autres oligosides
Les fructo-oligosaccharides (FOS) sont des chaînes courtes de fructose (2 à 10 unités) liées en β(2→1), chimiquement apparentées à l’inuline (qui est un FOS à chaîne longue). Les FOS à chaîne courte sont fermentés plus rapidement que l’inuline par le microbiote, ce qui les rend plus efficaces comme prébiotiques à court terme mais aussi plus susceptibles de provoquer des ballonnements chez les personnes sensibles (FODMAP).
Les FOS sont présents dans de nombreuses plantes sauvages, mais en quantité généralement inférieure à celle de l’inuline. Les sources sauvages les plus significatives incluent la racine de pissenlit (FOS à chaîne courte + inuline à chaîne longue — un spectre complet), la racine de chicorée sauvage (même profil), l’ail des ours (Allium ursinum, 4-8 % de FOS dans le bulbe) et le topinambour sauvage (Helianthus tuberosus, naturalisé en Europe, 15-20 % de FOS + inuline dans le tubercule).
Les galacto-oligosaccharides (GOS) et les xylo-oligosaccharides (XOS) sont d’autres oligosides prébiotiques présents en petite quantité dans diverses plantes sauvages. Leur contribution est mineure par rapport à celle de l’inuline et des FOS, mais elle participe à la diversité des substrats fermentescibles — un facteur important pour la diversité du microbiote.
IX. β-glucanes des champignons sauvages
Les β-glucanes sont des polysaccharides de glucose liés en β(1→3) et β(1→6), présents dans la paroi cellulaire des champignons (basidiomycètes) et de certaines céréales (avoine, orge). Les β-glucanes fongiques ont des propriétés immunostimulantes bien documentées : ils activent les macrophages, les cellules NK (natural killer) et la production d’interféron, renforçant la réponse immunitaire innée.
Les champignons sauvages comestibles européens sont tous riches en β-glucanes : cèpe (Boletus edulis, 5-12 % du poids sec), girolle (Cantharellus cibarius, 4-8 %), pied-de-mouton (Hydnum repandum, 6-10 %), trompette-de-la-mort (Craterellus cornucopioides, 5-9 %), coulemelle (Macrolepiota procera, 4-7 %).
Les β-glucanes fongiques exercent un double effet : un effet prébiotique (fermentation par le microbiote, production d’AGCC) et un effet immunomodulateur direct (activation des récepteurs Dectin-1 des cellules immunitaires intestinales). Ce double effet explique l’intérêt croissant de la recherche pour les champignons médicinaux — mais les champignons sauvages comestibles européens exercent les mêmes effets que les shiitake et les reishi asiatiques, simplement avec moins de marketing.
X. Acides gras à chaîne courte : le butyrate
Les acides gras à chaîne courte (AGCC) sont les produits finaux de la fermentation anaérobie des fibres solubles par le microbiote colique. Les trois principaux sont l’acétate (C2), le propionate (C3) et le butyrate (C4), produits dans un rapport molaire approximatif de 60:20:20.
Le butyrate est le plus étudié et le plus important pour la santé colique. C’est le substrat énergétique préféré des colonocytes (cellules épithéliales du côlon) : il fournit 60 à 70 % de leur énergie. Un apport suffisant en butyrate maintient l’intégrité de la barrière intestinale, stimule la production de mucus protecteur, inhibe la prolifération des cellules cancéreuses coliques (effet pro-apoptotique) et réduit l’inflammation locale (inhibition du NF-κB).
Le butyrate exerce aussi des effets systémiques : il traverse la barrière intestinale, passe dans le sang et agit comme molécule de signalisation. Il améliore la sensibilité à l’insuline, réduit l’inflammation systémique de bas grade et influence même le fonctionnement cérébral via l’axe intestin-cerveau (effet sur les cellules de la microglie, sur la production de BDNF — facteur neurotrophique).
Les fibres les plus butyrogeniques (qui produisent le plus de butyrate) sont l’inuline, les FOS, l’amidon résistant et les pectines. Les plantes sauvages riches en inuline (pissenlit, chicorée, bardane) et en pectines (cynorrhodon, prunelle) sont donc des sources indirectes de butyrate via leur fermentation par le microbiote.
XI. Régulation du transit intestinal
Les plantes sauvages exercent un effet régulateur sur le transit intestinal par trois mécanismes complémentaires.
Le lest mécanique des fibres insolubles (cellulose, hémicellulose des feuilles sauvages) augmente le volume du bol fécal et stimule le péristaltisme par distension de la paroi colique. Cet effet est proportionnel à la quantité de fibres insolubles consommées — d’où l’intérêt des soupes épaisses de feuilles sauvages.
L’hydratation par les mucilages (plantain, mauve, guimauve) piège l’eau dans le bol fécal et le maintient hydraté, facilitant la progression et l’évacuation. Les mucilages ont l’avantage de réguler le transit dans les deux sens : ils absorbent l’excès d’eau en cas de diarrhée et retiennent l’eau en cas de constipation.
La stimulation du microbiote par les prébiotiques (inuline, FOS, pectines) augmente la production d’AGCC, qui stimulent la motilité colique par action directe sur les cellules musculaires lisses et sur les cellules entérochromaffines productrices de sérotonine (la sérotonine intestinale est le principal régulateur de la motilité).
En pratique, un mélange de plantes sauvages couvrant les trois mécanismes — feuilles fibreuses (ortie, plantain), racines à inuline (pissenlit), mucilages (mauve) — constitue une approche complète de la régulation du transit, plus physiologique et plus douce que les laxatifs de synthèse.
XII. Fibres et métabolisme lipidique
Les fibres solubles — pectines, mucilages, β-glucanes — exercent un effet hypocholestérolémiant par deux mécanismes principaux.
Le premier est le piégeage des acides biliaires, déjà décrit pour les pectines. En empêchant le recyclage des acides biliaires, les fibres solubles forcent le foie à puiser dans le cholestérol circulant pour en synthétiser de nouveaux, ce qui réduit le LDL-cholestérol.
Le second est l’inhibition de la synthèse hépatique de cholestérol par le propionate, l’un des trois AGCC produits par la fermentation des fibres. Le propionate, absorbé dans la veine porte et capté par le foie, inhibe l’enzyme HMG-CoA réductase — la même enzyme que ciblent les statines. L’effet est modeste comparé aux statines (5-15 % de réduction du LDL vs 30-50 %), mais il est physiologique et dépourvu d’effets secondaires.
Une méta-analyse de Brown et al. (1999), portant sur 67 essais cliniques, a conclu que chaque gramme supplémentaire de fibre soluble réduit le LDL-cholestérol de 2,2 mg/dL en moyenne. Pour une consommation de 10 g de fibres solubles par jour (facilement atteignable avec des plantes sauvages riches en pectines et en inuline), la réduction attendue est de 22 mg/dL — cliniquement significative.
XIII. Fibres et contrôle glycémique
Les fibres solubles ralentissent l’absorption intestinale du glucose par deux mécanismes. Elles forment un gel visqueux dans l’intestin grêle qui ralentit la diffusion du glucose vers les entérocytes. Et elles ralentissent la vidange gastrique, ce qui étale dans le temps l’arrivée du glucose dans l’intestin.
Résultat : les pics glycémiques postprandiaux sont atténués, la sécrétion d’insuline est plus progressive, et la charge glycémique globale du repas diminue. Cet effet est particulièrement intéressant pour les personnes diabétiques de type 2 ou prédiabétiques.
Les mucilages du plantain et les pectines du cynorrhodon sont les fibres sauvages les plus efficaces pour le contrôle glycémique. Le psyllium blond (plantain d’Inde), dont le tégument contient 30 % de mucilages, est d’ailleurs recommandé par les sociétés savantes de diabétologie comme adjuvant alimentaire pour réduire la glycémie postprandiale (dose efficace : 5 à 10 g avant les repas).
L’inuline exerce un effet glycémique indirect : en stimulant la production de propionate par le microbiote, elle améliore la sensibilité à l’insuline au niveau hépatique et musculaire. Cet effet, démontré dans plusieurs essais cliniques (Guess et al., 2015 ; Dewulf et al., 2013), est modeste mais consistant.
XIV. Fibres, microbiote et immunité
Le tube digestif héberge 70 à 80 % des cellules immunitaires de l’organisme, concentrées dans le tissu lymphoïde associé à l’intestin (GALT — Gut-Associated Lymphoid Tissue). Le microbiote et les fibres alimentaires jouent un rôle central dans la maturation et la régulation de ce système immunitaire intestinal.
Les AGCC produits par la fermentation des fibres — en particulier le butyrate — stimulent la production de lymphocytes T régulateurs (Treg) dans le côlon. Les Treg sont les cellules responsables de la tolérance immunitaire : ils empêchent le système immunitaire d’attaquer les composants inoffensifs de l’alimentation (prévention des allergies alimentaires) et les bactéries commensales du microbiote (prévention des maladies inflammatoires intestinales).
Les β-glucanes des champignons sauvages activent directement les cellules de l’immunité innée (macrophages, cellules dendritiques, cellules NK) via les récepteurs Dectin-1 et CR3. Cette activation n’est pas une « stimulation » aveugle mais une modulation : les β-glucanes augmentent la vigilance immunitaire sans provoquer d’inflammation excessive.
Les pectines et les mucilages, en protégeant l’intégrité de la barrière intestinale, préviennent la translocation bactérienne (passage de bactéries ou de fragments bactériens du tube digestif vers le sang) — un phénomène qui déclenche une inflammation systémique de bas grade, impliquée dans l’obésité, le diabète de type 2, les maladies cardiovasculaires et la dépression.
XV. Récolte et conservation
Racines à inuline (pissenlit, chicorée, bardane). Récolter en automne (octobre-novembre) ou en fin d’hiver (février-mars), lorsque les réserves en inuline sont maximales. Arracher dans un sol humide, laver soigneusement, couper en rondelles de 5 mm. Sécher au déshydrateur (40 °C, 12-24 heures) ou au four (porte entrouverte, 50 °C). Les rondelles séchées se conservent 12 mois en bocal hermétique. Pour la tisane, les torréfier légèrement à la poêle donne un goût de café et de caramel.
Feuilles de plantain. Récolter les feuilles jeunes du printemps à l’automne. Sécher à plat sur un cadre grillagé, à l’ombre, 3-5 jours. La poudre de feuilles séchées s’ajoute aux soupes et aux smoothies. Les graines se récoltent en fin d’été en coupant les hampes mûres et en les frottant au-dessus d’un récipient.
Fleurs de mauve. Récolter les fleurs épanouies de juin à septembre, par temps sec. Sécher rapidement à l’ombre pour conserver la couleur. Conservation : 6 mois en bocal opaque.
Cynorrhodons. Récolter après les premières gelées (novembre-décembre), quand la chair est ramollie. Couper en deux, retirer les graines et les poils (irritants), sécher au déshydrateur (50 °C, 12-18 heures). Les cynorrhodons séchés se conservent 12 mois. Pour la confiture : cuire les cynorrhodons entiers, passer au moulin à légumes (grille fine) pour éliminer graines et poils.
Champignons. Sécher les champignons sauvages en tranches fines au déshydrateur (45 °C, 6-10 heures) ou enfilés sur un fil dans un lieu chaud et ventilé. Les champignons séchés conservent leurs β-glucanes intégralement et se réhydratent en 30 minutes dans l’eau tiède.
XVI. Préparations et recettes
Tisane prébiotique du soir. Mélanger à parts égales : racine de pissenlit séchée (torréfiée), racine de chicorée séchée (torréfiée), fleurs de mauve séchées. Mettre 2 cuillerées à café du mélange dans 300 mL d’eau froide. Porter à frémissement, couper le feu, infuser 10 minutes. Filtrer. Le goût rappelle le café au caramel avec une note florale. L’inuline du pissenlit et de la chicorée nourrit le microbiote nocturne, les mucilages de la mauve protègent la muqueuse.
Soupe de racines sauvages. Éplucher et couper en dés 200 g de racines de bardane, 100 g de racines de pissenlit, 2 pommes de terre. Cuire dans 1 litre d’eau avec un oignon et du sel. Mixer. Servir avec un filet d’huile de noix et du persil frais. Cette soupe apporte 8 à 12 g d’inuline par portion — une dose prébiotique optimale.
Confiture de cynorrhodons. Cuire 1 kg de cynorrhodons dans 500 mL d’eau pendant 30 minutes. Passer au moulin à légumes (grille fine) pour éliminer graines et poils. Peser la pulpe obtenue, ajouter le même poids de sucre (ou moitié sucre moitié miel). Cuire à feu doux jusqu’à consistance de confiture (15-20 minutes). Mettre en pots stérilisés. La confiture gèle naturellement grâce aux pectines du cynorrhodon — aucun ajout de gélifiant nécessaire.
Poudre de plantain prébiotique. Sécher des feuilles de plantain lancéolé, les réduire en poudre fine au moulin à café. Conserver en bocal hermétique. Ajouter 1 à 2 cuillerées à café par jour dans les soupes, les smoothies, les yaourts. La poudre apporte des mucilages, des fibres insolubles et des iridoïdes anti-inflammatoires.
XVII. Précautions et contre-indications
L’introduction de fibres sauvages dans l’alimentation doit être progressive. Un apport brutal de fibres fermentescibles (inuline, FOS) chez une personne habituée à un régime pauvre en fibres provoque des ballonnements, des flatulences et des douleurs abdominales — le microbiote a besoin de 2 à 4 semaines pour adapter sa composition aux nouveaux substrats. Commencer par de petites quantités (5 g de racine de pissenlit, une tasse de tisane) et augmenter progressivement.
Les personnes souffrant du syndrome de l’intestin irritable (SII) doivent être prudentes avec les fibres fermentescibles (FODMAP). L’inuline et les FOS font partie des FODMAP (oligosaccharides fermentescibles) et peuvent aggraver les symptômes chez les personnes sensibles. Dans ce cas, privilégier les fibres insolubles (feuilles cuites) et les mucilages (plantain, mauve) plutôt que les prébiotiques fermentescibles.
Les mucilages doivent être consommés avec suffisamment d’eau — sans hydratation adéquate, ils peuvent provoquer une obstruction intestinale (risque théorique, rarement observé en pratique avec les plantes sauvages, plus fréquent avec le psyllium en poudre concentré).
Les oxalates du chénopode et de l’oseille réduisent l’absorption du calcium et peuvent favoriser les calculs rénaux chez les personnes prédisposées. Ce sujet sera traité en détail dans un article dédié aux antinutriments.
Les champignons sauvages ne doivent être consommés que s’ils ont été formellement identifiés par une personne compétente. Les confusions sont la première cause d’intoxication alimentaire grave en France.
XVIII. Synthèse
Les plantes sauvages sont une source de fibres alimentaires quantitativement et qualitativement supérieure aux légumes cultivés. Elles fournissent à la fois des fibres insolubles (cellulose, hémicellulose) pour le transit mécanique et des fibres solubles prébiotiques (inuline, FOS, pectines, mucilages) pour le microbiote — un double apport que peu d’aliments cultivés offrent simultanément.
L’inuline du pissenlit, de la chicorée et de la bardane est le prébiotique le mieux documenté scientifiquement. Les mucilages du plantain, de la mauve et de la guimauve protègent la muqueuse digestive. Les pectines du cynorrhodon et de la prunelle réduisent le cholestérol et stabilisent la glycémie. Les β-glucanes des champignons sauvages modulent l’immunité.
Toutes ces fibres convergent vers un même objectif : nourrir et diversifier le microbiote intestinal, entretenir la barrière muqueuse, produire des acides gras à chaîne courte — et, à travers ces mécanismes, réduire l’inflammation systémique, améliorer le métabolisme et renforcer l’immunité. C’est un cercle vertueux dont le point de départ est dans l’assiette — ou, plus exactement, dans la haie, le talus et la friche d’à côté.
Bibliographie
- Gibson G.R., Roberfroid M.B., « Dietary modulation of the human colonic microbiota: introducing the concept of prebiotics », Journal of Nutrition, 125(6), 1995, p. 1401-1412.
- Gibson G.R. et al., « Expert consensus document: The International Scientific Association for Probiotics and Prebiotics (ISAPP) consensus statement on the definition and scope of prebiotics », Nature Reviews Gastroenterology & Hepatology, 14(8), 2017, p. 491-502.
- Roberfroid M.B., « Inulin-type fructans: functional food ingredients », Journal of Nutrition, 137(11), 2007, p. 2493S-2502S.
- Niness K.R., « Inulin and oligofructose: what are they? », Journal of Nutrition, 129(7), 1999, p. 1402S-1406S.
- Brown L. et al., « Cholesterol-lowering effects of dietary fiber: a meta-analysis », American Journal of Clinical Nutrition, 69(1), 1999, p. 30-42.
- Guess N.D. et al., « A randomized controlled trial: the effect of inulin on weight management and ectopic fat in subjects with prediabetes », Nutrition & Metabolism, 12, 2015, p. 36.
- Dewulf E.M. et al., « Insight into the prebiotic concept: lessons from an exploratory, double blind intervention study with inulin-type fructans in obese women », Gut, 62(8), 2013, p. 1112-1121.
- Sonnenburg E.D., Sonnenburg J.L., « Starving our microbial self: the deleterious consequences of a diet deficient in microbiota-accessible carbohydrates », Cell Metabolism, 20(5), 2014, p. 779-786.
- Desai M.S. et al., « A dietary fiber-deprived gut microbiota degrades the colonic mucus barrier and enhances pathogen susceptibility », Cell, 167(5), 2016, p. 1339-1353.
- Koh A. et al., « From dietary fiber to host physiology: short-chain fatty acids as key bacterial metabolites », Cell, 165(6), 2016, p. 1332-1345.
- ANSES, « Actualisation des repères du PNNS : révision des repères de consommations alimentaires », rapport d’expertise collective, 2016.
- Tosh S.M., Bordenave N., « Emerging science on benefits of whole grains and pulses: β-glucans and resistant starch », Cereal Chemistry, 97(1), 2020, p. 159-176.
- Vetvicka V. et al., « β-Glucan: supplement or drug? From laboratory to clinical trials », Molecules, 24(7), 2019, p. 1251.
- McRorie J.W., McKeown N.M., « Understanding the physics of functional fibers in the gastrointestinal tract », Nutrition in Clinical Practice, 32(2), 2017, p. 159-173.
- Slavin J.L., « Fiber and prebiotics: mechanisms and health benefits », Nutrients, 5(4), 2013, p. 1417-1435.
Avertissement. Cet article est publié à titre informatif et ne constitue pas un avis médical ni diététique. L’introduction de fibres fermentescibles doit être progressive pour éviter les désagréments digestifs. Les personnes souffrant du syndrome de l’intestin irritable doivent consulter un professionnel de santé avant de modifier leur apport en fibres. Les champignons sauvages ne doivent être consommés que s’ils ont été formellement identifiés par un mycologue compétent.