Les acides gras oméga-3 sont universellement associés aux poissons gras des mers froides. Ce que l’on sait moins, c’est que ces acides gras essentiels proviennent originellement du monde végétal : les poissons ne synthétisent pas les oméga-3, ils les accumulent en consommant du phytoplancton et des algues qui, eux, les fabriquent. En remontant la chaîne, on découvre que plusieurs plantes sauvages européennes sont des sources remarquables d’acide alpha-linolénique (ALA), le précurseur végétal de toute la famille oméga-3. Le pourpier, cette plante rampante que l’on arrache des potagers, est le légume-feuille le plus riche en ALA du règne végétal — et le seul à contenir aussi de l’EPA, un oméga-3 à longue chaîne que l’on croyait réservé au monde marin. La cameline, crucifère autrefois cultivée depuis l’âge du bronze, fournit une huile dont 35 à 40 % des acides gras sont de l’ALA. Les noix du noyer commun, les graines de lin naturalisé, le mouron des oiseaux, les feuilles d’ortie : le terrain regorge d’oméga-3 végétaux que l’alimentation moderne a oubliés. Cette monographie explore la biochimie des oméga-3, leur conversion métabolique, le déséquilibre oméga-6/oméga-3 de l’alimentation contemporaine, et les moyens concrets de rétablir cet équilibre en puisant dans la flore sauvage européenne.
II. La famille oméga-3 : ALA, EPA, DHA
III. La conversion ALA → EPA → DHA
IV. Le déséquilibre oméga-6/oméga-3
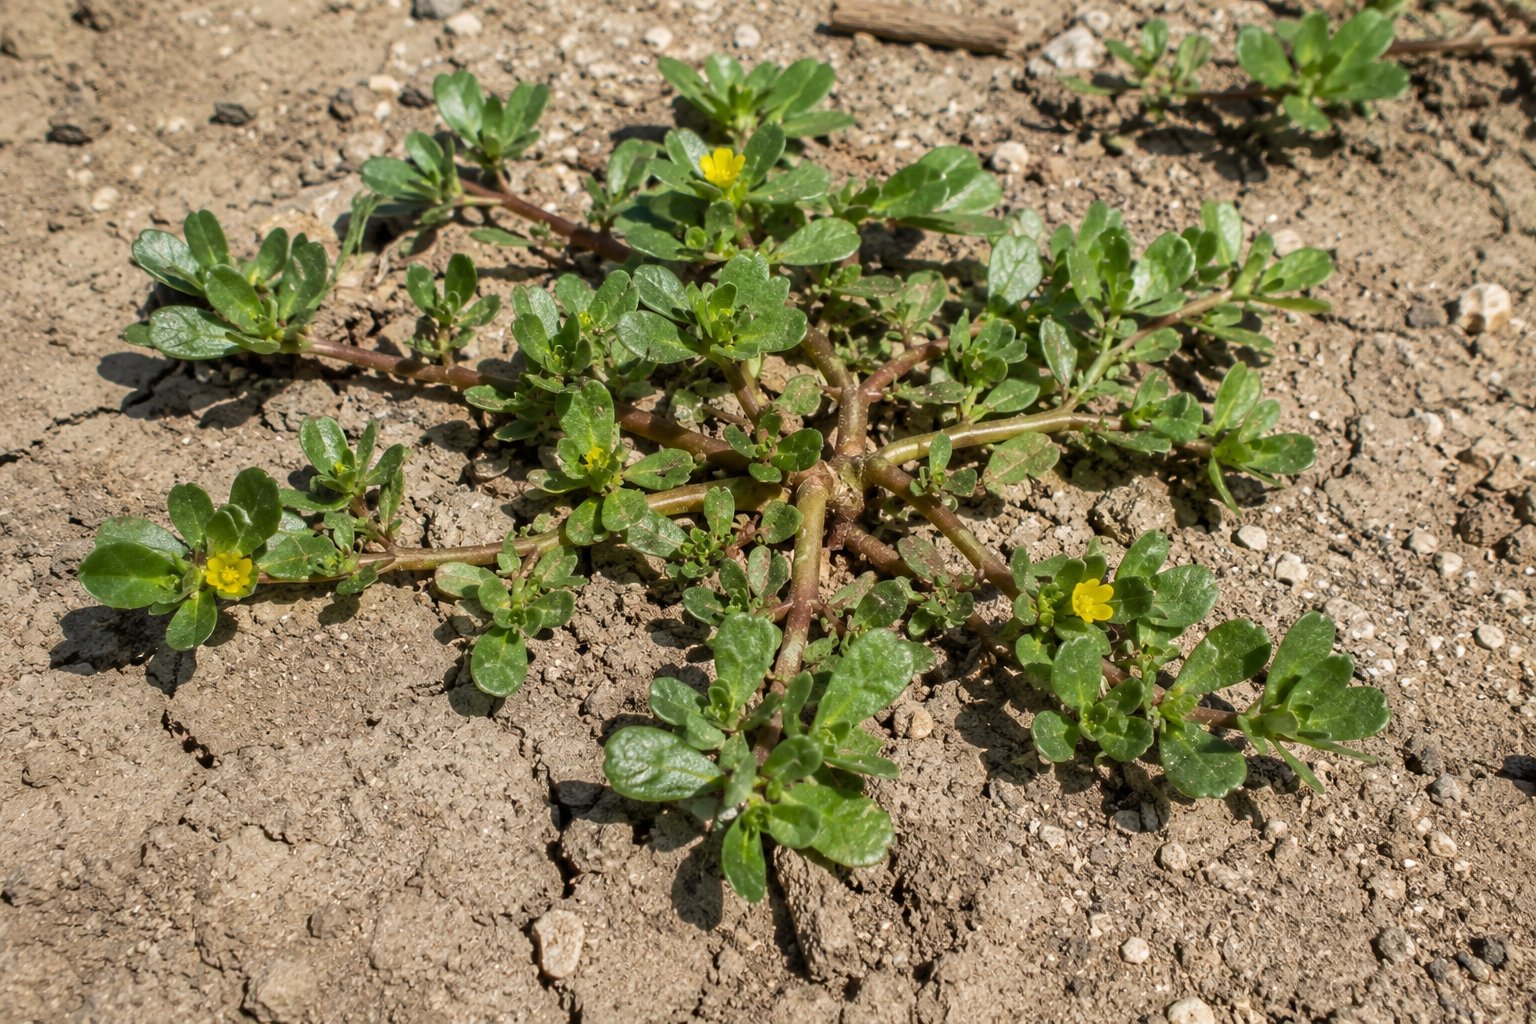
V. Le pourpier : champion végétal des oméga-3
VI. La cameline : une huile oubliée depuis l’âge du bronze
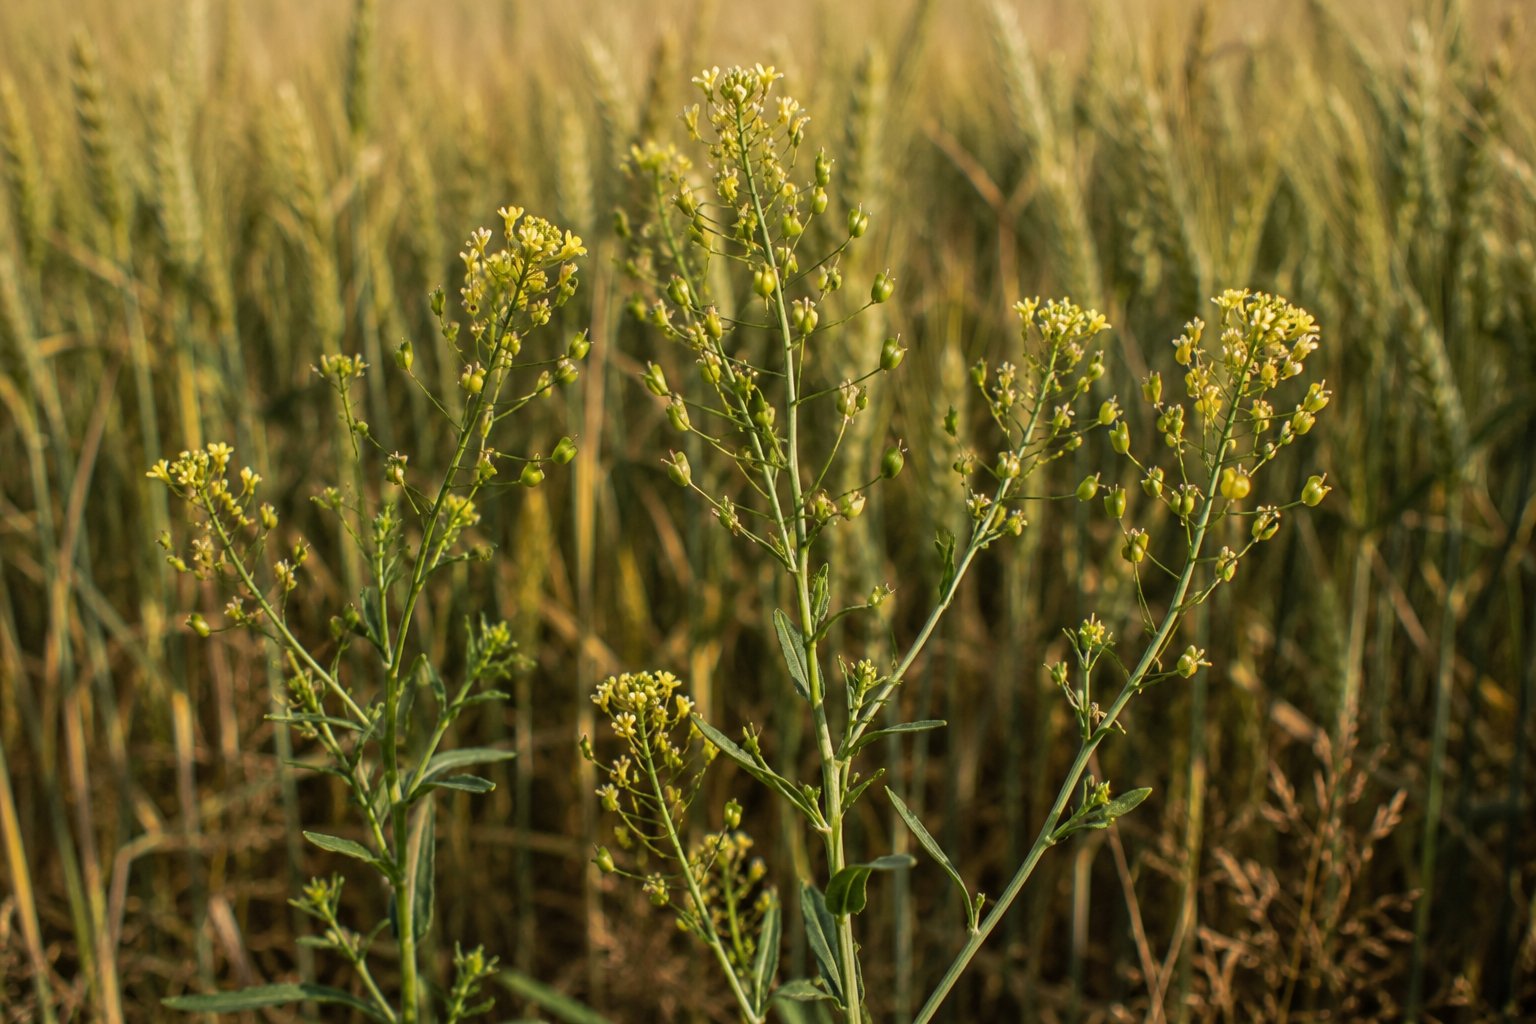
VII. Le noyer commun et ses cerneaux
VIII. Le lin : de la fibre textile à la graine médicinale
IX. Ortie, mouron, chénopode : les feuilles sauvages
X. Oméga-3 et inflammation
XI. Protection cardiovasculaire
XII. Cerveau, cognition et humeur
XIII. Oxydation des oméga-3 et antioxydants naturels
XIV. Récolte et conservation
XV. Préparations culinaires
XVI. Doses et équivalences pratiques
XVII. Précautions et contre-indications
XVIII. Synthèse
I. Acides gras essentiels : rappels biochimiques
Les acides gras sont des chaînes carbonées portant une fonction acide carboxylique (–COOH) à une extrémité et un groupement méthyle (–CH₃) à l’autre. Ils constituent les briques élémentaires des lipides membranaires, des réserves énergétiques et de nombreuses molécules de signalisation cellulaire.
Un acide gras est dit saturé lorsque tous les atomes de carbone de la chaîne sont liés entre eux par des liaisons simples. Il est dit insaturé lorsqu’il comporte une ou plusieurs doubles liaisons carbone-carbone (C=C). Les acides gras mono-insaturés possèdent une seule double liaison (comme l’acide oléique de l’huile d’olive). Les acides gras polyinsaturés (AGPI) en possèdent plusieurs — ce sont eux qui nous intéressent ici.
La nomenclature des acides gras polyinsaturés repose sur la position de la première double liaison comptée depuis l’extrémité méthyle (oméga, ω). Si cette première double liaison se situe sur le troisième carbone, l’acide gras appartient à la famille oméga-3 (ω-3). Si elle se situe sur le sixième carbone, il appartient à la famille oméga-6 (ω-6).
L’organisme humain est incapable de placer une double liaison en position ω-3 ou ω-6 sur une chaîne carbonée. Il ne peut donc pas synthétiser les deux chefs de file de ces familles : l’acide alpha-linolénique (ALA, 18:3 ω-3) et l’acide linoléique (LA, 18:2 ω-6). Ces deux acides gras sont dits essentiels — ils doivent impérativement être apportés par l’alimentation. Seuls les végétaux (et certaines bactéries et algues) possèdent les enzymes désaturases capables de les fabriquer.
C’est un point fondamental : tous les oméga-3 présents dans la chaîne alimentaire — y compris ceux des poissons — proviennent originellement de la photosynthèse végétale. Le phytoplancton synthétise l’ALA, l’allonge en EPA et DHA, le zooplancton s’en nourrit, les petits poissons mangent le zooplancton, les gros poissons mangent les petits. La chair de saumon est riche en oméga-3 parce que le saumon mange des harengs qui mangent du krill qui mange des diatomées. Les plantes sont la source primaire.
II. La famille oméga-3 : ALA, EPA, DHA
La famille oméga-3 comprend trois membres principaux, qui diffèrent par la longueur de leur chaîne carbonée et le nombre de leurs doubles liaisons.
L’acide alpha-linolénique (ALA, 18:3 ω-3) est le chef de file végétal. C’est un acide gras à 18 carbones et 3 doubles liaisons, en positions 9, 12 et 15. On le trouve dans les feuilles vertes (où il est un composant des chloroplastes), les graines oléagineuses (lin, chanvre, cameline, noix) et certaines huiles végétales. C’est l’oméga-3 le plus abondant dans l’alimentation humaine.
L’acide eicosapentaénoïque (EPA, 20:5 ω-3) est un acide gras à 20 carbones et 5 doubles liaisons. Il est le précurseur des résolvines de la série E et des prostaglandines de la série 3 — des médiateurs lipidiques puissamment anti-inflammatoires. L’EPA est surtout présent dans les poissons gras et les algues marines, mais on le trouve aussi — fait remarquable — dans les feuilles de pourpier.
L’acide docosahexaénoïque (DHA, 22:6 ω-3) est un acide gras à 22 carbones et 6 doubles liaisons. C’est le principal oméga-3 structural du cerveau (il représente 15 à 20 % des acides gras du cortex cérébral) et de la rétine (jusqu’à 50 % des acides gras des photorécepteurs). Le DHA est le précurseur des résolvines de la série D, des protectines et des marésines — des médiateurs impliqués dans la résolution de l’inflammation et la neuroprotection.
L’ALA est le seul oméga-3 strictement essentiel (indispensable et non synthétisable). L’EPA et le DHA peuvent théoriquement être produits par conversion enzymatique à partir de l’ALA — mais cette conversion est limitée, comme nous allons le voir.
III. La conversion ALA → EPA → DHA
L’organisme humain possède les enzymes nécessaires pour allonger et désaturer l’ALA en EPA, puis en DHA. La voie métabolique fait intervenir successivement la Δ6-désaturase (qui ajoute une double liaison), une élongase (qui allonge la chaîne de 2 carbones), la Δ5-désaturase (qui ajoute une autre double liaison) pour former l’EPA, puis une nouvelle élongation, une Δ6-désaturase et une β-oxydation peroxysomale pour former le DHA.
Le problème est que cette conversion est quantitativement faible. Les études de traçage isotopique chez l’humain montrent que seulement 5 à 10 % de l’ALA ingéré est converti en EPA, et 1 à 5 % en DHA (Burdge & Calder, 2005 ; Plourde & Cunnane, 2007). Chez les femmes en âge de procréer, les taux de conversion sont environ deux fois plus élevés, probablement sous l’effet des œstrogènes — un avantage évolutif lié aux besoins du fœtus en DHA pour le développement cérébral.
Plusieurs facteurs limitent cette conversion. La Δ6-désaturase est l’enzyme limitante : elle est partagée entre la voie des oméga-3 et celle des oméga-6. Plus l’apport en acide linoléique (oméga-6) est élevé, plus cette enzyme est mobilisée pour convertir le LA en acide arachidonique, au détriment de la conversion de l’ALA en EPA. Le rapport oméga-6/oméga-3 de l’alimentation détermine donc directement l’efficacité de la conversion.
D’autres facteurs inhibent la Δ6-désaturase : l’excès d’alcool, le tabagisme, le vieillissement, le diabète de type 2, un apport insuffisant en cofacteurs enzymatiques (zinc, magnésium, vitamines B6 et B3). Inversement, un apport modéré en ALA avec un faible ratio oméga-6/oméga-3, combiné à des cofacteurs adéquats, optimise la conversion.
La conclusion pratique est double. D’une part, l’ALA végétal a une valeur propre indépendante de sa conversion : il exerce des effets anti-inflammatoires, cardioprotecteurs et hypotriglycéridémiants par lui-même. D’autre part, pour maximiser la production endogène d’EPA et de DHA, il ne suffit pas d’augmenter l’ALA — il faut simultanément réduire les oméga-6 (huiles de tournesol, maïs, soja) pour libérer la Δ6-désaturase.
IV. Le déséquilibre oméga-6/oméga-3
Le rapport oméga-6/oméga-3 de l’alimentation humaine a radicalement changé au cours du dernier siècle. Les études paléoanthropologiques et les analyses des régimes traditionnels de chasseurs-cueilleurs montrent un rapport historique compris entre 1:1 et 4:1 (Simopoulos, 2002). L’alimentation occidentale contemporaine affiche un rapport de 15:1 à 25:1 — un déséquilibre sans précédent dans l’histoire de l’espèce humaine.
Ce basculement a trois causes principales. Premièrement, l’introduction massive des huiles végétales riches en oméga-6 (tournesol, maïs, soja, pépins de raisin) dans l’alimentation industrielle à partir des années 1960. L’huile de tournesol contient 65 % d’acide linoléique (oméga-6) et moins de 0,5 % d’ALA (oméga-3) — un rapport ω-6/ω-3 de plus de 100:1. Deuxièmement, l’alimentation des animaux d’élevage aux tourteaux de soja et au maïs, qui a enrichi la viande, les œufs et les produits laitiers en oméga-6 au détriment des oméga-3 (un poulet nourri au maïs a un rapport ω-6/ω-3 de 20:1 ; un poulet élevé en plein air qui mange de l’herbe, des insectes et des graines sauvages a un rapport de 2:1). Troisièmement, la disparition des plantes sauvages de l’alimentation humaine — les feuilles vertes sauvages, riches en ALA chloroplastique, ont été remplacées par des salades cultivées sélectionnées pour leur tendreté et leur faible amertume, mais appauvries en oméga-3.
Les conséquences de ce déséquilibre sont considérables. L’excès d’oméga-6 favorise la production d’eicosanoïdes pro-inflammatoires (prostaglandines de la série 2, leucotriènes de la série 4, thromboxane A2) dérivés de l’acide arachidonique. Il sature la Δ6-désaturase et bloque la conversion de l’ALA en EPA et DHA. Il est associé épidémiologiquement à l’augmentation des maladies inflammatoires chroniques, des maladies cardiovasculaires, de l’obésité, du diabète de type 2, de la dépression et de certains cancers (Simopoulos, 2002, 2008).
Rétablir un rapport oméga-6/oméga-3 de 4:1 ou moins est un objectif nutritionnel majeur. Les plantes sauvages, dont le profil lipidique n’a pas été altéré par la sélection agronomique, offrent un levier puissant pour y parvenir.
V. Le pourpier : champion végétal des oméga-3
Le pourpier (Portulaca oleracea L., Portulacacées) est une plante annuelle rampante à tiges charnues rougeâtres, à feuilles succulentes spatulées vert brillant, qui pousse spontanément dans les jardins, les vignes, les terrains vagues et les fissures de trottoirs dans toute l’Europe méridionale et tempérée. Considéré comme une « mauvaise herbe » obstinée par les jardiniers, il est en réalité l’un des légumes-feuilles les plus nutritifs au monde.
Le pourpier détient un record remarquable : c’est le végétal feuillu le plus riche en acide alpha-linolénique. Ses feuilles contiennent 300 à 400 mg d’ALA pour 100 g de poids frais — quatre à cinq fois plus que les épinards cultivés, et dix fois plus que la laitue (Simopoulos et al., 1992 ; Uddin et al., 2014). Le profil lipidique du pourpier est exceptionnel : 60 % de ses acides gras totaux sont de l’ALA.
Plus remarquable encore : le pourpier est le seul légume-feuille connu à contenir de l’EPA (acide eicosapentaénoïque, 20:5 ω-3) — un oméga-3 à longue chaîne que l’on pensait absent du règne végétal terrestre, réservé aux algues et aux poissons. Les analyses montrent des teneurs de 1 à 2 mg d’EPA pour 100 g de feuilles fraîches (Simopoulos, 1992). La quantité est modeste, mais sa présence même dans une plante terrestre est une anomalie biochimique fascinante, qui témoigne de la capacité métabolique unique du pourpier à allonger et désaturer l’ALA au-delà de ce que font les autres plantes terrestres.
Le pourpier est aussi riche en vitamine E (α-tocophérol : 12 mg/100 g), en vitamine C (21 mg/100 g), en bêta-carotène (1,9 mg/100 g), en glutathion et en mélatonine. Ces antioxydants protègent ses oméga-3 de l’oxydation — une synergie remarquable que l’on ne retrouve pas dans les compléments alimentaires isolés.
En cuisine, le pourpier se consomme cru en salade (ses feuilles charnues ont une texture croquante et un goût légèrement acidulé et mucilagineux), en soupe froide, ou cuit rapidement à l’étouffée (2 à 3 minutes maximum — la cuisson prolongée détruit les oméga-3). En Grèce et en Turquie, il entre dans des dizaines de recettes traditionnelles. En France, il figurait dans les potagers jusqu’au XIXᵉ siècle avant de tomber dans l’oubli.
La récolte se fait de juin à octobre, en coupant les tiges à 2 cm du sol — la plante repousse en quelques jours. On évite les bords de route et les terrains traités. Un seul pied de pourpier, laissé à grainer, produira des centaines de plants l’année suivante — la plante se ressème abondamment.
VI. La cameline : une huile oubliée depuis l’âge du bronze
La cameline (Camelina sativa (L.) Crantz, Brassicacées) est une crucifère annuelle à petites fleurs jaune pâle et à silicules piriformes, autrefois largement cultivée en Europe pour son huile. Des graines de cameline ont été retrouvées dans des sites archéologiques datant de l’âge du bronze (2000 av. J.-C.) en Europe centrale. Jusqu’au XIXᵉ siècle, l’huile de cameline — appelée « or des Germains » — était une huile de table courante dans les pays nordiques et germaniques.
La cameline a été supplantée au XXᵉ siècle par le colza et le tournesol, plus productifs. Elle subsiste à l’état subspontané dans les champs de lin et de céréales, les jachères et les bords de chemins, surtout dans le centre et l’est de la France. Elle est en cours de redécouverte agronomique pour sa rusticité (résistance au froid, aux sols pauvres, faible besoin en intrants) et son profil lipidique exceptionnel.
L’huile de cameline contient 35 à 40 % d’ALA (acide alpha-linolénique) et seulement 15 à 20 % d’acide linoléique (oméga-6), soit un rapport ω-6/ω-3 de 0,5:1 — l’un des plus favorables du règne végétal. À titre de comparaison, l’huile de lin contient plus d’ALA (55 %), mais elle est extrêmement fragile et rancit en quelques semaines. L’avantage de l’huile de cameline est sa stabilité : elle contient naturellement de la vitamine E (γ-tocophérol) et des composés phénoliques qui la protègent de l’oxydation, lui permettant de se conserver plusieurs mois au réfrigérateur sans rancir.
L’huile de cameline s’utilise exclusivement à froid — en assaisonnement de salades, de légumes cuits, de soupes. Elle ne doit jamais être chauffée : la chaleur détruit les doubles liaisons de l’ALA et produit des composés d’oxydation toxiques. Son goût est légèrement herbacé, rappelant l’asperge et le sésame, avec une pointe d’amertume agréable.
Une cuillère à soupe (10 mL) d’huile de cameline fournit environ 3,5 g d’ALA — soit plus du double de l’apport recommandé (1,6 g/jour pour un homme adulte selon l’ANSES). C’est l’un des moyens les plus simples et les plus efficaces d’augmenter son apport en oméga-3 végétaux.
VII. Le noyer commun et ses cerneaux
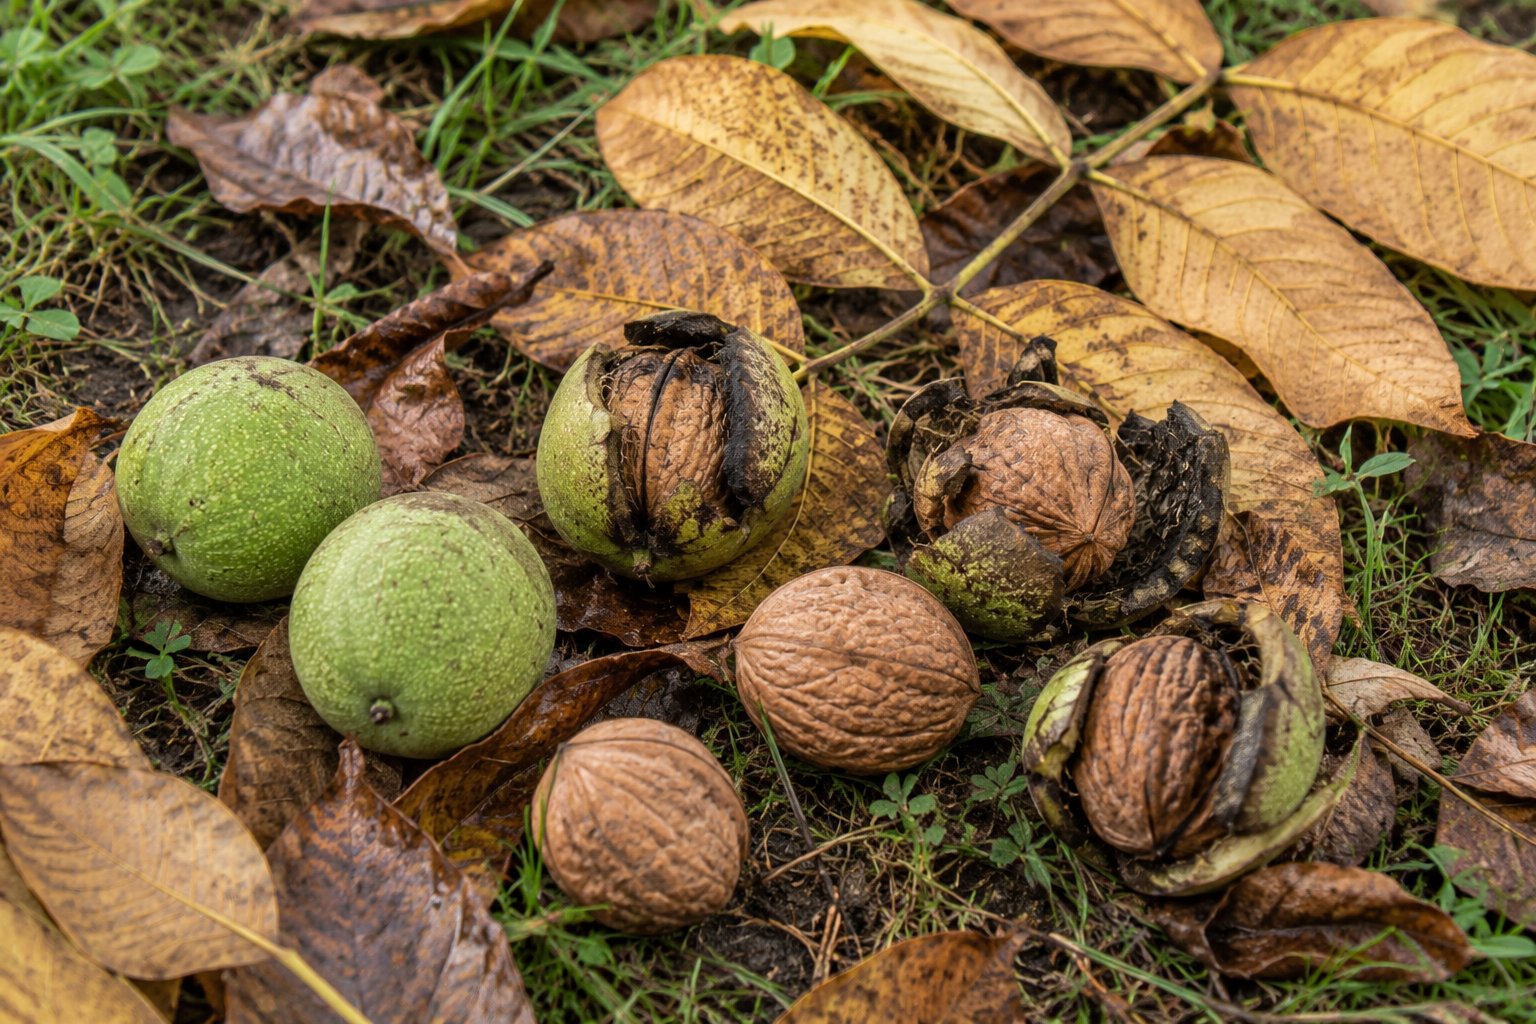
Le noyer commun (Juglans regia L., Juglandacées) est un arbre majestueux à feuilles composées pennées, originaire d’Asie centrale, naturalisé en Europe depuis l’Antiquité romaine. Ses fruits — les noix — sont la graine oléagineuse la plus riche en ALA parmi les fruits à coque couramment consommés en Europe.
Les cerneaux de noix contiennent 9 à 10 g d’ALA pour 100 g, soit 14 % de leur poids total en acide alpha-linolénique. Ils contiennent aussi 38 g d’acide linoléique (oméga-6) pour 100 g, ce qui donne un rapport ω-6/ω-3 de 4:1 — élevé mais nettement meilleur que la plupart des autres oléagineux (les amandes, les noisettes et les noix de cajou ne contiennent pratiquement pas d’ALA). Une poignée de noix (30 g, soit 6 à 8 cerneaux) fournit environ 2,7 g d’ALA — largement plus que l’apport quotidien recommandé.
Les noix contiennent aussi de l’acide ellagique (un polyphénol antioxydant), de la vitamine E (γ-tocophérol), du mélatonine et des phytostérols. Cette matrice antioxydante protège les oméga-3 de l’oxydation dans la noix elle-même — une protection que l’on perd lorsqu’on extrait l’huile.
L’étude PREDIMED (2013) et l’étude WAHA (2020) ont montré que la consommation régulière de 30 à 60 g de noix par jour réduisait significativement le cholestérol LDL, les triglycérides, les marqueurs inflammatoires (CRP, IL-6) et le risque cardiovasculaire global. L’effet est attribué conjointement à l’ALA, aux polyphénols et aux phytostérols.
En France, des noyers semi-sauvages ou ensauvagés poussent dans les haies, les vergers abandonnés et les lisières forestières, surtout dans le sud-ouest (Périgord, Quercy, Dauphiné). Les noix sauvages sont souvent plus petites que les variétés cultivées (Franquette, Mayette), mais leur cerneau est proportionnellement plus riche en lipides et en composés phénoliques — la sélection variétale ayant favorisé le rendement et la facilité de décorticage au détriment de la densité nutritionnelle.
Les noix se récoltent en septembre-octobre, lorsque le brou (l’enveloppe verte charnue) se fend et que la noix tombe au sol. Elles se conservent en coque dans un endroit sec et frais pendant 6 à 12 mois. Une fois décortiquées, les cerneaux rancissent en quelques semaines à température ambiante — les conserver au réfrigérateur ou au congélateur.
VIII. Le lin : de la fibre textile à la graine médicinale
Le lin cultivé (Linum usitatissimum L., Linacées) n’est pas une plante sauvage au sens strict, mais il se naturalise fréquemment en bordure de champs, dans les jachères et sur les talus calcaires, surtout dans le nord de la France et en Normandie. Plusieurs espèces de lin sauvage poussent en Europe — Linum perenne, L. catharticum, L. tenuifolium — mais leurs graines, minuscules, ne sont pas exploitables comme source alimentaire. Le lin cultivé naturalisé reste la seule source pratique.
Les graines de lin sont la source végétale la plus concentrée en ALA : elles contiennent 23 g d’ALA pour 100 g de graines entières, soit 55 % de leur huile. Une cuillère à soupe de graines de lin moulues (10 g) fournit 2,3 g d’ALA.
Le point critique est la mouture. Les graines de lin entières traversent le tube digestif sans être digérées — leur tégument est si dur que les enzymes digestives ne peuvent pas accéder aux lipides contenus à l’intérieur. Pour bénéficier de l’ALA, il faut moudre les graines juste avant de les consommer (au moulin à café ou au mortier). Les graines moulues s’oxydent très rapidement — ne pas les préparer à l’avance.
L’huile de lin, pressée à froid, est la plus riche en ALA de toutes les huiles végétales (55 %), mais elle est aussi la plus fragile. Elle rancit en 3 à 6 semaines même au réfrigérateur, développant une odeur de poisson caractéristique des oméga-3 oxydés. En France, la vente d’huile de lin alimentaire a été interdite de 1908 à 2006 précisément en raison de cette instabilité — elle était considérée comme impropre à la consommation. Elle est désormais autorisée à condition d’être conditionnée en petits volumes opaques et conservée au froid.
Les graines de lin contiennent aussi des lignanes (sécoisolaricirésinol diglucoside, SDG) — des phyto-œstrogènes antioxydants qui exercent un effet protecteur vis-à-vis des cancers hormono-dépendants (sein, prostate) dans les études épidémiologiques. Et elles sont riches en mucilages (fibres solubles) qui régulent le transit intestinal — ce qui fait du lin un aliment à la croisée des oméga-3 et des prébiotiques.
Infusion de graines de lin. Placer une cuillère à soupe de graines entières dans 250 mL d’eau froide. Laisser macérer 4 à 6 heures (ou toute la nuit). La solution devient visqueuse et gélatineuse — c’est le mucilage. Boire le tout, graines comprises, le matin à jeun. Cette préparation apporte à la fois les mucilages (prébiotiques) et une partie de l’ALA, mais pour un apport optimal en oméga-3, compléter avec des graines moulues sur les repas.
IX. Ortie, mouron, chénopode : les feuilles sauvages
Les feuilles vertes des plantes sauvages contiennent de l’ALA dans leurs chloroplastes. L’acide alpha-linolénique est en effet un composant structurel des membranes thylakoïdiennes — les membranes internes du chloroplaste où se déroule la photosynthèse. Plus une feuille est verte et photosynthétiquement active, plus elle contient d’ALA.
L’ortie (Urtica dioica) est une source intéressante. Ses feuilles contiennent 40 à 80 mg d’ALA pour 100 g de poids frais — modeste comparé au pourpier, mais significatif compte tenu des quantités que l’on peut récolter et consommer (soupe, pesto, légume cuit). Les graines d’ortie, récoltées en septembre, sont nettement plus riches : elles contiennent 15 à 20 % de lipides, dont une proportion significative d’ALA. Séchées et saupoudrées sur les salades ou le muesli, elles constituent un complément en oméga-3 méconnu.
Le mouron des oiseaux (Stellaria media, Caryophyllacées) est une petite plante rampante à feuilles ovales opposées et à minuscules fleurs blanches étoilées, omniprésente dans les jardins, les potagers et les champs cultivés. Ses feuilles contiennent 200 à 300 mg d’ALA pour 100 g de poids frais — un taux élevé pour un légume-feuille, qui le place juste derrière le pourpier. Le mouron se consomme cru en salade (goût doux rappelant le maïs jeune) ou cuit brièvement comme des épinards.
Le chénopode blanc (Chenopodium album, Amaranthacées) est un légume-feuille sauvage cosmopolite dont les jeunes pousses et les feuilles contiennent 30 à 50 mg d’ALA pour 100 g de poids frais. Consommé comme des épinards, il fournit un apport modéré mais régulier en oméga-3 tout au long de la saison de croissance (avril à octobre).
La mâche sauvage (Valerianella locusta) contient 50 à 80 mg d’ALA pour 100 g — plus que la mâche cultivée, dont la sélection variétale a réduit la densité en oméga-3 au profit de la productivité. La mâche sauvage pousse dans les champs, les vignes et les talus calcaires de novembre à avril.
Le point commun de toutes ces feuilles sauvages est que leur rapport ω-6/ω-3 est naturellement bas (entre 0,5:1 et 2:1), alors que les salades cultivées (laitue iceberg, batavia) affichent des rapports de 3:1 à 5:1. Intégrer régulièrement des feuilles sauvages dans les salades et les soupes est un moyen simple de rééquilibrer le ratio oméga-6/oméga-3 global de l’alimentation.
X. Oméga-3 et inflammation
L’inflammation est une réponse immunitaire normale et nécessaire face à une agression (infection, blessure, corps étranger). Elle devient pathologique lorsqu’elle se chronicise — c’est-à-dire lorsqu’elle persiste à bas bruit en l’absence d’agression, endommageant les tissus sains. L’inflammation chronique de bas grade est aujourd’hui reconnue comme le dénominateur commun des maladies de civilisation : maladies cardiovasculaires, diabète de type 2, obésité, dépression, maladies neurodégénératives, cancers.
Les oméga-3 et les oméga-6 sont les précurseurs de deux familles antagonistes de médiateurs lipidiques (eicosanoïdes et docosanoïdes) qui contrôlent l’intensité et la durée de la réponse inflammatoire.
L’acide arachidonique (AA, 20:4 ω-6), dérivé de l’acide linoléique, est le précurseur des prostaglandines pro-inflammatoires (PGE2), des thromboxanes pro-agrégants (TXA2) et des leucotriènes bronchoconstricteurs et chimiotactiques (LTB4). Ces molécules amplifient l’inflammation, la douleur, la fièvre et la coagulation.
L’EPA (20:5 ω-3) entre en compétition avec l’acide arachidonique pour les mêmes enzymes (cyclo-oxygénases COX, lipo-oxygénases LOX). Quand l’EPA est converti par ces enzymes, il produit des prostaglandines de la série 3 (PGE3), des thromboxanes de la série 3 (TXA3) et des leucotriènes de la série 5 (LTB5) — qui sont tous beaucoup moins inflammatoires que leurs homologues de la série 2 et 4.
Plus récemment, on a découvert que l’EPA et le DHA sont les précurseurs de familles entièrement nouvelles de médiateurs — les résolvines, les protectines et les marésines — qui ne se contentent pas de réduire l’inflammation mais orchestrent activement sa résolution : nettoyage des neutrophiles par les macrophages, régénération tissulaire, retour à l’homéostasie (Serhan, 2014).
L’ALA végétal exerce aussi un effet anti-inflammatoire propre, indépendant de sa conversion en EPA. Les études cliniques montrent qu’un apport élevé en ALA (3 à 6 g/jour) réduit les marqueurs inflammatoires circulants — CRP (protéine C-réactive), IL-6 (interleukine-6), TNF-α (facteur de nécrose tumorale alpha) — chez les sujets à risque cardiovasculaire (Pan et al., 2012).
XI. Protection cardiovasculaire
La protection cardiovasculaire est l’effet le mieux documenté des oméga-3. Les études épidémiologiques pionnières (Seven Countries Study, études inuites du Groenland, cohorte DART, Lyon Diet Heart Study) ont établi dès les années 1970-1990 une association forte entre la consommation d’oméga-3 et la réduction du risque cardiovasculaire.
L’étude Lyon Diet Heart Study (de Lorgeril et al., 1994, 1999) est particulièrement pertinente pour notre sujet : elle a montré qu’un régime de type méditerranéen enrichi en ALA (par de la margarine à base d’huile de colza, riche en ALA) réduisait de 70 % la récidive d’infarctus du myocarde et la mortalité cardiaque — un résultat spectaculaire obtenu avec de l’ALA végétal, sans supplémentation en EPA/DHA marin. Cette étude a démontré que l’ALA végétal possède un potentiel cardioprotecteur propre, indépendant de sa conversion en dérivés à longue chaîne.
Les mécanismes cardioprotecteurs des oméga-3 sont multiples. Ils réduisent les triglycérides sanguins (l’EPA et le DHA inhibent la synthèse hépatique des VLDL ; l’ALA a un effet hypotriglycéridémiant modéré). Ils exercent un effet anti-arythmique (stabilisation des canaux ioniques des cardiomyocytes, réduction de l’excitabilité électrique). Ils améliorent la fonction endothéliale (augmentation de la production de monoxyde d’azote NO, vasodilatation). Ils réduisent l’agrégation plaquettaire (compétition de l’EPA avec l’acide arachidonique pour la thromboxane synthase). Ils réduisent la pression artérielle (effet modeste mais significatif : –2 à –3 mmHg pour la systolique).
La méta-analyse de Pan et al. (2012), portant sur 27 études prospectives et 251 049 participants, a montré qu’un apport élevé en ALA végétal était associé à une réduction de 14 % du risque de maladie coronarienne et de 20 % du risque de coronaropathie fatale. Cet effet persiste après ajustement pour les autres facteurs de risque.
XII. Cerveau, cognition et humeur
Le cerveau est l’organe le plus riche en lipides après le tissu adipeux : 60 % de sa masse sèche est constituée de lipides, et les acides gras polyinsaturés représentent 35 % des acides gras cérébraux. Le DHA à lui seul constitue 15 à 20 % des acides gras du cortex cérébral et jusqu’à 50 % des acides gras des membranes des photorécepteurs rétiniens.
Le DHA n’est pas un simple constituant structurel passif : il module la fluidité membranaire des neurones, ce qui influence directement la vitesse de transmission synaptique, le fonctionnement des récepteurs membranaires (récepteurs de la sérotonine, de la dopamine, du GABA) et la signalisation intracellulaire. Un déficit en DHA réduit la fluidité membranaire, ralentit la neurotransmission et altère la plasticité synaptique.
Les études épidémiologiques montrent une association entre un faible statut en oméga-3 (ALA, EPA, DHA) et un risque accru de dépression, de troubles anxieux, de déclin cognitif lié à l’âge et de maladie d’Alzheimer (Grosso et al., 2014 ; Cunnane et al., 2009). La méta-analyse de Liao et al. (2019), portant sur 26 essais contrôlés randomisés, a conclu que la supplémentation en oméga-3 (surtout EPA) avait un effet antidépresseur significatif, comparable à celui d’un antidépresseur de première ligne chez les patients souffrant de dépression caractérisée.
L’ALA végétal contribue à la santé cérébrale par deux voies : sa conversion partielle en DHA (qui, même à 1-5 %, assure un apport de maintenance significatif sur le long terme) et ses propres effets anti-inflammatoires sur la neuroinflammation (réduction de l’activation microgliale, diminution de la production de cytokines pro-inflammatoires dans le système nerveux central).
Les plantes sauvages riches en ALA (pourpier, mouron, graines de lin, noix, huile de cameline) constituent un apport quotidien de fond pour le cerveau — non pas comme substitut du DHA marin en cas de déficit avéré, mais comme socle nutritionnel durable que l’alimentation moderne ne fournit plus en quantité suffisante.
XIII. Oxydation des oméga-3 et antioxydants naturels
Les acides gras polyinsaturés sont par nature chimiquement instables. Chaque double liaison C=C est un site vulnérable à l’attaque par les radicaux libres (espèces réactives de l’oxygène, ROS). Plus un acide gras possède de doubles liaisons, plus il est sensible à l’oxydation : l’ALA (3 doubles liaisons) s’oxyde deux fois plus vite que l’acide linoléique (2 doubles liaisons), et le DHA (6 doubles liaisons) s’oxyde vingt fois plus vite.
L’oxydation des oméga-3 est un problème majeur et sous-estimé. Les produits d’oxydation lipidique — aldéhydes (malondialdéhyde, 4-hydroxynonénal), peroxydes, époxydes — sont cytotoxiques, pro-inflammatoires et potentiellement mutagènes. Des oméga-3 oxydés sont non seulement inutiles mais potentiellement nocifs. C’est la raison pour laquelle l’huile de lin rance sent le poisson — et la raison pour laquelle la qualité des compléments alimentaires en oméga-3 (gélules d’huile de poisson) est souvent médiocre : jusqu’à 50 % des produits testés dans certaines études présentent des niveaux d’oxydation supérieurs aux normes (Albert et al., 2015).
Les plantes ont résolu ce problème depuis des millions d’années. Elles stockent leurs oméga-3 dans une matrice antioxydante qui les protège de l’oxydation. Le pourpier associe ses oméga-3 à de la vitamine E, de la vitamine C, du bêta-carotène et du glutathion. Les noix contiennent de l’acide ellagique et du γ-tocophérol. Les graines de lin contiennent des lignanes antioxydantes. L’huile de cameline contient du γ-tocophérol et des composés phénoliques.
C’est un argument fort en faveur de la consommation d’oméga-3 sous forme alimentaire plutôt que sous forme de compléments isolés. La noix entière, la feuille de pourpier, la graine de lin fraîchement moulue fournissent les oméga-3 et leurs protecteurs ensemble — exactement comme la nature les a conçus.
En pratique, pour préserver les oméga-3 alimentaires : ne jamais chauffer les huiles riches en ALA (lin, cameline, noix), les conserver au réfrigérateur dans des contenants opaques, les consommer rapidement après ouverture, et moudre les graines de lin juste avant de les consommer.
XIV. Récolte et conservation
Le pourpier se récolte de juin à octobre. Couper les tiges charnues à 2-3 cm du sol avec des ciseaux ou un couteau propre. La plante repousse en 5 à 7 jours — on peut pratiquer 4 à 5 coupes par saison sur le même pied. Récolter le matin, après l’évaporation de la rosée. Consommer le jour même ou dans les 2 jours au réfrigérateur dans un linge humide. Le pourpier ne se sèche pas (perte des oméga-3 par oxydation) mais se congèle correctement blanchi 30 secondes.
Le mouron des oiseaux se récolte toute l’année sauf en cas de gel prolongé. Couper les touffes à la base avec des ciseaux. Consommer le jour même ou le lendemain — il flétrit vite. Ne pas confondre avec le mouron rouge (Anagallis arvensis), toxique, dont les fleurs sont rouge-orangé (celles du mouron des oiseaux sont blanches) et les feuilles sessiles (celles du mouron des oiseaux sont pétiolées).
Les noix se récoltent en septembre-octobre lorsqu’elles tombent au sol naturellement. Retirer le brou (qui tache les mains — porter des gants), laver les coques, les faire sécher 2 à 3 semaines dans un endroit sec et ventilé. En coque, elles se conservent 6 à 12 mois dans un endroit frais et sec. Les cerneaux se conservent au réfrigérateur (3 mois) ou au congélateur (12 mois).
Les graines de lin entières se conservent 12 mois dans un bocal hermétique à température ambiante et à l’abri de la lumière. Moulues, elles doivent être consommées dans les 24 à 48 heures ou conservées au congélateur (1 mois). L’huile de lin se conserve au réfrigérateur 6 à 8 semaines maximum après ouverture.
L’huile de cameline se conserve 3 à 6 mois au réfrigérateur après ouverture, grâce à ses antioxydants naturels. La conserver dans une bouteille en verre teinté, bien rebouchée. Jeter au moindre signe de rancissement (odeur de poisson ou de peinture).
Les graines d’ortie se récoltent en septembre-octobre, lorsque les épis femelles sont mûrs et brunissent. Couper les tiges portant les épis, les suspendre tête en bas dans un endroit sec et ventilé pour le séchage. Égrener une fois sèches. Conserver dans un bocal hermétique à l’abri de la lumière — 6 à 12 mois.
XV. Préparations culinaires
La règle d’or de la cuisine des oméga-3 végétaux est simple : pas de cuisson des huiles riches en ALA. Les oméga-3 s’oxydent et se dégradent à la chaleur. Les plantes fraîches peuvent être cuites brièvement (blanching, étouffée), mais les huiles et les graines moulues ne doivent être ajoutées qu’après la cuisson, au moment de servir.
Salade de pourpier à la grecque. 200 g de pourpier frais, lavé, grossièrement coupé. 1 tomate coupée en dés. 1 petit oignon rouge émincé. 50 g de feta émiettée. Assaisonner d’huile de cameline (1 cuillère à soupe), de jus de citron, de sel et d’origan frais. Le pourpier cru fournit le maximum d’ALA et d’EPA.
Pesto de mouron des oiseaux. 100 g de mouron frais, 30 g de cerneaux de noix, 30 g de parmesan râpé, 1 gousse d’ail, 80 mL d’huile d’olive (pour la stabilité — l’huile d’olive mono-insaturée résiste mieux au mixage que les huiles polyinsaturées). Mixer le tout. Ajouter 1 cuillère à soupe d’huile de cameline après le mixage. Servir sur des pâtes tièdes, du pain grillé ou des légumes.
Soupe d’ortie aux graines de lin. Faire revenir un oignon émincé dans un peu de beurre. Ajouter 300 g de jeunes feuilles d’ortie (gantées pour la récolte, elles perdent leur pouvoir urticant à la cuisson). Couvrir d’eau froide, porter à frémissement, cuire 5 minutes. Mixer. Hors du feu, ajouter 1 cuillère à soupe de graines de lin moulues et 1 cuillère à soupe d’huile de cameline. Servir immédiatement.
Muesli oméga-3. 50 g de flocons d’avoine, 10 g de graines de lin moulues (au moment de servir), 6 cerneaux de noix grossièrement concassés, 1 cuillère à soupe de graines d’ortie séchées, 1 pomme râpée, lait végétal ou yaourt. Ce muesli fournit environ 4 g d’ALA — deux fois l’apport recommandé — en un seul repas.
Vinaigrette oméga-3. Mélanger 2 cuillères à soupe d’huile de cameline, 1 cuillère à soupe d’huile d’olive, 1 cuillère à soupe de vinaigre de cidre, 1 cuillère à café de moutarde, sel, poivre. Cette vinaigrette fournit environ 7 g d’ALA pour 3 cuillères à soupe — un assaisonnement quotidien qui suffit à lui seul à couvrir les besoins.
XVI. Doses et équivalences pratiques
L’apport nutritionnel recommandé en ALA est de 1 % de l’apport énergétique total, soit environ 2 à 2,5 g/jour pour un adulte consommant 2000 kcal (ANSES, 2011). L’EFSA fixe une recommandation minimale de 0,5 % de l’énergie. L’apport optimal, tenant compte des données épidémiologiques sur la protection cardiovasculaire, se situe probablement entre 2 et 4 g/jour.
En termes d’aliments, voici les équivalences pour atteindre 2 g d’ALA :
— 1 cuillère à soupe d’huile de cameline (10 mL) : 3,5 g d’ALA
— 1 cuillère à soupe d’huile de lin (10 mL) : 5,5 g d’ALA
— 1 cuillère à soupe de graines de lin moulues (10 g) : 2,3 g d’ALA
— 6 à 8 cerneaux de noix (30 g) : 2,7 g d’ALA
— 200 g de pourpier frais : 0,7 g d’ALA (+ traces d’EPA)
— 100 g de mouron des oiseaux frais : 0,25 g d’ALA
En pratique, la stratégie la plus simple et la plus efficace est de combiner une cuillère à soupe d’huile de cameline (ou de lin) en assaisonnement quotidien avec une poignée de noix en collation. Cette combinaison fournit 6 g d’ALA par jour — largement au-dessus des recommandations — et ne demande aucun effort culinaire particulier.
Pour les feuilles sauvages (pourpier, mouron, ortie), les quantités d’ALA sont plus modestes par portion, mais leur intérêt est double : elles contribuent au rééquilibrage du ratio ω-6/ω-3 (leur ratio propre est très bas) et elles fournissent des micronutriments (vitamines, minéraux, polyphénols, antioxydants) que les huiles seules n’apportent pas.
Le rapport ω-6/ω-3 de l’alimentation globale importe autant que la quantité absolue d’oméga-3. Réduire les oméga-6 (remplacer l’huile de tournesol par de l’huile d’olive, éviter les aliments ultra-transformés, choisir des œufs de poules élevées en plein air) est aussi efficace que d’augmenter les oméga-3. L’objectif est un rapport de 4:1 ou moins.
XVII. Précautions et contre-indications
Les oméga-3, y compris l’ALA végétal, possèdent un effet antiagrégant plaquettaire. À doses alimentaires normales (2 à 6 g d’ALA/jour), cet effet est modéré et bénéfique. Cependant, en cas de traitement par anticoagulants (warfarine, acénocoumarol, héparine) ou antiagrégants plaquettaires (aspirine, clopidogrel), des apports très élevés en oméga-3 (>6 g/jour d’ALA ou >3 g/jour d’EPA+DHA) pourraient théoriquement augmenter le risque de saignement. Informer le médecin traitant en cas de consommation importante et régulière.
Les graines de lin contiennent des glycosides cyanogénétiques (linamarine, linustatine, néolinustatine) qui libèrent de petites quantités d’acide cyanhydrique lors de la digestion. Aux doses alimentaires habituelles (1 à 2 cuillères à soupe par jour), cette quantité est négligeable et détoxifiée par le foie. Des doses excessives (>50 g/jour) pourraient théoriquement poser problème — mais personne ne mange 50 g de graines de lin par jour.
Les graines de lin sont aussi riches en phyto-œstrogènes (lignanes). Par précaution, les femmes ayant des antécédents de cancer du sein hormono-dépendant doivent consulter leur médecin avant une consommation régulière et importante.
L’huile de cameline et l’huile de lin rancissent rapidement. Consommer une huile rance (odeur de poisson, de peinture ou d’herbe sèche) est nocif — les peroxydes et les aldéhydes produits par l’oxydation sont toxiques pour le foie et pro-inflammatoires. Jeter toute huile suspecte sans hésitation.
Le pourpier contient de l’acide oxalique (1,3 g/100 g — comparable aux épinards). Les personnes sujettes aux calculs rénaux d’oxalate de calcium doivent limiter leur consommation ou consommer le pourpier cuit (la cuisson réduit la teneur en oxalates de 30 à 50 % si l’eau de cuisson est jetée).
Le mouron des oiseaux doit être formellement distingué du mouron rouge (Anagallis arvensis), qui est toxique. Critères de distinction : le mouron des oiseaux a des fleurs blanches (pas rouges), des feuilles pétiolées (pas sessiles), une ligne de poils alternant de face sur la tige (pas de poils uniformes), et des pétales profondément bifides (pas entiers).
Comme pour toute cueillette sauvage : récolter loin des routes, des champs traités et des zones industrielles. Bien laver. Identifier avec certitude avant de consommer.
XVIII. Synthèse
Les oméga-3 végétaux, et en premier lieu l’acide alpha-linolénique, sont des nutriments essentiels que l’alimentation moderne ne fournit plus en quantité suffisante. Le déséquilibre oméga-6/oméga-3 de l’alimentation contemporaine — un rapport de 15:1 à 25:1, contre 1:1 à 4:1 dans les régimes ancestraux — est impliqué dans l’épidémie de maladies inflammatoires chroniques, cardiovasculaires et métaboliques.
Les plantes sauvages européennes offrent des sources d’ALA remarquables et sous-exploitées. Le pourpier, champion végétal avec 400 mg d’ALA et des traces d’EPA pour 100 g de feuilles, mériterait de retrouver sa place dans les potagers et les assiettes. L’huile de cameline, avec 35 à 40 % d’ALA et une bonne stabilité, est l’une des meilleures huiles oméga-3 pour l’usage quotidien. Les cerneaux de noix, avec 2,7 g d’ALA par poignée, sont l’en-cas idéal. Les graines de lin moulues, les graines d’ortie, le mouron des oiseaux complètent cet arsenal végétal.
Le rééquilibrage du ratio oméga-6/oméga-3 ne demande pas de supplémentation coûteuse. Il demande deux gestes simples : réduire les sources d’oméga-6 (remplacer l’huile de tournesol par l’huile d’olive, limiter les aliments ultra-transformés) et introduire quotidiennement une source concentrée d’ALA (une cuillère d’huile de cameline, une poignée de noix, des graines de lin moulues) et des feuilles sauvages riches en oméga-3 (pourpier, mouron). Ce sont des gestes accessibles, peu coûteux et soutenus par des décennies de recherche — de la Lyon Diet Heart Study aux méta-analyses les plus récentes.
L’ALA végétal ne remplace pas le DHA marin pour les personnes en déficit avéré (végétaliens stricts, personnes âgées avec malabsorption, femmes enceintes). Mais pour la population générale, un apport quotidien de 2 à 4 g d’ALA, dans le cadre d’un ratio ω-6/ω-3 rééquilibré, assure un socle protecteur cardiovasculaire, anti-inflammatoire et neuroprotecteur dont les bénéfices sont solidement démontrés.
Bibliographie
- Simopoulos A.P. et al. (1992). « Purslane: a terrestrial source of omega-3 fatty acids ». The New England Journal of Medicine, 325(7), 543.
- Simopoulos A.P. (2002). « The importance of the ratio of omega-6/omega-3 essential fatty acids ». Biomedicine & Pharmacotherapy, 56(8), 365-379.
- Simopoulos A.P. (2008). « The importance of the omega-6/omega-3 fatty acid ratio in cardiovascular disease and other chronic diseases ». Experimental Biology and Medicine, 233(6), 674-688.
- Burdge G.C. & Calder P.C. (2005). « Conversion of α-linolenic acid to longer-chain polyunsaturated fatty acids in human adults ». Reproduction Nutrition Development, 45(5), 581-597.
- Plourde M. & Cunnane S.C. (2007). « Extremely limited synthesis of long chain polyunsaturates in adults: implications for their dietary essentiality and use as supplements ». Applied Physiology, Nutrition, and Metabolism, 32(4), 619-634.
- De Lorgeril M. et al. (1994). « Mediterranean alpha-linolenic acid-rich diet in secondary prevention of coronary heart disease ». The Lancet, 343(8911), 1454-1459.
- De Lorgeril M. et al. (1999). « Mediterranean diet, traditional risk factors, and the rate of cardiovascular complications after myocardial infarction: final report of the Lyon Diet Heart Study ». Circulation, 99(6), 779-785.
- Pan A. et al. (2012). « α-Linolenic acid and risk of cardiovascular disease: a systematic review and meta-analysis ». The American Journal of Clinical Nutrition, 96(6), 1262-1273.
- Serhan C.N. (2014). « Pro-resolving lipid mediators are leads for resolution physiology ». Nature, 510(7503), 92-101.
- Grosso G. et al. (2014). « Omega-3 fatty acids and depression: scientific evidence and biological mechanisms ». Oxidative Medicine and Cellular Longevity, 2014, 313570.
- Liao Y. et al. (2019). « Efficacy of omega-3 PUFAs in depression: a meta-analysis ». Translational Psychiatry, 9(1), 190.
- Cunnane S.C. et al. (2009). « Fish, docosahexaenoic acid and Alzheimer’s disease ». Progress in Lipid Research, 48(5), 239-256.
- Albert B.B. et al. (2015). « Fish oil supplements in New Zealand are highly oxidised and do not meet label content of n-3 PUFA ». Scientific Reports, 5, 7928.
- Uddin M.K. et al. (2014). « Purslane weed (Portulaca oleracea): a prospective plant source of nutrition, omega-3 fatty acid, and antioxidant attributes ». The Scientific World Journal, 2014, 951019.
- ANSES (2011). « Actualisation des apports nutritionnels conseillés pour les acides gras ». Rapport du groupe de travail ANSES.
Les informations présentées dans cet article sont fournies à titre éducatif et ne remplacent en aucun cas l’avis d’un professionnel de santé. L’auteur décline toute responsabilité quant à l’usage qui pourrait en être fait. Consultez un médecin ou un pharmacien avant toute utilisation de plantes à des fins thérapeutiques.