Il existe sur Terre un processus si fondamental que, sans lui, ni les forêts, ni les prairies, ni les jardins, ni les êtres humains n’existeraient. Ce processus, c’est la photosynthèse — la capacité qu’ont les plantes, les algues et certaines bactéries de capter l’énergie d’un photon de lumière et de la convertir en énergie chimique stockée dans une molécule de sucre. Chaque feuille est une centrale solaire. Chaque chloroplaste est un réacteur biochimique. Et chaque molécule de glucose produite est le point de départ d’une cascade métabolique qui aboutit, entre autres, à la synthèse des principes actifs qui intéressent le phytothérapeute.
Cet article décrypte la photosynthèse dans sa totalité — de la physique du photon jusqu’à la molécule de sucre —, puis explore les trois grandes stratégies photosynthétiques du monde végétal (C3, C4, CAM) et leur influence directe sur la chimie médicinale des plantes.
La lumière — ce que la plante perçoit réellement
La lumière visible n’est qu’une infime portion du spectre électromagnétique. Elle s’étend de 380 nanomètres (violet) à 750 nanomètres (rouge sombre), soit exactement la fenêtre que notre œil — et les pigments végétaux — sont capables de percevoir. Mais la lumière n’est pas un flux continu : elle se comporte comme un train de particules appelées photons, chacun portant une quantité d’énergie inversement proportionnelle à sa longueur d’onde. Un photon bleu (450 nm) est plus énergétique qu’un photon rouge (680 nm).
Le spectre d’absorption des feuilles
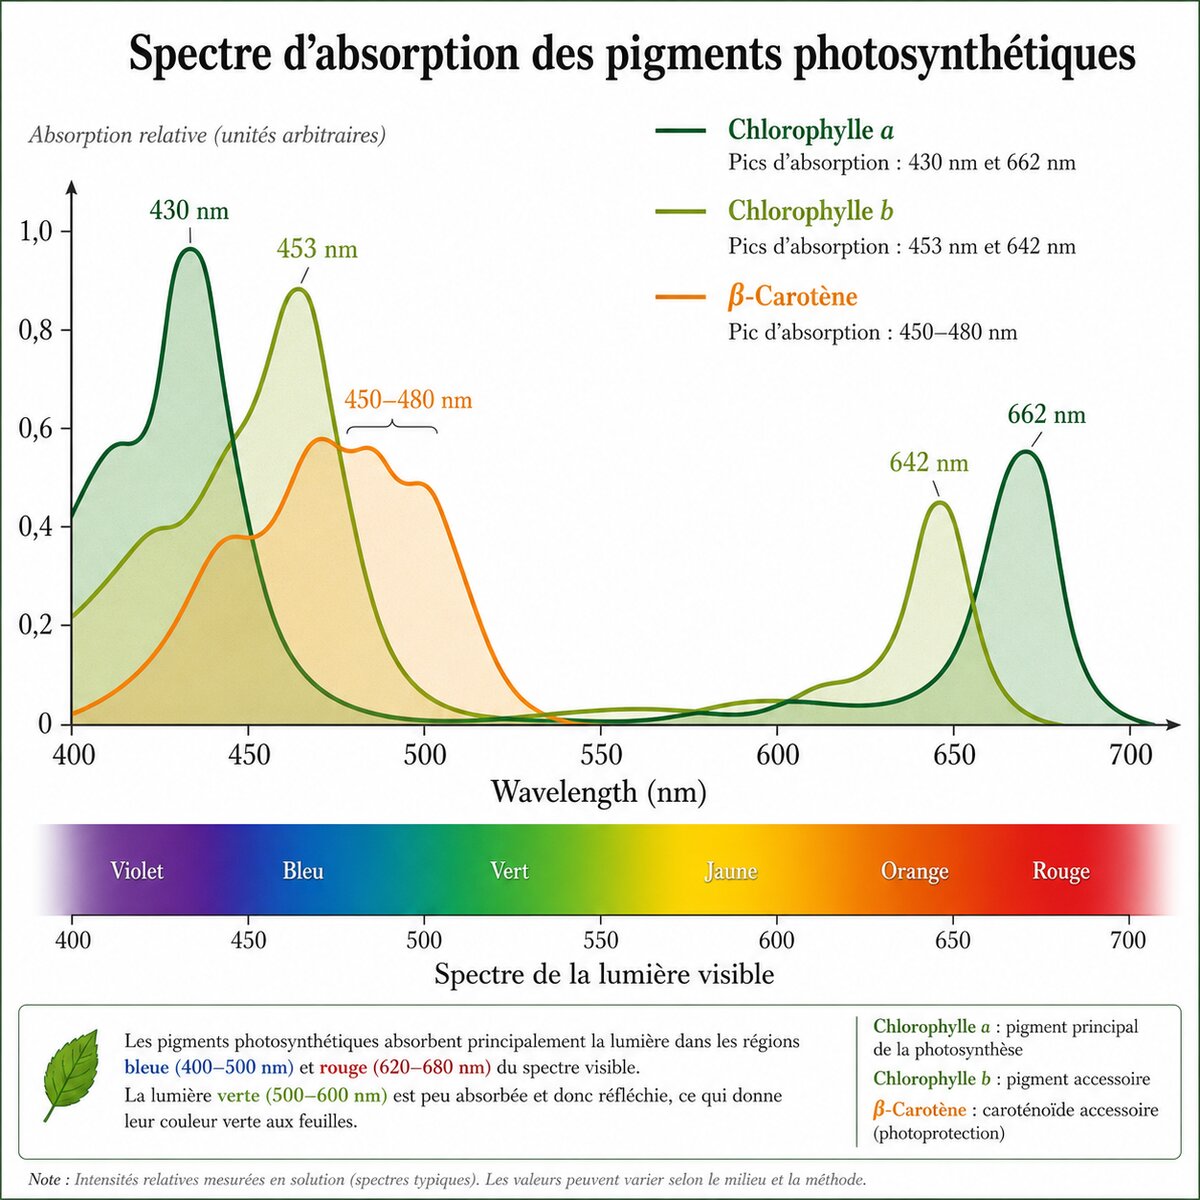
Lorsqu’un rayon de lumière blanche frappe une feuille, les pigments présents dans les chloroplastes absorbent certaines longueurs d’onde et réfléchissent les autres. La chlorophylle a absorbe principalement dans le bleu (430 nm) et le rouge (662 nm). La chlorophylle b absorbe dans le bleu (453 nm) et le rouge-orangé (642 nm). Les longueurs d’onde vertes (500-565 nm), peu absorbées, sont réfléchies — c’est pourquoi les feuilles nous paraissent vertes.
Ce spectre d’absorption n’est pas un détail académique. Il explique pourquoi les plantes cultivées sous serre avec un éclairage LED rouge et bleu poussent plus vite qu’avec une lumière verte : les LED fournissent exactement les photons que les chlorophylles absorbent le mieux. Et il explique aussi pourquoi les plantes de sous-bois, qui reçoivent une lumière filtrée appauvrie en rouge et en bleu, développent souvent des feuilles plus larges et plus minces — pour maximiser la surface de captation.
L’énergie lumineuse disponible
Un mètre carré de sol éclairé par le soleil à midi reçoit environ 1 000 watts d’énergie lumineuse. De cette énergie, seuls 43 % se situent dans la gamme des longueurs d’onde photosynthétiquement actives (400-700 nm), appelée PAR (Photosynthetically Active Radiation). Les plantes les plus efficaces ne convertissent que 4 à 6 % de cette énergie en biomasse. Cela peut sembler modeste, mais c’est suffisant pour produire chaque année environ 120 milliards de tonnes de matière organique sur la planète — l’intégralité de la chaîne alimentaire terrestre repose sur ce rendement.
Les pigments photosynthétiques — capter le bon photon
Les pigments sont les molécules qui absorbent la lumière. Ils sont enchâssés dans les membranes des thylakoïdes à l’intérieur des chloroplastes, organisés en complexes protéiques appelés antennes collectrices (ou light-harvesting complexes, LHC). Chaque antenne contient 200 à 300 molécules de pigments, et fonctionne comme un entonnoir énergétique : les photons captés en périphérie transmettent leur énergie de pigment en pigment par résonance, jusqu’à atteindre un pigment spécial situé au centre du complexe, appelé centre réactionnel, où l’énergie lumineuse sera convertie en énergie chimique.
La chlorophylle — la molécule reine
La chlorophylle est un porphyrine magnésienne : un anneau de quatre cycles pyrrole entourant un atome de magnésium central, prolongé par une longue queue hydrophobe (chaîne phytol) qui l’ancre dans la membrane du thylakoïde. C’est le système de doubles liaisons conjuguées de l’anneau porphyrique qui absorbe les photons — les électrons délocalisés dans ces liaisons peuvent « sauter » à un niveau d’énergie supérieur lorsqu’un photon de la bonne longueur d’onde les frappe.
Il existe deux formes principales chez les plantes terrestres :
— la chlorophylle a (bleu-vert), présente dans tous les centres réactionnels, indispensable à la photosynthèse ;
— la chlorophylle b (jaune-vert), pigment accessoire qui élargit le spectre d’absorption et transfère son énergie à la chlorophylle a.
Le rapport chlorophylle a/b varie selon l’environnement lumineux. Les plantes d’ombre (sciaphiles) possèdent davantage de chlorophylle b, ce qui leur permet de capter plus efficacement les rares photons bleus qui filtrent à travers la canopée. Les plantes de plein soleil (héliophiles) ont un rapport a/b plus élevé.
Les caroténoïdes — protection et complément
Les caroténoïdes sont des pigments terpénoïdes (isoprénoïdes à 40 carbones) de couleur jaune, orange ou rouge. Les plus importants sont le β-carotène, la lutéine et la zéaxanthine. Ils remplissent deux fonctions dans la photosynthèse :
— captation lumineuse accessoire : les caroténoïdes absorbent dans le bleu-vert (400-500 nm) et transmettent l’énergie à la chlorophylle, comblant le « trou vert » du spectre d’absorption ;
— photoprotection : lorsqu’un excès de lumière produit des formes réactives de l’oxygène (radicaux libres) susceptibles d’endommager les membranes, les caroténoïdes dissipent cette énergie excédentaire sous forme de chaleur. C’est le cycle des xanthophylles (violaxanthine → anthéraxanthine → zéaxanthine) qui assure cette protection. Sans lui, une feuille exposée à un plein soleil après une période d’ombre subirait des dommages oxydatifs irréversibles — ce que l’on observe parfois sous forme de « coups de soleil » sur les plantes transplantées trop brusquement.
Les caroténoïdes sont aussi les précurseurs de la vitamine A chez les animaux (le β-carotène est clivé en deux molécules de rétinal dans l’intestin), ce qui fait des plantes riches en caroténoïdes des aliments essentiels pour la vision et l’immunité.
Les anthocyanes — pigments vacuolaires, pas chloroplastiques
Il faut distinguer les anthocyanes des pigments photosynthétiques. Les anthocyanes ne se trouvent pas dans les chloroplastes mais dans la vacuole, et ne participent pas directement à la photosynthèse. Elles jouent un rôle de filtre UV et de protection contre l’excès de lumière, en absorbant les photons bleus et verts avant qu’ils n’atteignent les chloroplastes. Certaines plantes alpines ou arctiques, exposées à des rayonnements UV intenses, accumulent des quantités considérables d’anthocyanes, ce qui donne à leurs feuilles une teinte rouge ou violette caractéristique.
La phase claire — de l’eau à l’énergie
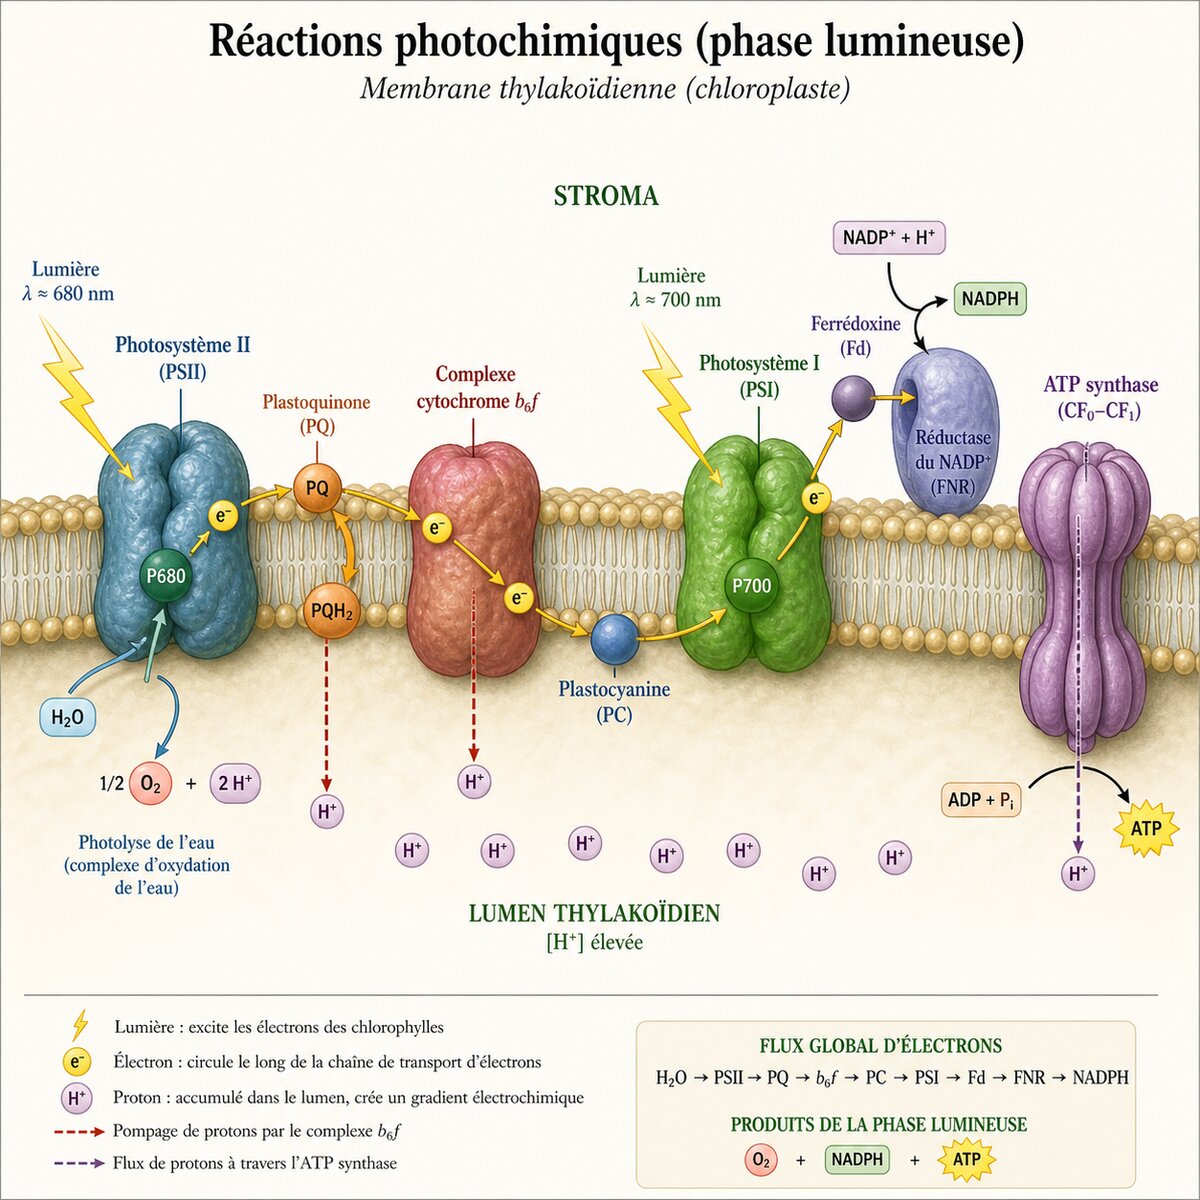
La première étape de la photosynthèse se déroule dans les membranes des thylakoïdes. On l’appelle « phase claire » (ou réactions lumineuses) parce qu’elle nécessite directement la lumière. Son objectif : convertir l’énergie des photons en deux molécules énergétiques — l’ATP et le NADPH — qui alimenteront ensuite le cycle de Calvin.
Le photosystème II — la machine à casser l’eau
Le processus commence au photosystème II (PSII). Lorsqu’un photon frappe le centre réactionnel du PSII (un dimère de chlorophylle a appelé P680, car il absorbe optimalement à 680 nm), un électron est éjecté à un niveau d’énergie supérieur et capté par un accepteur primaire. Le P680, privé de cet électron, est un oxydant si puissant qu’il est capable d’arracher des électrons à l’eau.
C’est la réaction la plus remarquable de toute la biochimie : la photolyse de l’eau. Un complexe enzymatique contenant quatre atomes de manganèse (le complexe de dégagement d’oxygène, ou OEC) catalyse l’oxydation de deux molécules d’eau en quatre protons (H⁺), quatre électrons et une molécule d’oxygène gazeux (O₂). Tout l’oxygène que nous respirons — chaque bouffée d’air que nous inhalons — provient de cette réaction, répétée des billions de fois chaque seconde dans les feuilles du monde entier.
La chaîne de transport d’électrons
L’électron éjecté du PSII ne reste pas en place. Il descend une cascade de transporteurs protéiques enchâssés dans la membrane du thylakoïde :
— la phéophytine (premier accepteur) ;
— les plastoquinones (QA et QB), qui navettent dans la membrane comme des taxis moléculaires ;
— le complexe cytochrome b6f, qui utilise l’énergie de l’électron pour pomper des protons (H⁺) depuis le stroma vers la lumière du thylakoïde, créant un gradient de concentration ;
— la plastocyanine, une petite protéine contenant un atome de cuivre, qui transporte l’électron jusqu’au photosystème I.
À chaque étape, l’électron perd un peu d’énergie, et cette énergie est utilisée pour pomper des protons à travers la membrane, comme l’eau d’un barrage que l’on monte à un niveau supérieur.
Le photosystème I — le deuxième coup de pouce
L’électron arrive au photosystème I (PSI), dont le centre réactionnel contient un dimère de chlorophylle a appelé P700 (absorption optimale à 700 nm). Un second photon frappe le P700 et réénergise l’électron. Celui-ci est alors capté par une série de transporteurs (A0, A1, centres fer-soufre) avant d’être finalement transféré à la ferrédoxine, puis à l’enzyme ferrédoxine-NADP⁺ réductase (FNR), qui catalyse la réduction du NADP⁺ en NADPH.
Le NADPH est un transporteur d’électrons à haute énergie. Il servira, dans le cycle de Calvin, à réduire le CO₂ en sucre.
La chimiosmose et la synthèse d’ATP
Le pompage de protons par le complexe cytochrome b6f (et par la photolyse de l’eau, qui libère des H⁺ dans la lumière du thylakoïde) crée un fort gradient électrochimique : la concentration en protons est beaucoup plus élevée à l’intérieur du thylakoïde (pH ≈ 5) que dans le stroma (pH ≈ 8). Ce gradient représente une forme d’énergie potentielle, comme l’eau retenue derrière un barrage.
Les protons ne peuvent franchir la membrane que par un seul passage : l’ATP synthase, un complexe enzymatique en forme de turbine moléculaire. Le flux de protons à travers l’ATP synthase fait tourner sa sous-unité rotative, et cette rotation mécanique catalyse la phosphorylation de l’ADP en ATP. C’est le même principe qu’une turbine hydroélectrique — sauf qu’ici, l’eau est remplacée par des protons et l’électricité par de l’ATP.
Peter Mitchell reçut le prix Nobel de chimie en 1978 pour avoir élucidé ce mécanisme, qu’il appela la chimiosmose.
Bilan de la phase claire
Pour résumer, la phase claire utilise l’énergie de 8 photons (4 pour le PSII, 4 pour le PSI) pour :
— oxyder 2 molécules d’eau en O₂ + 4 H⁺ + 4 e⁻ ;
— réduire 2 NADP⁺ en 2 NADPH ;
— synthétiser environ 3 ATP.
L’O₂ est libéré comme déchet. L’ATP et le NADPH sont exportés vers le stroma, où ils alimenteront la phase suivante.
Le cycle de Calvin — du CO₂ au sucre
La deuxième grande étape de la photosynthèse se déroule dans le stroma du chloroplaste. On l’appelle parfois « phase sombre » ou « phase obscure », mais cette terminologie est trompeuse : le cycle de Calvin ne nécessite pas d’obscurité, il a simplement lieu en l’absence de besoin direct de photons. En réalité, il fonctionne principalement de jour, car il dépend de l’ATP et du NADPH produits par la phase claire.
Melvin Calvin et la piste radioactive
Le cycle de Calvin a été élucidé entre 1946 et 1953 par Melvin Calvin, Andrew Benson et James Bassham à l’Université de Californie à Berkeley. Leur méthode était élégante : ils exposaient des cultures d’algues vertes (Chlorella) à du CO₂ marqué au carbone 14 (¹⁴C), puis tuaient les algues à intervalles très courts (quelques secondes) et analysaient les molécules radioactives par chromatographie. La première molécule à incorporer le ¹⁴C fut un composé à 3 carbones : l’acide 3-phosphoglycérique (3-PGA). Calvin reçut le prix Nobel de chimie en 1961.
Les trois phases du cycle
Le cycle de Calvin se décompose en trois phases :
1. Fixation du carbone — L’enzyme RuBisCO (ribulose-1,5-bisphosphate carboxylase/oxygénase) catalyse la réaction entre le CO₂ atmosphérique et une molécule à 5 carbones, le ribulose-1,5-bisphosphate (RuBP). Le produit instable à 6 carbones se scinde immédiatement en deux molécules de 3-phosphoglycérate (3-PGA, 3 carbones chacune). La RuBisCO est l’enzyme la plus abondante sur Terre — elle représente à elle seule 25 à 50 % des protéines totales d’une feuille.
2. Réduction — Le 3-PGA est phosphorylé par l’ATP, puis réduit par le NADPH, pour donner le glycéraldéhyde-3-phosphate (G3P). C’est la seule étape où l’énergie lumineuse (sous forme d’ATP et de NADPH) est directement investie dans la construction d’une molécule organique.
3. Régénération du RuBP — Sur les 6 molécules de G3P produites par 3 tours de cycle (fixation de 3 CO₂), 5 sont recyclées pour régénérer 3 molécules de RuBP, prêtes à fixer de nouveau du CO₂. Une seule molécule de G3P sort du cycle comme « bénéfice net » — elle sera utilisée pour synthétiser du glucose, du saccharose, de l’amidon ou des acides aminés.
Le rendement énergétique
Pour fixer 3 molécules de CO₂ et produire 1 G3P net, le cycle de Calvin consomme 9 ATP et 6 NADPH. Cela signifie que la synthèse d’une molécule de glucose (6 carbones, donc 6 tours de cycle) nécessite 18 ATP et 12 NADPH — soit l’énergie de 48 photons. Le rendement global de la photosynthèse, du photon au glucose, est d’environ 30 à 35 % en conditions optimales de laboratoire, mais seulement 1 à 3 % en conditions naturelles, en raison de pertes par réflexion, transmission, respiration et photorespiration.
La RuBisCO et le problème de la photorespiration
La RuBisCO porte bien son nom complet : ribulose-1,5-bisphosphate carboxylase/oxygénase. Car cette enzyme commet une erreur — une erreur aux conséquences considérables. Environ une fois sur quatre (à 25 °C et concentration atmosphérique normale de CO₂), la RuBisCO fixe une molécule d’O₂ au lieu du CO₂ sur le RuBP. Cette réaction parasite produit une molécule de 3-PGA et une molécule de 2-phosphoglycolate (2 carbones), un composé toxique que la plante doit recycler à grands frais énergétiques dans un processus appelé photorespiration.
La photorespiration consomme de l’ATP, libère du CO₂ (un comble pour un organisme photosynthétique) et réduit le rendement net de la photosynthèse de 25 à 30 %. C’est un gaspillage colossal — mais c’est un héritage de l’histoire de la vie. La RuBisCO est apparue il y a plus de 3 milliards d’années, à une époque où l’atmosphère terrestre ne contenait pratiquement pas d’oxygène. L’enzyme n’a jamais été « conçue » pour discriminer efficacement entre le CO₂ et l’O₂, et elle n’a jamais évolué vers une solution parfaite — probablement parce que toute amélioration de la sélectivité se fait au détriment de la vitesse catalytique.
La photorespiration s’aggrave avec la chaleur (qui diminue la solubilité du CO₂ dans l’eau relative à celle de l’O₂) et avec la sécheresse (qui force la fermeture des stomates, piégeant l’O₂ à l’intérieur de la feuille). C’est cette double contrainte qui a conduit, au cours de l’évolution, à l’émergence de solutions alternatives : les voies C4 et CAM.
C3, C4, CAM — trois stratégies face au climat
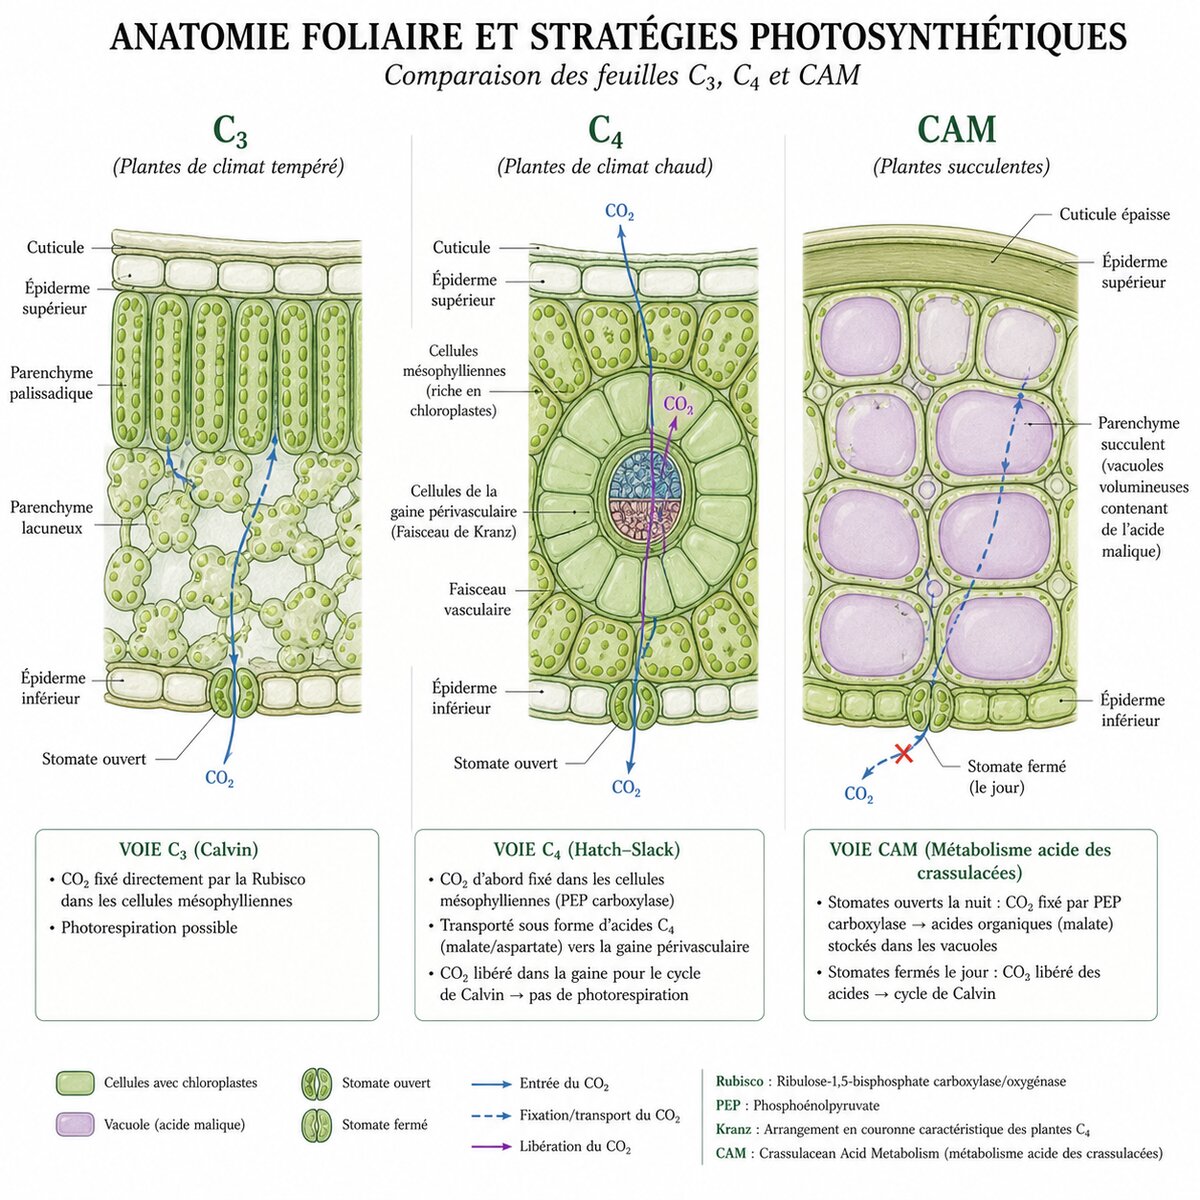
La grande majorité des plantes terrestres — environ 85 % des espèces — utilisent la voie C3 décrite ci-dessus : le premier produit stable de la fixation du CO₂ est le 3-PGA, une molécule à 3 carbones. Mais deux groupes de plantes ont développé des mécanismes qui concentrent le CO₂ autour de la RuBisCO pour éliminer la photorespiration.
Les plantes C4 — la pompe à CO₂
Les plantes C4 (maïs, sorgho, canne à sucre, amarante, pourpier, de nombreuses graminées tropicales) possèdent une anatomie foliaire caractéristique appelée anatomie de Kranz (du mot allemand pour « couronne »). Leurs cellules photosynthétiques sont organisées en deux couches concentriques autour des nervures :
— les cellules du mésophylle, en contact avec l’air des espaces intercellulaires, où le CO₂ est d’abord fixé non pas par la RuBisCO, mais par une autre enzyme, la PEP carboxylase (phosphoénolpyruvate carboxylase). Cette enzyme fixe le CO₂ sur le PEP pour former l’oxaloacétate (4 carbones — d’où le nom « C4 »), rapidement converti en malate ou aspartate ;
— les cellules de la gaine périvasculaire, étanches aux gaz, où le malate est décarboxylé, libérant du CO₂ à très haute concentration directement à proximité de la RuBisCO. Dans cet environnement enrichi en CO₂, la RuBisCO ne commet pratiquement plus d’erreur : la photorespiration est quasi nulle.
Le prix à payer : la fixation préliminaire par la PEP carboxylase et le transport du malate coûtent 2 ATP supplémentaires par CO₂ fixé. Mais dans les environnements chauds et ensoleillés, le gain en suppression de la photorespiration compense largement ce surcoût. C’est pourquoi les plantes C4 dominent les savanes tropicales, les prairies chaudes et les cultures estivales.
Les plantes CAM — la photosynthèse nocturne
Les plantes CAM (Crassulacean Acid Metabolism, métabolisme acide des Crassulacées) ont poussé l’adaptation encore plus loin. Dans les milieux arides — déserts, épiphytisme tropical, falaises rocheuses —, la perte d’eau par les stomates ouverts en journée serait fatale. Les plantes CAM ont donc inversé le cycle :
— la nuit, elles ouvrent leurs stomates et fixent le CO₂ via la PEP carboxylase. Le malate produit est stocké dans la vacuole, dont l’acidité augmente considérablement (le pH peut descendre à 3) ;
— le jour, les stomates se ferment (économie d’eau), le malate est exporté de la vacuole et décarboxylé, libérant du CO₂ qui est fixé par la RuBisCO dans le cycle de Calvin, alimenté en ATP et NADPH par la phase claire.
Cette séparation temporelle (nuit/jour) remplace la séparation spatiale (mésophylle/gaine) des plantes C4. Les plantes CAM incluent les cactus, les agaves, les aloès, les joubarbes, les orpins (Sedum), les ananas, certaines orchidées et de nombreuses plantes grasses. L’Aloe vera, l’Agave americana et le Kalanchoe daigremontiana (la « mère de milliers ») sont des exemples bien connus en phytothérapie ou en jardinage.
Le rendement des plantes CAM est faible (elles ne fixent du CO₂ que la nuit), mais leur efficacité d’utilisation de l’eau est extraordinaire : elles peuvent être 6 à 10 fois plus économes en eau que les plantes C3 pour produire la même quantité de biomasse.
Pourquoi cela intéresse le botaniste de terrain
Reconnaître si une plante est C3, C4 ou CAM permet de comprendre ses exigences écologiques, son habitat naturel et sa physiologie. Une plante C4 comme le pourpier (Portulaca oleracea) pousse en plein soleil et supporte la chaleur — inutile de la chercher en sous-bois. Une plante CAM comme la joubarbe (Sempervivum tectorum) survit sur un toit brûlant sans arrosage — sa pharmacopée vacuolaire (acide malique, polysaccharides) est directement liée à cette stratégie métabolique.
Photosynthèse et métabolites secondaires — le lien essentiel
La photosynthèse ne produit pas seulement du sucre. Elle est aussi le point de départ de toutes les voies de biosynthèse des métabolites secondaires. Comprendre ce lien, c’est comprendre pourquoi une même plante peut être médicinalement riche ou pauvre selon les conditions dans lesquelles elle a poussé.
Du glucose aux précurseurs
Le glucose issu de la photosynthèse entre dans la glycolyse, qui le transforme en pyruvate. Le pyruvate est le carrefour central du métabolisme : il peut être orienté vers la respiration (cycle de Krebs, dans les mitochondries), vers la synthèse d’acides aminés, ou vers les voies de production des métabolites secondaires :
— la voie du mévalonate (dans le cytoplasme) → sesquiterpènes, triterpènes, stéroïdes, saponines ;
— la voie du MEP (dans les chloroplastes) → monoterpènes, diterpènes, caroténoïdes, gibbérellines ;
— la voie du shikimate → acides aminés aromatiques → phénylpropanoïdes → flavonoïdes, tanins, lignine, coumarines ;
— la voie des acides aminés → alcaloïdes (morphine, caféine, berbérine…).
Chacune de ces voies est alimentée en carbone et en énergie par les produits de la photosynthèse. Plus la photosynthèse est active, plus la plante dispose de « briques élémentaires » et d’ATP pour construire ces molécules complexes.
La voie du MEP — une exclusivité chloroplastique
La voie du méthylérythritol phosphate (MEP), aussi appelée voie du DOXP, est particulièrement intéressante car elle se déroule à l’intérieur même des chloroplastes. Elle utilise directement le glycéraldéhyde-3-phosphate (G3P) produit par le cycle de Calvin et le pyruvate issu de la glycolyse chloroplastique pour synthétiser l’isopentényl pyrophosphate (IPP), le précurseur universel des terpénoïdes.
Cette voie produit les monoterpènes (menthol, thymol, cinéole, linalol, géraniol) qui constituent l’essentiel des huiles essentielles, les diterpènes (taxol, forskoline, stéviosides), les caroténoïdes et la chaîne latérale phytol de la chlorophylle elle-même. Elle est directement couplée à l’activité photosynthétique : plus les chloroplastes travaillent, plus les précurseurs terpéniques s’accumulent.
C’est la raison pour laquelle les plantes aromatiques méditerranéennes — thym, romarin, lavande, origan — sont plus parfumées et plus concentrées en huiles essentielles lorsqu’elles poussent en plein soleil sur un sol pauvre et sec. La forte luminosité stimule la voie MEP, et le stress hydrique redirige les ressources carbonées vers les métabolites secondaires plutôt que vers la croissance.
L’influence de la lumière sur la chimie des plantes médicinales
L’intensité et la qualité de la lumière reçue par une plante influencent profondément sa composition chimique. Cette observation, connue des herboristes depuis des siècles (« les plantes de montagne sont plus puissantes »), trouve aujourd’hui son explication dans la biochimie de la photosynthèse.
Le compromis croissance/défense
La théorie du compromis carbone-nutriments (carbon-nutrient balance hypothesis, Bryant et al., 1983) propose que lorsqu’une plante dispose de plus de carbone (forte lumière) que de nutriments (sol pauvre), l’excédent de carbone est redirigé vers la synthèse de composés carbonés défensifs — terpènes, phénols, tanins. À l’inverse, une plante poussant à l’ombre sur un sol riche en azote investit davantage dans la croissance (protéines, chlorophylle) et moins dans la défense chimique.
Cette théorie, bien que simplificatrice, explique de nombreuses observations empiriques :
— le thym de garrigue, en plein soleil sur calcaire aride, contient 2 à 5 fois plus de thymol que le thym cultivé à l’ombre dans un sol riche ;
— le millepertuis (Hypericum perforatum) accumule davantage d’hypéricine (le pigment rouge photoactif) dans les pétales exposés à un fort rayonnement UV ;
— l’artémisinine d’Artemisia annua, un sesquiterpène antipaludéen, est produite en quantité maximale dans les trichomes glandulaires des feuilles supérieures, les plus exposées au soleil ;
— les feuilles de thé vert (Camellia sinensis) cultivées à l’ombre (technique japonaise du kabusecha ou du gyokuro) contiennent plus de L-théanine (acide aminé azoté, synthèse favorisée par l’azote) et moins de catéchines (polyphénols carbonés, synthèse favorisée par la lumière).
Les UV et la synthèse de flavonoïdes
Les rayonnements ultraviolets (UV-A, 315-400 nm, et UV-B, 280-315 nm) ne sont pas utilisés directement par la photosynthèse, mais ils ont un effet puissant sur le métabolisme secondaire. Les UV-B sont perçus par un récepteur spécifique (UVR8) qui déclenche l’expression de gènes codant pour les enzymes de la voie des phénylpropanoïdes — notamment la chalcone synthase (CHS), la première enzyme engagée dans la biosynthèse des flavonoïdes.
Les flavonoïdes agissent comme des « crèmes solaires » internes : ils absorbent les UV-B dans l’épiderme et protègent les chloroplastes des couches plus profondes. C’est pourquoi les plantes d’altitude, exposées à un rayonnement UV plus intense (l’atmosphère y est plus mince), sont généralement plus riches en flavonoïdes que les mêmes espèces en plaine. La quercétine, la rutine, l’apigénine et le kaempférol sont des flavonoïdes typiquement surexprimés en réponse aux UV.
Cela a des conséquences pratiques directes pour le phytothérapeute : un millepertuis récolté à 1 500 mètres d’altitude contiendra davantage de quercétine et de rutine qu’un millepertuis de plaine. Une camomille des hauts plateaux aura plus d’apigénine qu’une camomille de jardin au niveau de la mer.
Le moment de la récolte
La photosynthèse suit un rythme circadien qui influence la teneur en métabolites secondaires au cours de la journée :
— les monoterpènes volatils des huiles essentielles atteignent leur concentration maximale en début de matinée, après quelques heures de photosynthèse active mais avant que la chaleur du midi ne provoque leur évaporation. C’est pourquoi les cueilleurs de lavande, de thym et de menthe récoltent traditionnellement entre 9h et 11h ;
— les alcaloïdes, dont la synthèse est souvent régulée par des rythmes circadiens indépendants de la lumière, peuvent présenter des pics à des moments différents selon les espèces ;
— les acides phénoliques (acide rosmarinique, acide chlorogénique) s’accumulent au cours de la journée sous l’effet de la lumière et atteignent un maximum en fin d’après-midi.
Le devenir du sucre — de la feuille à la racine
Le glucose produit par la photosynthèse dans les feuilles ne reste pas sur place. Il est converti en saccharose (le sucre de table, un disaccharide glucose-fructose) dans le cytoplasme des cellules du mésophylle, puis chargé dans le phloème pour être transporté vers toutes les parties de la plante qui en ont besoin.
Les organes « sources » et les organes « puits »
En physiologie végétale, on distingue les organes sources (qui exportent du saccharose — essentiellement les feuilles matures exposées à la lumière) et les organes puits (qui importent du saccharose — racines, bourgeons, fruits en développement, graines, tubercules). Le saccharose circule dans le phloème sous l’effet d’un gradient de pression osmotique (mécanisme de Münch, 1930).
Cette distribution a des conséquences directes sur la teneur en principes actifs des différents organes :
— les racines accumulent des réserves sous forme d’amidon (chaînes de glucose), d’inuline (chaînes de fructose, chez les Astéracées) ou de saccharose. C’est pourquoi les racines médicinales sont généralement récoltées en automne, lorsque la plante a terminé sa photosynthèse et a envoyé ses réserves vers le sous-sol ;
— les fruits et les graines reçoivent un afflux massif de sucres et de précurseurs métaboliques pendant la maturation. La concentration en alcaloïdes, en flavonoïdes ou en huiles grasses des graines reflète directement cette allocation ;
— les feuilles, organes sources, sont plus riches en métabolites secondaires pendant la période de pleine activité photosynthétique (printemps-été), et s’appauvrissent à l’automne lorsque les réserves sont exportées.
Photosynthèse et évolution — une histoire de 3 milliards d’années
La photosynthèse oxygénique — celle qui produit de l’O₂ — est apparue chez les cyanobactéries il y a environ 2,7 à 3 milliards d’années. Pendant plus d’un milliard d’années, l’oxygène produit a été absorbé par le fer dissous dans les océans, formant d’immenses dépôts de fer rubané (banded iron formations, BIF) qui constituent aujourd’hui nos principaux gisements de minerai de fer.
Il y a environ 2,4 milliards d’années, les puits de fer étant saturés, l’oxygène a commencé à s’accumuler dans l’atmosphère. C’est le Grand Événement d’Oxydation (Great Oxidation Event, GOE), une catastrophe écologique pour les organismes anaérobies de l’époque, mais l’opportunité qui a permis l’émergence de la respiration aérobie — et, finalement, de la vie animale.
Les chloroplastes des plantes actuelles descendent de cyanobactéries endosymbiotiques, englouties par une cellule eucaryote ancestrale il y a environ 1,5 milliard d’années (endosymbiose primaire). Ils conservent leur propre ADN circulaire (environ 120 gènes), leurs ribosomes de type bactérien et leur double membrane — la membrane externe correspond à la vacuole de phagocytose de la cellule hôte, la membrane interne à la membrane plasmique de la cyanobactérie ancestrale.
Fait remarquable : l’enzyme RuBisCO des chloroplastes actuels est pratiquement identique à celle des cyanobactéries fossiles. En trois milliards d’années d’évolution, cette enzyme n’a presque pas changé — témoignage de la contrainte fonctionnelle extrême qui pèse sur elle et de la difficulté qu’a la sélection naturelle à améliorer un mécanisme aussi fondamental.
Implications pratiques — de la compréhension à la tisane
Comprendre la photosynthèse permet au phytothérapeute et au jardinier de plantes médicinales de prendre des décisions éclairées à chaque étape — de la culture à la récolte, du séchage à la préparation.
Cultiver pour la qualité médicinale
— Exposition : les plantes aromatiques et riches en terpènes (Lamiacées, Astéracées) doivent être cultivées en plein soleil pour maximiser l’activité de la voie MEP dans les chloroplastes. Les plantes d’ombre (pervenche, muguet, gingko) n’ont pas besoin de cette stimulation.
— Sol : un sol modérément pauvre en azote favorise la production de composés phénoliques et terpéniques (compromis croissance/défense). Un excès d’engrais azoté produit des plantes vigoureuses mais chimiquement diluées.
— Altitude : la culture en altitude (UV intenses, amplitude thermique, sols minéraux) stimule la production de flavonoïdes et d’anthocyanes protectrices.
— Stress hydrique modéré : un léger stress hydrique (sans atteindre le flétrissement) force la fermeture partielle des stomates, concentre le CO₂ intracellulaire et redirige les ressources vers les défenses chimiques.
Récolter au bon moment
— Feuilles et sommités fleuries : en début de matinée (après évaporation de la rosée, avant la chaleur du midi), pendant la pleine floraison.
— Racines : en automne ou au début du printemps, lorsque les réserves photosynthétiques de la saison précédente sont stockées dans les organes souterrains.
— Écorces : au printemps, quand la montée de sève facilite le détachement et que les tissus sont gorgés de métabolites.
Sécher correctement
Le séchage doit être rapide et à l’abri de la lumière directe. La lumière continue d’activer certaines réactions photochimiques dans les tissus coupés, dégradant les pigments (chlorophylle, caroténoïdes) et certains principes actifs photosensibles (hypéricine, furocoumarines). Un séchage à l’ombre, dans un endroit ventilé, à 30-40 °C, préserve au mieux le profil chimique de la plante fraîche.
Bibliographie
Blankenship, R.E. (2021). Molecular Mechanisms of Photosynthesis, 3e éd. Wiley-Blackwell. L’ouvrage de référence sur la biophysique et la biochimie de la photosynthèse.
Taiz, L., Zeiger, E., Møller, I.M. & Murphy, A. (2022). Plant Physiology and Development, 7e éd. Oxford University Press. Manuel universitaire couvrant tous les aspects de la physiologie végétale, dont la photosynthèse aux chapitres 7-10.
Lichtenthaler, H.K. (1999). The 1-deoxy-D-xylulose-5-phosphate pathway of isoprenoid biosynthesis in plants. Annual Review of Plant Physiology and Plant Molecular Biology, 50, 47-65. Article fondateur sur la voie MEP chloroplastique.
Sage, R.F. (2004). The evolution of C4 photosynthesis. New Phytologist, 161, 341-370. Synthèse sur l’évolution convergente de la voie C4.
Osmond, C.B. (1978). Crassulacean acid metabolism: a curiosity in context. Annual Review of Plant Physiology, 29, 379-414. Article classique sur le métabolisme CAM.
Lüttge, U. (2004). Ecophysiology of Crassulacean acid metabolism (CAM). Annals of Botany, 93, 629-652. Synthèse complète sur la physiologie CAM.
Bryant, J.P., Chapin, F.S. III & Klein, D.R. (1983). Carbon/nutrient balance of boreal plants in relation to vertebrate herbivory. Oikos, 40, 357-368. L’hypothèse du compromis carbone-nutriments.
Vogt, T. (2010). Phenylpropanoid biosynthesis. Molecular Plant, 3, 2-20. Revue de la voie des phénylpropanoïdes et ses ramifications.
Jenkins, G.I. (2009). Signal transduction in responses to UV-B radiation. Annual Review of Plant Biology, 60, 407-431. Perception des UV et induction des flavonoïdes.
Vranová, E., Coman, D. & Gruissem, W. (2013). Network analysis of the MVA and MEP pathways for isoprenoid synthesis. Annual Review of Plant Biology, 64, 665-700. Synthèse sur les deux voies de biosynthèse des terpénoïdes.
Calvin, M. & Bassham, J.A. (1962). The Photosynthesis of Carbon Compounds. W.A. Benjamin, New York. Récit par Calvin lui-même de la découverte du cycle qui porte son nom.
Mitchell, P. (1961). Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature, 191, 144-148. L’article fondateur de la chimiosmose.
Farquhar, G.D., von Caemmerer, S. & Berry, J.A. (1980). A biochemical model of photosynthetic CO₂ assimilation in leaves of C3 species. Planta, 149, 78-90. Le modèle mathématique de référence de la photosynthèse C3.
Raven, P.H., Evert, R.F. & Eichhorn, S.E. (2021). Biology of Plants, 9e éd. W.H. Freeman. Manuel classique de biologie végétale, chapitres sur la photosynthèse accessibles et richement illustrés.
Wink, M. (2010). Functions and Biotechnology of Plant Secondary Metabolites. Annual Plant Reviews, vol. 39. Wiley-Blackwell. Le lien entre métabolisme primaire (photosynthèse) et secondaire (principes actifs).