Une plante ne peut ni fuir un herbivore, ni migrer quand le climat se durcit, ni creuser un terrier pour échapper au gel. Elle est fixée au sol — enracinée, immobile, exposée. Et pourtant, les plantes ont colonisé la quasi-totalité des milieux terrestres, des déserts brûlants aux toundras arctiques, des marais salants aux crevasses rocheuses des sommets alpins, des sous-bois privés de lumière aux dunes littorales battues par le vent. Cette conquête planétaire repose sur un arsenal d’adaptations morphologiques, physiologiques et chimiques d’une inventivité que la technologie humaine peine souvent à égaler.
Ce dixième et dernier volet de notre série Bases botaniques explore les stratégies que les plantes ont développées pour résister à la sécheresse, au froid, à l’excès de lumière, au sel, aux herbivores et aux pathogènes. Pour le phytothérapeute, ces adaptations ne sont pas des curiosités biologiques — elles sont la raison d’être des métabolites secondaires qu’il utilise au quotidien. Comprendre pourquoi une plante fabrique telle molécule, c’est comprendre comment, quand et où cette molécule est produite — et donc comment optimiser la récolte, la préparation et l’usage de la drogue végétale.
Le stress végétal — un concept fondateur
En physiologie végétale, le mot stress désigne tout facteur environnemental qui réduit la croissance ou le métabolisme d’une plante en dessous de son potentiel génétique. Un stress peut être abiotique (sécheresse, gel, salinité, excès de lumière, carence minérale, inondation, vent, pollution) ou biotique (herbivorie, parasitisme, compétition, pathogènes). La réponse de la plante à un stress suit une séquence en trois phases, décrite pour la première fois par Hans Selye pour les organismes animaux et transposée au monde végétal par les écophysiologistes :
1. Phase d’alarme — le stress est perçu par des récepteurs membranaires ou intracellulaires. Des cascades de signalisation sont déclenchées : flux de calcium, production d’espèces réactives de l’oxygène (ROS), activation de protéines kinases, synthèse d’hormones de stress (acide abscissique, acide jasmonique, acide salicylique, éthylène). La plante « sonne l’alerte ».
2. Phase d’acclimatation — si le stress est modéré et progressif, la plante met en place des réponses adaptatives : modification de l’expression génique, synthèse de protéines protectrices (protéines LEA, chaperonnes, enzymes antioxydantes), accumulation d’osmolytes et de métabolites secondaires, ajustements morphologiques (épaississement de la cuticule, fermeture des stomates, croissance racinaire accrue). La plante s’adapte.
3. Phase d’épuisement — si le stress dépasse les capacités d’acclimatation (trop intense, trop prolongé ou trop brutal), les dommages cellulaires deviennent irréversibles : dénaturation des protéines, destruction des membranes, nécrose tissulaire, mort.
Pour le phytothérapeute, un point crucial émerge de ce schéma : un stress modéré stimule la production de métabolites secondaires. Une plante qui pousse dans des conditions confortables — sol riche, eau abondante, absence de prédateurs — produit moins de composés de défense qu’une plante stressée. C’est pourquoi le thym sauvage des garrigues calcaires du Midi, soumis à la sécheresse estivale, au vent et au sol pauvre, est plus aromatique que le thym cultivé en pot sur un balcon parisien. C’est pourquoi les herboristes récoltent de préférence les plantes sauvages ou semi-sauvages, dans leurs habitats naturels, plutôt que les plantes de culture intensive.
Résister à la sécheresse — les stratégies hydriques
L’eau est le facteur limitant numéro un de la vie végétale terrestre. Une plante qui perd plus d’eau par transpiration qu’elle n’en absorbe par ses racines entre en déficit hydrique — un stress qui, s’il se prolonge, conduit à la flétrissure, à l’embolie des vaisseaux conducteurs et à la mort. Les plantes ont développé trois grandes stratégies face à la sécheresse.
L’évitement — esquiver le stress
Les plantes éphémères (thérophytes) esquivent la sécheresse en bouclant leur cycle de vie complet — germination, croissance, floraison, fructification — pendant la courte saison humide, puis survivent sous forme de graines pendant la saison sèche. Les annuelles des déserts (comme les coquelicots du désert de Californie ou les éphémères du Sahara) germent après les pluies, fleurissent en quelques semaines et meurent avant que la sécheresse ne s’installe. La graine, déshydratée et métaboliquement inactive, peut survivre des années, voire des décennies, en attendant les conditions favorables.
D’autres plantes évitent la sécheresse par la dormance : les géophytes (plantes à bulbe, à rhizome ou à tubercule) perdent leurs parties aériennes pendant la saison sèche et survivent grâce aux réserves stockées dans leurs organes souterrains. Le colchique, le crocus, la tulipe, le cyclamen et la plupart des orchidées terrestres méditerranéennes sont des géophytes.
La tolérance — résister au manque d’eau
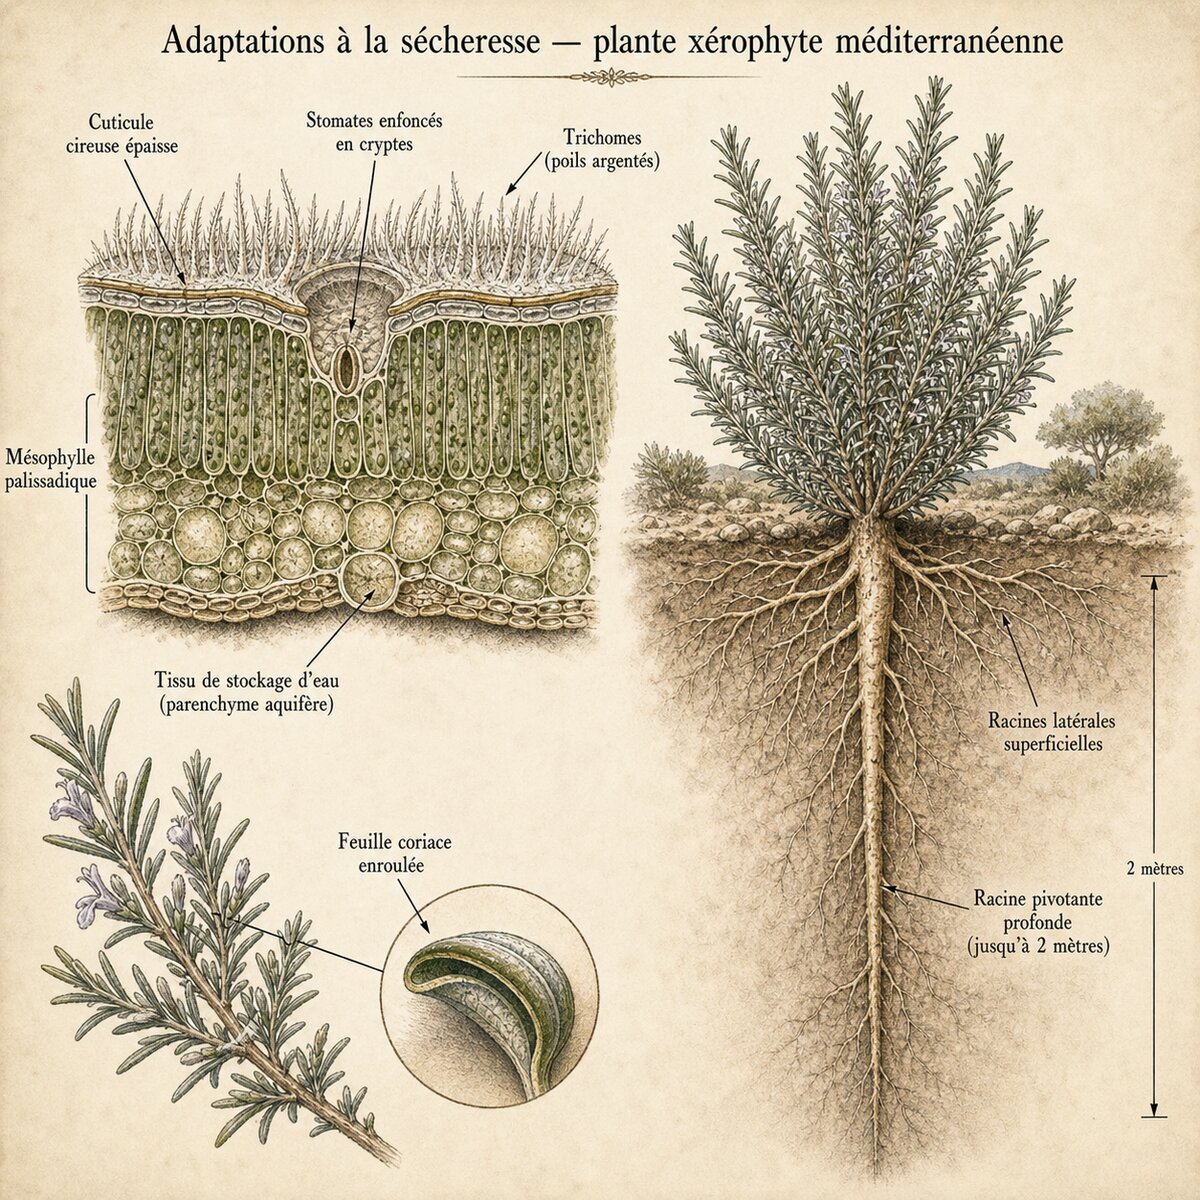
Les plantes xérophytes tolèrent la sécheresse grâce à un arsenal d’adaptations morphologiques et physiologiques qui réduisent les pertes d’eau et maximisent l’absorption :
Réduction de la surface foliaire — des feuilles petites, étroites, coriaces et épaisses réduisent la surface transpirante. Les feuilles aciculaires (en forme d’aiguilles) des romarins et des bruyères, les feuilles réduites à des épines chez les cactus, les feuilles enroulées des graminées xérophytes (l’oyat des dunes, Ammophila arenaria) illustrent cette stratégie. Certaines plantes poussent le principe jusqu’à la phyllocladie — la tige aplatie remplace les feuilles absentes dans la photosynthèse (les « feuilles » du fragon, Ruscus aculeatus, sont en réalité des tiges aplaties).
Cuticule épaisse et cireuse — la cuticule, fine couche de cutine et de cires recouvrant l’épiderme, est la première barrière contre l’évaporation. Chez les xérophytes, elle est anormalement épaisse et chargée en cires épicuticulaires. La pruine bleutée des feuilles d’eucalyptus, l’aspect cireux des feuilles de laurier-rose, la pellicule argentée des feuilles de sauge officinale sont des manifestations visibles de cette adaptation.
Pilosité foliaire — un revêtement dense de poils (trichomes) à la surface des feuilles crée une couche d’air immobile (couche limite) qui ralentit l’évaporation et réfléchit une partie du rayonnement solaire. L’aspect gris argenté de nombreuses plantes méditerranéennes — sauge, lavande, hélichryse, molène (bouillon-blanc) — est dû à cette pilosité protectrice. Les trichomes de l’hélichryse (Helichrysum italicum) sont si denses que la plante semble recouverte de feutre — d’où son nom anglais curry plant (bien que l’odeur évoque plutôt le curry que la texture).
Stomates enfoncés — chez de nombreuses xérophytes, les stomates (pores de la surface foliaire par lesquels s’échangent CO₂, O₂ et vapeur d’eau) sont logés dans des cryptes profondes de l’épiderme, souvent garnies de poils, ce qui réduit la vitesse de diffusion de la vapeur d’eau. Les feuilles de laurier-rose (Nerium oleander) possèdent des cryptes stomatiques particulièrement développées sur leur face inférieure — un caractère facilement observable au microscope optique.
Système racinaire profond ou étendu — certaines plantes xérophytes investissent massivement dans les racines. La réglisse (Glycyrrhiza glabra) peut enfoncer ses racines à plus de 4 mètres de profondeur pour atteindre la nappe phréatique. Le dromadaire végétal de la steppe, l’astragale (Astragalus membranaceus), possède un pivot racinaire qui peut atteindre 3 mètres. À l’inverse, les cactus développent un réseau racinaire très étendu mais superficiel, capable de capter la moindre averse en quelques heures.
La succulence — stocker l’eau dans les tissus
Les plantes succulentes (ou plantes grasses) stockent l’eau dans des tissus parenchymateux spécialisés, gonflés de grandes vacuoles aqueuses. Les feuilles charnues des aloès (Aloe vera), des joubarbes (Sempervivum), des sédums et des agaves, ou les tiges gonflées des cactus, sont des réservoirs d’eau vivants.
Beaucoup de succulentes utilisent un métabolisme photosynthétique particulier, le métabolisme acide crassulacéen (CAM) — du nom de la famille des Crassulacées chez laquelle il a été découvert. Les plantes CAM ouvrent leurs stomates la nuit (quand l’air est frais et l’évaporation faible) pour absorber le CO₂, qu’elles stockent sous forme d’acide malique dans la vacuole. Le jour, stomates fermés, elles décarboxylent l’acide malique et utilisent le CO₂ libéré pour la photosynthèse. Ce découplage temporel entre absorption du CO₂ et photosynthèse réduit les pertes d’eau d’un facteur 3 à 10 par rapport aux plantes en C₃ classiques.
L’aloe vera (Aloe barbadensis Mill.) illustre parfaitement la convergence entre adaptation à la sécheresse et usage médicinal. Le gel mucilagineux contenu dans les feuilles — qui est fondamentalement un réservoir d’eau épaissie par des polysaccharides (acémannane) — est devenu l’un des ingrédients cosmétiques et dermatologiques les plus utilisés au monde. Les aloïnes (anthraquinones) du latex situé sous l’épiderme, qui protègent la plante contre les herbivores par leur amertume et leur effet laxatif puissant, constituent l’autre face pharmacologique de la même plante.
Résister au froid — du gel à la cryoprotection
Le gel est un stress potentiellement mortel pour les cellules végétales. Lorsque la température descend en dessous de 0 °C, l’eau des espaces intercellulaires gèle en premier, formant des cristaux de glace qui aspirent l’eau intracellulaire par osmose — les cellules se déshydratent et se contractent. Si des cristaux se forment à l’intérieur même des cellules, ils perforent les membranes et la cellule meurt. La résistance au gel repose donc sur la capacité à empêcher la formation de glace intracellulaire tout en tolérant la déshydratation provoquée par le gel extracellulaire.
L’endurcissement au froid
Les plantes des régions tempérées et boréales subissent un processus d’endurcissement (cold hardening) à l’automne, déclenché par le raccourcissement des jours (photopériode) et les premières baisses de température. Ce processus comprend :
— l’accumulation de sucres solubles (saccharose, raffinose, stachyose) et de polyols (sorbitol, mannitol) dans le cytoplasme, qui agissent comme des cryoprotecteurs : ils abaissent le point de congélation intracellulaire et stabilisent les membranes et les protéines contre la déshydratation ;
— la synthèse de protéines LEA (Late Embryogenesis Abundant) et de déshydrines, des protéines hydrophiles intrinsèquement désordonnées qui protègent les structures cellulaires contre la dessiccation en formant un « bouclier moléculaire » autour des enzymes et des membranes ;
— la modification de la composition lipidique des membranes : augmentation des acides gras insaturés (qui restent fluides à basse température) au détriment des acides gras saturés (qui se figent). Cette fluidité membranaire est essentielle au fonctionnement des protéines membranaires et au maintien de la compartimentation cellulaire ;
— la production de protéines antigel (AFP, antifreeze proteins) chez certaines espèces, qui se lient aux cristaux de glace naissants et inhibent leur croissance, empêchant la formation de gros cristaux destructeurs.
L’endurcissement est réversible : au printemps, la plante perd progressivement sa résistance au gel — c’est pourquoi un gel tardif en avril est souvent plus dévastateur qu’un gel à -20 °C en janvier.
Conséquences pour la phytothérapie
L’accumulation de sucres et de composés cryoprotecteurs à l’automne modifie la composition chimique des racines et des organes de réserve. C’est l’une des raisons pour lesquelles la tradition herboristique préconise la récolte des racines médicinales à l’automne ou en début d’hiver, lorsque les réserves sont maximales et la plante a concentré ses métabolites dans ses organes souterrains (racine de valériane, de bardane, de pissenlit, d’angélique, de réglisse, d’échinacée).
Résister à la lumière excessive — photoprotection et pigments
La lumière est indispensable à la photosynthèse, mais un excès de lumière est toxique. Lorsque l’énergie lumineuse absorbée par les chlorophylles dépasse la capacité de la chaîne photosynthétique à l’utiliser, l’excédent génère des espèces réactives de l’oxygène (ROS) — oxygène singulet, radical superoxyde, peroxyde d’hydrogène — qui endommagent les lipides membranaires, les protéines et l’ADN. C’est le stress photo-oxydatif.
Les caroténoïdes — pare-soleil moléculaires
Les caroténoïdes (β-carotène, lutéine, zéaxanthine, violaxanthine) sont les premiers remparts contre le stress lumineux. Ils agissent de deux façons :
— en désactivant l’oxygène singulet par transfert d’énergie (le caroténoïde absorbe l’énergie excédentaire et la dissipe sous forme de chaleur) ;
— en participant au cycle des xanthophylles : sous forte lumière, la violaxanthine est convertie en zéaxanthine par l’enzyme violaxanthine dé-époxydase. La zéaxanthine dissipe l’énergie lumineuse excédentaire sous forme de chaleur dans les antennes collectrices (dissipation non photochimique, ou NPQ). C’est un « fusible moléculaire » qui protège le photosystème II de la surcharge.
Les anthocyanes — écran et antioxydant
Les anthocyanes — pigments rouges, violets et bleus déjà rencontrés dans notre article sur les métabolites secondaires — jouent un rôle de filtre lumineux dans les feuilles stressées. Les feuilles rouges des jeunes pousses printanières (rosier, vigne, érable) et des feuilles automnales accumulent des anthocyanes dans l’épiderme et le mésophylle, filtrant une partie de la lumière visible (surtout le vert et le bleu) avant qu’elle n’atteigne les chloroplastes. Cette photoprotection est particulièrement importante lorsque la plante est simultanément exposée au froid et à la lumière intense — une combinaison qui maximise le risque photo-oxydatif car le froid ralentit les réactions enzymatiques de la photosynthèse tandis que la lumière continue à exciter les chlorophylles.
Les flavonoïdes comme filtres UV
Les flavonoïdes et les acides phénoliques accumulés dans les cellules épidermiques absorbent le rayonnement ultraviolet (UV-A et UV-B) avant qu’il n’atteigne les cellules internes du mésophylle où se déroule la photosynthèse. Les plantes d’altitude — exposées à un rayonnement UV plus intense qu’en plaine — accumulent des concentrations de flavonoïdes significativement plus élevées. L’arnica des montagnes (Arnica montana), le génépi (Artemisia glacialis), le thé des Alpes (Sideritis spp.) sont des exemples de plantes médicinales d’altitude riches en polyphénols — et leur richesse en polyphénols est en grande partie une réponse adaptative au stress UV.
Cette corrélation entre altitude et teneur en polyphénols a des implications directes pour la qualité des drogues végétales : la lavande vraie récoltée à 1 200 mètres d’altitude dans les Alpes de Haute-Provence contient plus d’esters (acétate de linalyle) et de composés phénoliques que la même espèce cultivée en plaine.
Résister au sel — les halophytes
La salinité du sol est un stress majeur qui affecte environ 20 % des terres irriguées dans le monde. L’excès de sodium (Na⁺) et de chlorure (Cl⁻) perturbe l’équilibre osmotique, inhibe l’absorption du potassium (K⁺) et du calcium (Ca²⁺), et exerce une toxicité ionique directe sur les enzymes cytoplasmiques. Les halophytes — plantes adaptées aux milieux salés — ont développé plusieurs stratégies :
L’exclusion — certaines halophytes empêchent le sodium de pénétrer dans les racines grâce à des transporteurs membranaires sélectifs (les protéines HKT1, qui recaptent le Na⁺ du flux de sève montant).
La compartimentation — d’autres espèces absorbent le sodium mais le séquestrent dans la vacuole, à l’écart du cytoplasme où il serait toxique. Le transporteur vacuolaire NHX1 (antiport Na⁺/H⁺) pompe activement le sodium dans la vacuole. Pour compenser l’effet osmotique du sel vacuolaire, la plante accumule des solutés compatibles dans le cytoplasme — des molécules organiques non toxiques qui équilibrent la pression osmotique : la bétaïne (glycine bétaïne) chez les Chénopodiacées (betterave, épinard, quinoa), la proline chez de nombreuses espèces, le pinitol (inositol méthylé) chez les Fabacées halophytes.
L’excrétion — certaines halophytes possèdent des glandes à sel sur leurs feuilles, qui excrètent activement le sodium. La surface des feuilles de Limonium (statice) ou de Tamarix (tamaris) est souvent recouverte de cristaux de sel visibles à l’œil nu.
La succulence halophyte — comme les succulentes xérophytes, les halophytes succulentes (salicorne, Salicornia europaea ; soude, Suaeda maritima) stockent l’eau pour diluer la concentration en sel dans leurs tissus.
Le lien avec la phytothérapie est discret mais réel. La bétaïne, osmolyte des halophytes de la famille des Chénopodiacées, est devenue un complément alimentaire hépatoprotecteur — elle sert de donneur de méthyle dans le cycle de la méthionine et participe à la détoxification de l’homocystéine. La betterave (Beta vulgaris) est une source majeure de bétaïne, et ses propriétés hépatoprotectrices et cardioprotectrices sont en partie liées à cette molécule d’adaptation au sel.
Résister aux herbivores — l’arsenal chimique
Les plantes consacrent une part considérable de leur budget énergétique à se défendre contre les herbivores — insectes, mammifères, mollusques, nématodes. Comme nous l’avons vu dans l’article sur les métabolites secondaires, les défenses chimiques sont au cœur de cette stratégie. Mais les adaptations anti-herbivorie ne se limitent pas à la chimie.
Les défenses physiques
Les épines et les aiguillons — les épines (tiges modifiées, comme chez le prunellier ou l’aubépine) et les aiguillons (excroissances épidermiques, comme chez le rosier) dissuadent les grands herbivores. L’observation classique : les aubépines (Crataegus) qui poussent dans un pâturage ont des épines plus longues et plus nombreuses que celles qui poussent en forêt, à l’abri des bovins — la pression de broutage sélectionne les individus les plus épineux.
Les poils urticants — l’ortie (Urtica dioica) possède des trichomes silicifiés dont l’extrémité se brise au contact comme une ampoule de verre, injectant un cocktail de histamine, d’acétylcholine, de sérotonine et d’acide formique dans la peau de l’agresseur. Ce mécanisme est une véritable seringue hypodermique végétale — et c’est précisément cet effet urticant qui est exploité en phytothérapie traditionnelle dans l’urtication (flagellation des articulations douloureuses avec des feuilles fraîches d’ortie), un traitement révulsif de l’arthrite documenté depuis l’Antiquité.
Les cristaux d’oxalate de calcium — de nombreuses plantes accumulent de l’oxalate de calcium sous forme de cristaux microscopiques (raphides, druses, prismes) dans leurs cellules. Lorsqu’un herbivore mâche la feuille, les raphides (aiguilles cristallines) perforent les muqueuses buccales, provoquant une irritation intense. L’arum (Arum maculatum), le dieffenbachia et la rhubarbe (dans les feuilles, pas dans les pétioles comestibles) sont riches en raphides d’oxalate. C’est une défense à la fois mécanique (perforation) et chimique (toxicité de l’oxalate).
La silicification — les graminées (Poaceae) et les prêles (Equisetaceae) accumulent de la silice (SiO₂) dans leurs cellules épidermiques sous forme de phytolithes — des corps siliceux extrêmement durs et abrasifs. La mastication d’herbes riches en silice use les dents des herbivores — une pression sélective qui a joué un rôle majeur dans l’évolution des dents à couronne haute (hypsodontes) des chevaux et des bovins. En phytothérapie, la richesse en silice de la prêle des champs (Equisetum arvense) est exploitée comme reminéralisant — la silice contribuerait à la solidité du tissu conjonctif, des os, des ongles et des cheveux, bien que la biodisponibilité de la silice végétale soit encore discutée.
Les défenses chimiques inductibles
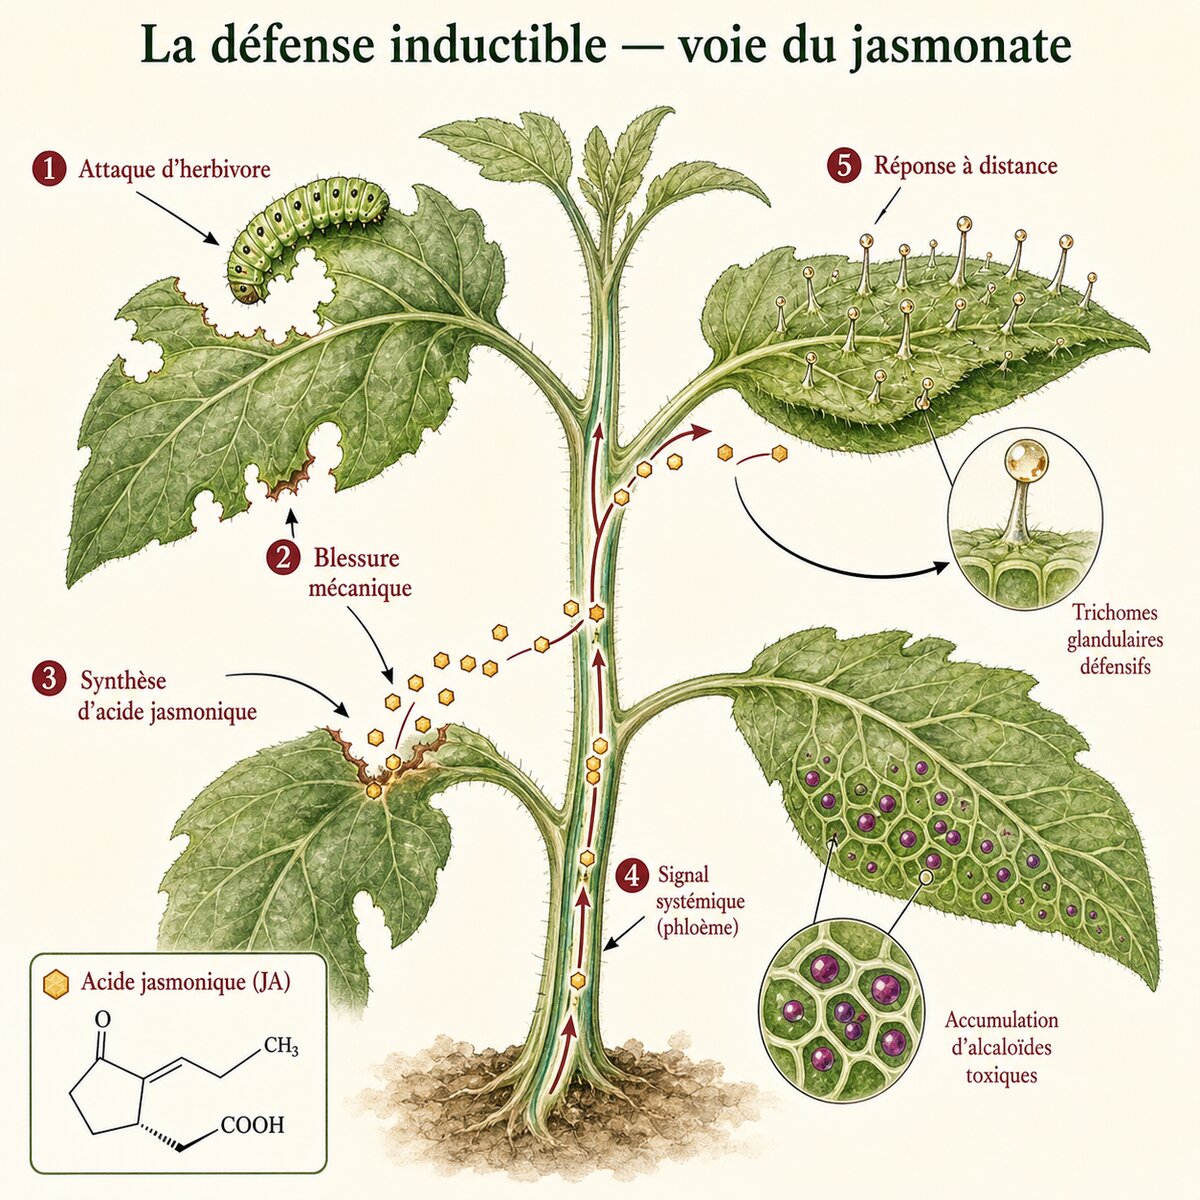
Au-delà des défenses constitutives (présentes en permanence), les plantes disposent de défenses chimiques inductibles — activées uniquement en réponse à une agression. Le système de signalisation le mieux étudié fait intervenir l’acide jasmonique (jasmonate), une hormone végétale dérivée de l’acide linolénique (un acide gras des membranes). Le jasmonate est le « signal de guerre » des plantes :
— lorsqu’une chenille mord dans une feuille de tomate, les cellules endommagées libèrent un peptide signal, la systémine (18 acides aminés), qui se propage dans la plante via le phloème ;
— la systémine déclenche la cascade du jasmonate dans les feuilles non attaquées ;
— le jasmonate active les gènes codant pour les inhibiteurs de protéases — de petites protéines qui se lient aux protéases digestives de l’insecte et les inactivent. La chenille ne peut plus digérer les protéines de la feuille — elle cesse de se nourrir ou meurt de malnutrition ;
— simultanément, le jasmonate stimule la synthèse d’une panoplie de métabolites secondaires : alcaloïdes (augmentation de la nicotine dans le tabac), terpènes volatils (émission de composés qui attirent les prédateurs naturels des herbivores — les guêpes parasitoïdes, par exemple), phénoliques (augmentation des tannins dans les feuilles de chêne).
Ce dernier point est remarquable : la plante attaquée appelle à l’aide. En émettant des composés volatils spécifiques (un « SOS chimique »), elle attire les ennemis naturels de son agresseur. Le maïs attaqué par la chenille de Spodoptera émet du (E)-β-farnésène et du (E)-4,8-diméthyl-1,3,7-nonatriène, qui attirent la guêpe parasitoïde Cotesia marginiventris, laquelle pond ses œufs dans la chenille. C’est une défense indirecte — la plante recrute un mercenaire.
Plus spectaculaire encore : les plantes voisines, non attaquées, peuvent « capter » les composés volatils émis par la plante agressée et activer préventivement leurs propres défenses. C’est la communication inter-plantes — un phénomène documenté chez le saule, le peuplier, l’aulne, le tabac sauvage et de nombreuses autres espèces. Les composés volatils jouent le rôle de « signal d’alarme » propagé par l’air.
Résister aux pathogènes — l’immunité végétale
Les plantes ne possèdent ni anticorps, ni lymphocytes, ni système immunitaire adaptatif au sens animal du terme. Pourtant, les maladies végétales sont l’exception plutôt que la règle — ce qui signifie que les plantes disposent d’un système de défense extrêmement efficace. Ce système repose sur deux niveaux :
L’immunité basale — la première ligne
La première ligne de défense est constitutive — elle est en place avant toute infection :
— la paroi cellulaire : barrière physique de cellulose, hémicellulose et pectines, souvent renforcée par la lignine (polymère phénolique extrêmement résistant à la dégradation enzymatique) et la subérine (polymère lipidique imperméable). La lignification des parois cellulaires autour du site d’infection est l’une des premières réponses défensives ;
— la cuticule : revêtement cireux de l’épiderme, imperméable aux spores fongiques et aux bactéries ;
— les métabolites secondaires constitutifs : composés antimicrobiens présents en permanence dans les tissus (phytoalexines constitutives, ou « phytoanticipines »). Les isothiocyanates des Brassicacées, les tannins des chênes, les huiles essentielles des Lamiacées et les saponines des Caryophyllacées sont des exemples de phytoanticipines.
L’immunité déclenchée — la reconnaissance du pathogène
Lorsqu’un pathogène franchit les défenses constitutives, la plante déclenche une réponse immunitaire active en deux couches :
La PTI (Pattern-Triggered Immunity) — les cellules végétales possèdent des récepteurs membranaires (PRR, Pattern Recognition Receptors) qui reconnaissent des molécules caractéristiques des microorganismes (les PAMP ou MAMP — Pathogen-Associated Molecular Patterns). Par exemple, la flagelline (protéine du flagelle bactérien) est reconnue par le récepteur FLS2 d’Arabidopsis. Cette reconnaissance déclenche une cascade de défenses : production de ROS, renforcement de la paroi cellulaire par dépôt de callose, synthèse d’enzymes de défense (chitinases, glucanases), production de phytoalexines.
L’ETI (Effector-Triggered Immunity) — les pathogènes virulents injectent des protéines effectrices dans les cellules végétales pour supprimer la PTI. En réponse, les plantes ont évolué des protéines de résistance intracellulaires (protéines R, souvent des NLR — Nucleotide-binding Leucine-Rich Repeat) qui reconnaissent directement ou indirectement ces effecteurs. L’ETI est une réponse plus forte que la PTI et culmine souvent dans la réaction hypersensible (HR) : les cellules infectées et les cellules voisines s’autodétruisent (mort cellulaire programmée), privant le pathogène de tissu vivant. Les petites taches nécrotiques visibles sur les feuilles de nombreuses plantes — les « points de résistance » — sont souvent les cicatrices de réactions hypersensibles réussies.
La résistance systémique acquise
Après une infection localisée, la plante développe une résistance généralisée contre un large spectre de pathogènes — la résistance systémique acquise (SAR, Systemic Acquired Resistance). Le signal mobile est l’acide salicylique, qui se propage via le phloème depuis le site d’infection vers les tissus distants. Dans les tissus non infectés, l’acide salicylique induit l’expression de gènes codant pour des protéines PR (Pathogenesis-Related) — chitinases, glucanases, thaumatines, défensines — qui confèrent une résistance préventive.
La SAR est l’équivalent végétal de la vaccination — une primo-infection confère une protection durable contre les infections futures. Et l’acide salicylique, l’hormone clé de cette immunité végétale, est le précurseur direct de l’aspirine que les humains utilisent pour lutter contre l’inflammation — un parallèle frappant entre la médecine végétale et la médecine humaine.
Résister à la compétition — allélopathie et stratégies de croissance
La compétition pour la lumière, l’eau et les nutriments minéraux est la pression sélective la plus constante dans la vie d’une plante. Certaines espèces ont développé une arme chimique contre leurs concurrentes : l’allélopathie — l’émission de substances qui inhibent la germination ou la croissance des plantes voisines.
L’exemple le plus célèbre est le noyer (Juglans regia), dont les racines, les feuilles et les coques de noix libèrent de la juglone (5-hydroxy-1,4-naphthoquinone), un composé qui inhibe la respiration mitochondriale des plantes sensibles. La zone d’inhibition peut s’étendre à plusieurs mètres autour du tronc — les jardiniers savent qu’il est difficile de faire pousser quoi que ce soit sous un noyer.
D’autres exemples d’allélopathie :
— l’absinthe (Artemisia absinthium) libère de l’absinthine et des sesquiterpènes qui inhibent la germination des graines dans son voisinage ;
— les eucalyptus (Eucalyptus spp.) libèrent des monoterpènes (cinéol, α-pinène) et des composés phénoliques via leurs feuilles en décomposition, inhibant la végétation du sous-bois ;
— la renouée du Japon (Reynoutria japonica), espèce envahissante redoutable, libère des stilbènes (resvératrol et ses dérivés) et des catéchines par ses rhizomes, supprimant la végétation indigène — une allélopathie qui contribue à son succès invasif.
En phytothérapie, les composés allélopathiques sont parfois les mêmes que les principes actifs médicinaux. La juglone du noyer est antifongique et antiparasitaire (utilisée traditionnellement contre les parasites intestinaux et les mycoses cutanées). L’absinthine de l’absinthe est un amer digestif puissant. Le cinéol de l’eucalyptus est un expectorant majeur. L’adaptation écologique de la plante est la source directe de son activité thérapeutique.
Les plantes myrmécophiles — l’alliance avec les fourmis
Certaines plantes ont développé une stratégie de défense radicalement différente : au lieu de produire des armes chimiques, elles recrutent des gardes du corps. Les plantes myrmécophiles offrent le gîte et le couvert aux fourmis, qui en retour défendent la plante contre les herbivores.
L’exemple classique est celui des acacias myrmécophytes d’Amérique centrale (Vachellia cornigera, anciennement Acacia cornigera). La plante fournit aux fourmis Pseudomyrmex ferruginea :
— un logement : les épines creuses et renflées (domaties) abritent la colonie ;
— une nourriture protéique : les corpuscules de Belt (petits organes à l’extrémité des folioles) sont riches en protéines et en lipides ;
— une nourriture sucrée : les nectaires extrafloraux (à la base des pétioles) sécrètent un nectar sucré.
En échange, les fourmis attaquent férocement tout herbivore qui touche la plante — insecte, mammifère, même l’humain qui s’y frotte. Elles vont jusqu’à détruire les plantules d’espèces concurrentes qui germent sous la canopée de leur acacia. Les expériences de Daniel Janzen dans les années 1960 ont montré que les acacias privés de leurs fourmis sont défoliés en quelques semaines et meurent en moins d’un an.
Ce mutualisme illustre un principe général : la défense d’une plante n’est pas nécessairement chimique — elle peut être écologique, fondée sur des interactions avec d’autres organismes. Les nectaires extrafloraux, présents chez des centaines d’espèces (pivoine, cerisier, coton, passiflore, sureau), attirent les fourmis et d’autres prédateurs d’herbivores, offrant une protection indirecte.
Convergence évolutive — quand des plantes non apparentées trouvent les mêmes solutions
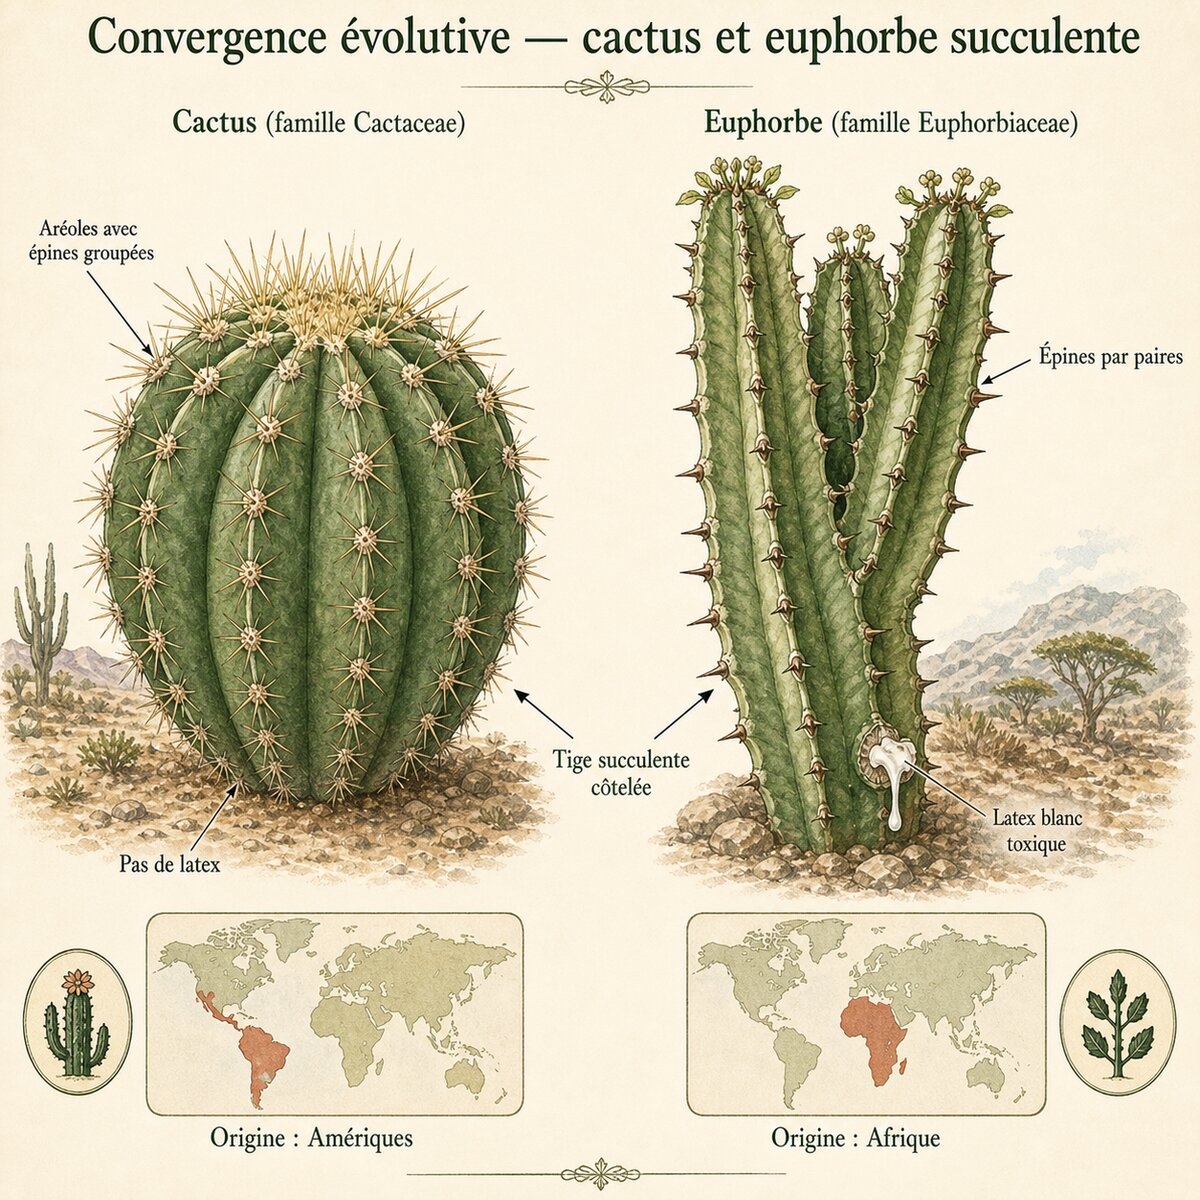
L’un des phénomènes les plus frappants de l’évolution végétale est la convergence évolutive — le fait que des espèces non apparentées, soumises aux mêmes pressions environnementales, développent indépendamment les mêmes adaptations.
Quelques exemples remarquables :
La succulence — les cactus (Cactaceae, Amérique), les euphorbes succulentes (Euphorbiaceae, Afrique), les aloès (Asphodelaceae, Afrique) et les sénécios géants (Asteraceae, montagnes tropicales africaines) ont développé indépendamment des tiges ou des feuilles charnues et un métabolisme CAM. Certaines euphorbes africaines ressemblent si parfaitement à des cactus américains que seul l’examen de la fleur permet de les distinguer.
La carnivorie — les plantes carnivores ont évolué indépendamment au moins cinq fois dans cinq ordres différents de plantes à fleurs. Les pièges à urne des népenthès (Nepenthaceae, Asie), des sarracénies (Sarraceniaceae, Amérique) et des céphalotus (Cephalotaceae, Australie) sont des convergences frappantes — des feuilles modifiées en réservoirs remplis de liquide digestif, conçus pour capturer et digérer les insectes. La carnivorie est une adaptation à la carence en azote des sols acides (tourbières, sols sableux lessivés) — les proies animales fournissent l’azote que le sol ne peut pas offrir.
La production de caféine — la caféine (alcaloïde purique) a évolué indépendamment chez les caféiers (Rubiaceae), les théiers (Theaceae), les cacaoyers (Malvaceae), les houx (Aquifoliaceae — le maté, Ilex paraguariensis) et les paullinia (Sapindaceae — le guarana). Cinq familles non apparentées ont « inventé » la même molécule pour la même fonction : défense contre les herbivores (amertume, toxicité pour les insectes) et inhibition de la germination des graines concurrentes (allélopathie).
La production d’acide salicylique — les dérivés salicylés sont présents chez les saules (Salicaceae), la reine-des-prés (Rosaceae), le bouleau (Betulaceae) et de nombreuses autres familles. L’acide salicylique est une hormone de défense universelle chez les plantes — sa fonction immunitaire est si fondamentale qu’elle a été conservée (ou réinventée) dans des lignées évolutives très éloignées.
La convergence évolutive est un outil puissant pour le phytothérapeute : elle signifie que des plantes de familles différentes, poussant sur des continents différents, peuvent contenir les mêmes classes de composés actifs si elles sont soumises aux mêmes pressions sélectives. L’ethnobotanique comparée le confirme — les pharmacopées traditionnelles de cultures qui n’ont jamais été en contact utilisent souvent les mêmes catégories de plantes pour les mêmes indications, parce que la convergence chimique produit les mêmes principes actifs dans des espèces non apparentées.
Synthèse — le stress comme moteur de la pharmacopée
L’ensemble des adaptations présentées dans cet article converge vers un constat simple et profond : la pharmacopée végétale est un sous-produit de la guerre de survie des plantes. Chaque molécule que le phytothérapeute utilise — chaque terpène, chaque polyphénol, chaque alcaloïde, chaque glucosinolate — a été forgée par la sélection naturelle non pas pour soigner l’humain, mais pour permettre à la plante de résister à un herbivore, un pathogène, un concurrent, une sécheresse, un excès de lumière ou un gel.
Cette perspective écologique a des conséquences pratiques directes :
— La qualité d’une drogue végétale dépend des conditions de croissance. Un stress modéré (sol pauvre, altitude, sécheresse modérée, pression d’herbivorie) stimule la production de métabolites secondaires. Les plantes sauvages ou de culture extensive, récoltées dans leur habitat naturel, sont généralement plus riches en principes actifs que les plantes de culture intensive irriguée et fertilisée.
— Le moment de la récolte est critique. La teneur en métabolites varie selon la saison (racines en automne, sommités fleuries au pic de floraison), l’heure de la journée (huiles essentielles maximales en début d’après-midi, quand le stress thermique est le plus élevé), et le stade phénologique (avant, pendant ou après la floraison).
— Le séchage et la préparation modifient le profil chimique. Le chamazulène de la camomille n’existe pas dans la plante fraîche — il se forme pendant la distillation. Les valépotriates de la valériane se dégradent au séchage — l’extrait sec n’a pas le même profil que la teinture de plante fraîche. Les glucosinolates du brocoli sont activés par la myrosinase uniquement si la cellule est broyée — la cuisson excessive inactive l’enzyme avant qu’elle n’ait agi.
— Le totum est plus qu’une somme de molécules. Les adaptations de la plante ne produisent pas des molécules isolées — elles produisent des mélanges fonctionnels. Les tannins de la reine-des-prés protègent l’estomac contre l’irritation des salicylés. Les mucilages de la guimauve accompagnent les iridoïdes anti-inflammatoires. Les monoterpènes volatils des Lamiacées potentialisent l’activité antibactérienne des phénols. C’est le totum — l’ensemble des composés de la plante, dans leurs proportions naturelles — qui constitue la drogue, et non la molécule isolée.
Les plantes n’ont pas eu besoin d’un laboratoire pour inventer la pharmacopée — elles ont eu 450 millions d’années d’évolution et une pression sélective implacable. Chaque molécule active est le résultat d’une course aux armements entre la plante et son environnement. Comprendre cette course, c’est comprendre la logique profonde de la phytothérapie — et c’est, au fond, ce que cette série de dix articles a tenté d’offrir : les clés botaniques pour lire la pharmacopée végétale non comme un catalogue de recettes, mais comme une bibliothèque de stratégies de survie.
Références
Taiz L., Zeiger E., Møller I.M., Murphy A. (2022). Plant Physiology and Development. 7e éd. Oxford : Oxford University Press. — Le manuel de référence en physiologie végétale, couvrant le stress abiotique et biotique.
Larcher W. (2003). Physiological Plant Ecology: Ecophysiology and Stress Physiology of Functional Groups. 4e éd. Berlin : Springer. — Traité d’écophysiologie couvrant les adaptations aux stress environnementaux.
Buchanan B.B., Gruissem W., Jones R.L. (2015). Biochemistry and Molecular Biology of Plants. 2e éd. Chichester : Wiley-Blackwell. — Référence en biochimie végétale, excellent sur les voies de signalisation du stress.
Wink M. (2010). Functions and Biotechnology of Plant Secondary Metabolites. Annual Plant Reviews, vol. 39. Oxford : Wiley-Blackwell. — Synthèse des fonctions écologiques des métabolites secondaires.
Karban R., Baldwin I.T. (1997). Induced Responses to Herbivory. Chicago : University of Chicago Press. — Ouvrage fondateur sur les défenses inductibles des plantes.
Jones J.D.G., Dangl J.L. (2006). The plant immune system. Nature, 444, 323-329. — Article de synthèse majeur sur l’immunité végétale (PTI et ETI).
Howe G.A., Jander G. (2008). Plant immunity to insect herbivores. Annual Review of Plant Biology, 59, 41-66. — Revue sur les mécanismes moléculaires de la défense anti-herbivore.
Dicke M., Baldwin I.T. (2010). The evolutionary context for herbivore-induced plant volatiles: beyond the ‘cry for help’. Trends in Plant Science, 15(3), 167-175. — Sur la communication inter-plantes et le recrutement de prédateurs.
Munns R., Tester M. (2008). Mechanisms of salinity tolerance. Annual Review of Plant Biology, 59, 651-681. — Revue sur les adaptations des halophytes.
Thomashow M.F. (1999). Plant cold acclimation: freezing tolerance genes and regulatory mechanisms. Annual Review of Plant Physiology and Plant Molecular Biology, 50, 571-599. — Article fondateur sur l’endurcissement au froid.
Close T.J. (1997). Dehydrins: a commonality in the response of plants to dehydration and low temperature. Physiologia Plantarum, 100(2), 291-296. — Sur les protéines cryoprotectrices.
Janzen D.H. (1966). Coevolution of mutualism between ants and acacias in Central America. Evolution, 20(3), 249-275. — L’étude classique sur le mutualisme fourmis-acacias.
Gershenzon J., Dudareva N. (2007). The function of terpene natural products in the natural world. Nature Chemical Biology, 3(7), 408-414. — Synthèse sur les fonctions écologiques des terpénoïdes.
Bruneton J. (2016). Pharmacognosie, Phytochimie, Plantes médicinales. 5e éd. Paris : Lavoisier Tec & Doc. — Le traité francophone de référence.