Le calcium est le minéral le plus abondant du corps humain : un adulte de 70 kg en contient environ 1 200 g, dont 99 % dans les os et les dents. La recommandation officielle — 900 mg à 1 200 mg par jour selon l’âge — est presque universellement associée aux produits laitiers dans l’esprit du public et dans les campagnes de santé publique. Pourtant, les deux tiers de l’humanité sont intolérants au lactose à l’âge adulte, les populations asiatiques consomment très peu de lait et ont des taux de fractures comparables ou inférieurs à ceux des Occidentaux, et les études épidémiologiques les plus récentes ne montrent aucune corrélation entre consommation de lait et réduction du risque de fracture — certaines suggèrent même une corrélation inverse. Le calcium est abondant dans le règne végétal : ortie, plantain, pissenlit, chénopode, amarante, brocoli, chou frisé, amandes, sésame, algues, eaux minérales calciques. Mais la teneur brute ne dit pas tout : la biodisponibilité du calcium végétal dépend de la présence d’oxalates, de phytates, de fibres et de la matrice alimentaire. Certaines plantes sauvages offrent un calcium plus biodisponible que le lait — d’autres, malgré une teneur élevée, n’en laissent absorber presque rien. Cette monographie démêle les faits des mythes, quantifie les sources végétales et sauvages, et propose des stratégies concrètes pour couvrir ses besoins en calcium sans aucun produit laitier.
II. Calcium et santé osseuse : ce que disent les études
III. Le paradoxe du lait
IV. Biodisponibilité : la clé oubliée
V. Oxalates et calcium : les faux amis
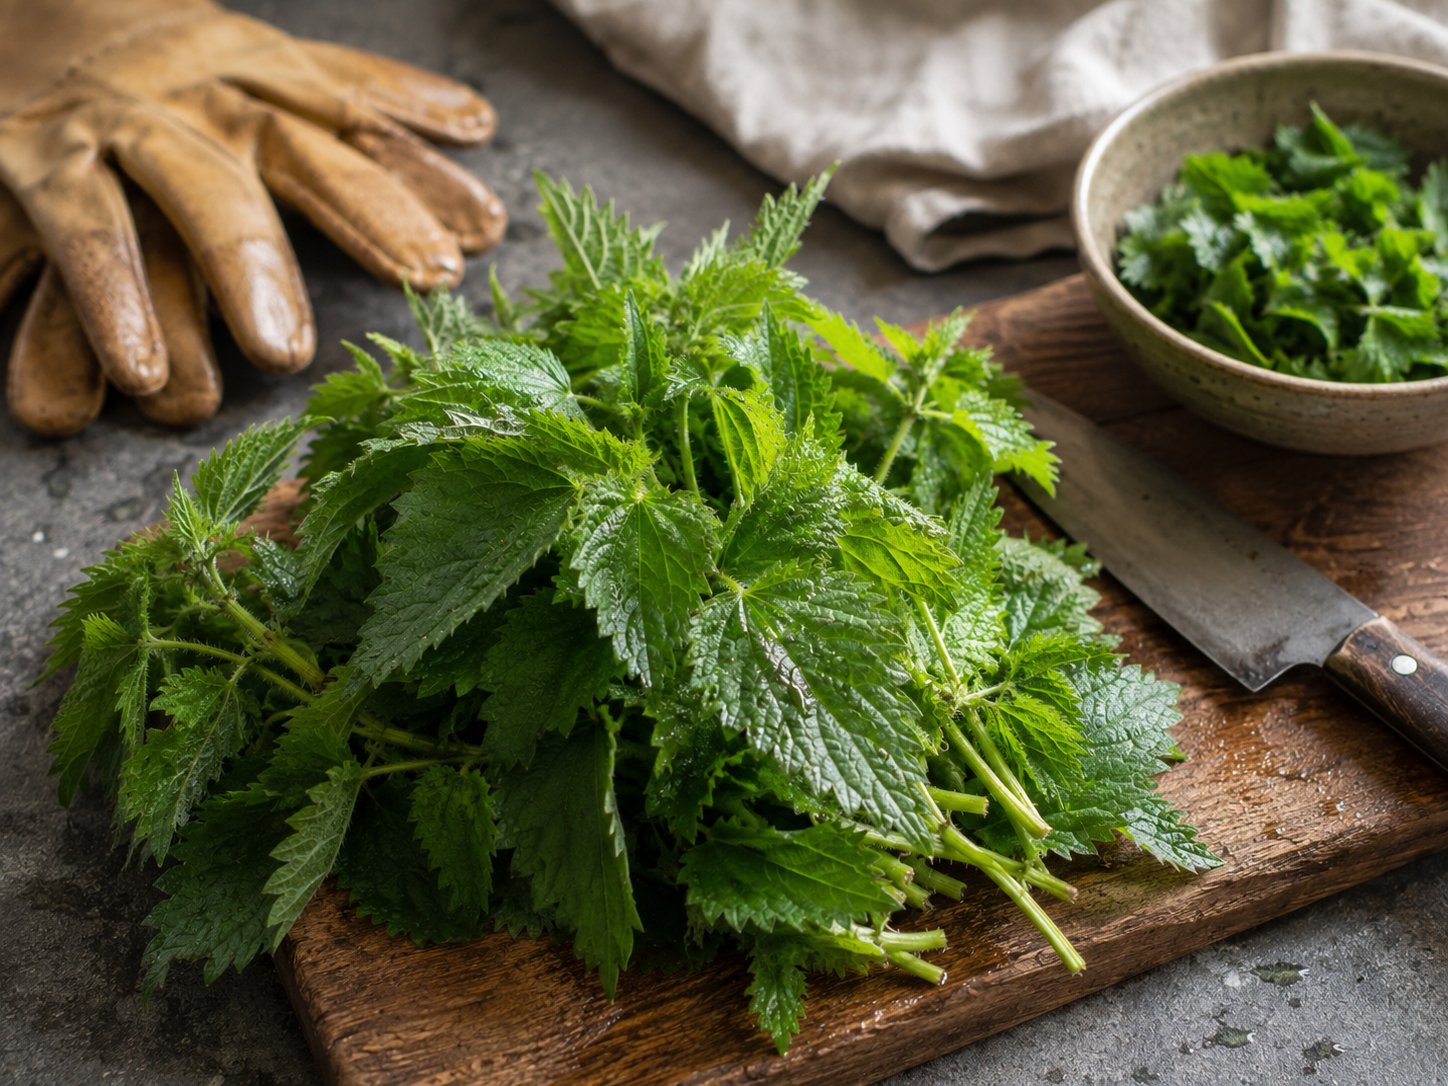
VI. L’ortie — championne du calcium sauvage
VII. Les Brassicacées : choux sauvages et cultivés
VIII. Plantain, pissenlit et autres feuilles sauvages
IX. Les algues : lithothame et wakamé
X. Graines et oléagineux
XI. Les eaux minérales calciques
XII. Vitamine D et absorption du calcium
XIII. Vitamine K2 : diriger le calcium vers les os
XIV. Magnésium, silice et cofacteurs
XV. Une journée à 900 mg sans lait
XVI. Modes de préparation et cuisson
XVII. Précautions et contre-indications
XVIII. Synthèse
I. Physiologie du calcium
Le calcium remplit deux fonctions distinctes dans l’organisme. Sa fonction structurale — constituant majeur de l’hydroxyapatite (Ca₁₀(PO₄)₆(OH)₂) qui forme la matrice minérale des os et des dents — mobilise 99 % du calcium corporel. Sa fonction métabolique — le 1 % restant, dissous dans le sang, les liquides interstitiels et le cytoplasme cellulaire — est tout aussi vitale : contraction musculaire (couplage excitation-contraction via le réticulum sarcoplasmique), transmission nerveuse (libération de neurotransmetteurs dans la fente synaptique), coagulation sanguine (facteur IV de la cascade de coagulation), signalisation cellulaire (second messager via la calmoduline), sécrétion hormonale (exocytose insulinique) et activité enzymatique (activation des protéases, des lipases et des phospholipases).
La calcémie — concentration plasmatique de calcium — est maintenue dans un intervalle étroit : 2,2 à 2,6 mmol/L (88 à 104 mg/L). Cette homéostasie est régulée par trois hormones. La parathormone (PTH), sécrétée par les glandes parathyroïdes en réponse à une baisse de la calcémie, stimule la résorption osseuse (libération de calcium osseux par les ostéoclastes), augmente la réabsorption rénale du calcium et active la synthèse rénale de calcitriol. Le calcitriol (1,25-dihydroxyvitamine D₃), forme active de la vitamine D, stimule l’absorption intestinale du calcium en induisant l’expression de la calbindine (protéine de transport du calcium dans les entérocytes). La calcitonine, sécrétée par les cellules C de la thyroïde en réponse à une hausse de la calcémie, inhibe la résorption osseuse — mais son rôle physiologique chez l’adulte est mineur.
L’absorption intestinale du calcium est le facteur limitant. Seuls 25 à 40 % du calcium alimentaire sont absorbés en moyenne — le reste est excrété dans les selles. L’absorption se fait par deux voies : une voie transcellulaire active (duodénum et jéjunum proximal), saturable, régulée par le calcitriol, qui domine à faible apport calcique ; et une voie paracellulaire passive (tout l’intestin grêle et le côlon), non saturable, proportionnelle à la concentration luminale de calcium, qui domine à fort apport. La biodisponibilité du calcium dépend de la voie empruntée et de la présence d’inhibiteurs (oxalates, phytates) ou de facilitateurs (vitamine D, lactose, acides aminés, fructo-oligosaccharides) dans la lumière intestinale.
Le remodelage osseux est un processus continu : les ostéoclastes résorbent l’os ancien (libérant du calcium dans le sang) tandis que les ostéoblastes déposent de l’os nouveau (incorporant du calcium sanguin dans la matrice). Chez l’adulte jeune, formation et résorption s’équilibrent. Après 50 ans — et surtout après la ménopause chez la femme (chute des œstrogènes protecteurs de l’os) — la résorption dépasse la formation : c’est l’ostéoporose. Le calcium alimentaire ne peut pas, à lui seul, prévenir l’ostéoporose — mais un apport insuffisant accélère la perte osseuse en forçant l’organisme à puiser dans ses réserves squelettiques via la PTH.
II. Calcium et santé osseuse : ce que disent les études
La relation entre apport calcique et risque de fracture est beaucoup moins linéaire que ne le suggèrent les recommandations officielles. Plusieurs grandes études épidémiologiques ont ébranlé le dogme « plus de calcium = os plus solides ».
La Nurses’ Health Study (Harvard, 72 337 femmes suivies pendant 18 ans, Feskanich et al., 1997) n’a trouvé aucune réduction du risque de fracture de hanche chez les femmes consommant plus de 700 mg de calcium par jour par rapport à celles consommant moins de 400 mg. Les femmes buvant plus de 2 verres de lait par jour avaient un risque de fracture identique à celles n’en buvant pas.
L’étude suédoise de cohorte (Michaëlsson et al., 2014, BMJ, 61 433 femmes et 45 339 hommes suivis pendant 20 ans) a montré que les femmes consommant plus de 3 verres de lait par jour avaient un risque de fracture supérieur à celles consommant moins d’un verre, et un risque de mortalité toutes causes augmenté de 93 %. Les auteurs attribuent cet effet paradoxal au D-galactose, un sucre du lactose dont le métabolisme produit des espèces réactives de l’oxygène et des AGE (produits de glycation avancée) pro-inflammatoires et pro-oxydants — accélérant le vieillissement cellulaire et l’inflammation chronique.
La méta-analyse Cochrane (Avenell et al., 2014, 53 essais contrôlés randomisés) a conclu que la supplémentation en calcium seul ne réduisait pas significativement le risque de fracture chez les personnes âgées vivant en communauté. Seule la combinaison calcium + vitamine D montrait un bénéfice modeste chez les personnes institutionnalisées et carencées.
Le paradoxe du calcium est géographique : les pays à la plus forte consommation de produits laitiers (Scandinavie, Amérique du Nord) ont les taux de fracture de hanche les plus élevés au monde, tandis que les pays à faible consommation laitière (Japon, Chine, Afrique) ont les taux les plus bas. Ce paradoxe ne prouve pas que le lait cause les fractures — de nombreux facteurs confondants interviennent (latitude, vitamine D, activité physique, génétique, espérance de vie) — mais il démontre que la consommation de lait n’est ni nécessaire ni suffisante pour la santé osseuse.
Les facteurs protecteurs de la santé osseuse, au-delà du calcium, sont l’activité physique en charge (le stimulus mécanique est le plus puissant inducteur de formation osseuse), la vitamine D (absorption intestinale et minéralisation), la vitamine K2 (activation de l’ostéocalcine), le magnésium (cofacteur de la PTH et de la vitamine D), la silice (cross-linking du collagène osseux), les protéines (matrice collagénique de l’os), et l’absence d’inflammation chronique (les cytokines pro-inflammatoires activent les ostéoclastes).
III. Le paradoxe du lait
Le lait de vache contient environ 120 mg de calcium pour 100 mL, sous une forme bien absorbée (30 à 35 % de biodisponibilité). Un verre de 250 mL fournit donc environ 100 mg de calcium absorbable. C’est une source correcte — mais pas exceptionnelle, et pas irremplaçable.
Plusieurs problèmes limitent l’intérêt du lait comme source de calcium à long terme. L’intolérance au lactose touche 65 à 70 % de la population mondiale adulte — et jusqu’à 90 % dans certaines populations asiatiques et africaines. Elle résulte de la diminution physiologique de l’activité de la lactase intestinale après le sevrage, qui est la norme biologique chez les mammifères. La persistance de la lactase à l’âge adulte est une mutation récente (7 000 à 10 000 ans), sélectionnée dans les populations pastorales d’Europe du Nord et d’Afrique de l’Est. Les personnes intolérantes au lactose qui consomment du lait souffrent de ballonnements, de diarrhées et de douleurs abdominales — symptômes qui réduisent l’absorption intestinale globale de nutriments, calcium compris.
L’allergie aux protéines de lait de vache (caséine, bêta-lactoglobuline) touche 2 à 3 % des nourrissons et persiste chez certains adultes. Elle provoque des réactions immunitaires (IgE-médiées ou non) qui endommagent la muqueuse intestinale et réduisent l’absorption minérale.
La charge acide des protéines animales du lait (caséine riche en acides aminés soufrés — méthionine, cystéine) génère des ions H⁺ lors du métabolisme, que l’organisme neutralise en partie par la résorption osseuse (libération de phosphate et de carbonate de calcium tampons). Cette hypothèse acido-basique, proposée par Wachman et Bernstein dès 1968, reste débattue : les études récentes suggèrent que l’effet est réel mais modeste, et que les protéines stimulent aussi la production d’IGF-1 (facteur de croissance ostéoanabolique). Le bilan net sur l’os est donc incertain.
Le phosphore du lait (environ 90 mg pour 100 mL) n’est pas un problème en soi — le ratio calcium/phosphore du lait (1,3:1) est favorable. Mais l’excès de phosphore dans l’alimentation moderne (additifs phosphatés dans les sodas, la charcuterie, les fromages fondus) stimule la sécrétion de PTH et la résorption osseuse.
Les contaminants potentiels du lait industriel — résidus d’antibiotiques, hormones de croissance (rBGH, interdit en Europe mais utilisé aux États-Unis), pesticides liposolubles concentrés dans la matière grasse, dioxines — sont des préoccupations légitimes qui dépassent le cadre de cette monographie mais justifient la recherche d’alternatives.
En résumé, le lait est une source de calcium parmi d’autres, ni indispensable ni magique. Les civilisations qui n’en consomment pas ont développé d’autres stratégies calciques — toutes basées sur les végétaux.
IV. Biodisponibilité : la clé oubliée
La teneur en calcium d’un aliment ne dit presque rien sur la quantité réellement absorbée. La biodisponibilité — pourcentage du calcium ingéré qui traverse la barrière intestinale et atteint la circulation sanguine — varie de 5 % (épinard) à 65 % (chou frisé), un facteur 13 entre les extrêmes.
Le concept clé est celui de calcium absorbable par portion. C’est le produit de la teneur en calcium par la biodisponibilité, appliqué à une portion réaliste. Exemples : le lait contient 120 mg/100 mL avec 32 % de biodisponibilité, soit 38 mg absorbables par 100 mL. Le chou frisé contient 150 mg/100 g avec 49 % de biodisponibilité, soit 74 mg absorbables par 100 g — presque le double du lait. L’épinard contient 100 mg/100 g mais seulement 5 % de biodisponibilité (oxalates), soit 5 mg absorbables par 100 g — vingt fois moins que le lait malgré une teneur brute comparable.
Les facteurs qui réduisent la biodisponibilité du calcium sont les suivants. Les oxalates (acide oxalique et ses sels) forment avec le calcium de l’oxalate de calcium insoluble et non absorbable dans la lumière intestinale. L’épinard (800 mg d’oxalates/100 g), l’oseille (700 mg), la rhubarbe (600 mg), la bette (500 mg), le pourpier (400 mg) et le chénopode (300 mg) sont les principaux pièges. Les phytates (acide phytique, inositol hexaphosphate) forment des complexes insolubles avec le calcium, le fer, le zinc et le magnésium. Ils sont concentrés dans les enveloppes des céréales complètes, les légumineuses non fermentées et les graines oléagineuses. Les fibres insolubles (cellulose, lignine) peuvent réduire modestement l’absorption calcique en accélérant le transit et en piégeant les minéraux dans la matrice fibreuse.
Les facteurs qui augmentent la biodisponibilité sont la vitamine D (induction de la calbindine intestinale — le facteur le plus puissant), les fructo-oligosaccharides et l’inuline (fermentés en butyrate dans le côlon, qui abaisse le pH colique et augmente la solubilité du calcium — l’absorption colique du calcium peut représenter 10 à 15 % de l’absorption totale), les acides organiques (acide citrique, acide malique, acide lactique — qui chélatent le calcium et le maintiennent en solution), le lactose (effet spécifique au lait, probablement via la voie paracellulaire), et le fractionnement des prises (la voie transcellulaire active est saturable — 3 prises de 300 mg sont mieux absorbées qu’une seule prise de 900 mg).
V. Oxalates et calcium : les faux amis
La confusion entre teneur brute et calcium biodisponible est la source d’erreur la plus courante en nutrition végétale. Certains tableaux nutritionnels affichent l’épinard comme « riche en calcium » (100 mg/100 g) — mais 95 % de ce calcium est complexé sous forme d’oxalate de calcium cristallin, insoluble et inabsorbable. Manger 1 kg d’épinards fournit autant de calcium absorbable que boire 50 mL de lait.
Le problème est plus pernicieux encore : les oxalates alimentaires ne se contentent pas de séquestrer le calcium de l’aliment qui les contient — ils peuvent aussi piéger le calcium des autres aliments consommés au même repas. Une salade d’épinard arrosée d’une sauce au sésame (riche en calcium) verra une partie du calcium du sésame complexé par les oxalates de l’épinard. C’est pourquoi les aliments très riches en oxalates doivent être consommés séparément des sources de calcium — ou traités pour réduire leur teneur en oxalates.
Les méthodes de réduction des oxalates sont les suivantes. La cuisson à l’eau (blanchiment) réduit les oxalates solubles de 30 à 87 % selon les études (Chai & Liebman, 2005) — les oxalates solubles passent dans l’eau de cuisson, qu’il faut jeter. Les oxalates insolubles (déjà cristallisés avec le calcium) ne sont pas affectés. La lactofermentation réduit les oxalates totaux de 30 à 50 % en quelques semaines (les bactéries lactiques, notamment Lactobacillus et Oxalobacter formigenes, dégradent l’acide oxalique). Le trempage préalable (12 à 24 heures dans l’eau froide, puis rinçage) réduit les oxalates solubles de 20 à 40 %.
Les plantes sauvages se répartissent en deux catégories nettes : les sources fiables de calcium (faibles en oxalates : ortie, plantain, chou sauvage, trèfle, achillée, mauve, lierre terrestre, lamier blanc) et les faux amis (riches en oxalates : oseille, chénopode, pourpier, épinard sauvage, patience, rumex). Les premières fournissent du calcium biodisponible ; les secondes, malgré leur teneur brute élevée, n’en fournissent presque pas — et peuvent même réduire l’absorption du calcium des autres aliments du repas.
Le ratio oxalate/calcium est l’indicateur le plus utile : un ratio inférieur à 2,5 indique une bonne biodisponibilité du calcium ; un ratio supérieur à 5 indique que l’essentiel du calcium est piégé. L’ortie a un ratio d’environ 1,5 ; l’épinard, d’environ 12 ; l’oseille, d’environ 25.
VI. L’ortie — championne du calcium sauvage
L’ortie (Urtica dioica) est la source de calcium la plus intéressante parmi les plantes sauvages européennes, à la fois par sa teneur brute et par sa biodisponibilité.
Les feuilles d’ortie séchées contiennent 480 à 600 mg de calcium pour 100 g — davantage que la plupart des fromages à pâte dure (emmental : 970 mg/100 g, mais portion habituelle de 30 g = 290 mg ; ortie séchée en poudre, portion de 10 g = 48 à 60 mg, certes moins en absolu mais consommable quotidiennement sans limite). Les feuilles fraîches contiennent 50 à 80 mg de calcium pour 100 g — comparable au lait (120 mg/100 mL) mais en portion plus facilement cumulable (une soupe d’ortie utilise 200 à 300 g de feuilles fraîches).
La biodisponibilité du calcium de l’ortie est estimée à 30 à 40 % d’après les études disponibles — comparable à celle du lait (32 %) et nettement supérieure à celle de l’épinard (5 %). Cela s’explique par la faible teneur en oxalates de l’ortie (moins de 50 mg/100 g de feuilles fraîches, contre 800 mg pour l’épinard) et par la présence d’acides organiques (acide malique, acide citrique) qui maintiennent le calcium en solution dans la lumière intestinale.
L’ortie fournit aussi les cofacteurs nécessaires à l’utilisation du calcium par l’os : magnésium (60 à 80 mg/100 g sec — cofacteur de la PTH et de la conversion de la vitamine D en calcitriol), silice (1 à 4 % de la masse sèche — l’ortie est l’une des plantes les plus riches en silice ; la silice stimule la synthèse de collagène de type I et le cross-linking des fibres de collagène dans la matrice osseuse), bore (oligo-élément qui réduit l’excrétion urinaire de calcium et de magnésium), vitamine K1 (précurseur de K2 par la flore intestinale, nécessaire à l’activation de l’ostéocalcine), et fer (4 mg/100 g frais — le fer participe à l’hydroxylation de la proline et de la lysine dans le collagène osseux).
En pratique, une soupe d’ortie quotidienne préparée avec 250 g de feuilles fraîches fournit environ 150 à 200 mg de calcium brut, dont 50 à 80 mg absorbables — soit l’équivalent d’un verre de lait. Trois cuillerées à café de poudre d’ortie (15 g de feuilles séchées) saupoudrées sur les plats au cours de la journée fournissent 70 à 90 mg de calcium brut, dont 25 à 35 mg absorbables. Cumulés avec les autres sources végétales de la journée, ces apports couvrent une part significative des besoins.
En tisane départ à froid calcique : placer 4 cuillerées à soupe de feuilles d’ortie séchées dans un litre d’eau froide, monter à frémissement, couper le feu, infuser 15 minutes couvert. Ajouter une pincée de prêle des champs (Equisetum arvense, riche en silice) et quelques feuilles de menthe pour le goût. Le calcium passe partiellement dans l’infusion — environ 20 à 40 mg par litre — sous une forme ionique directement absorbable.
VII. Les Brassicacées : choux sauvages et cultivés
La famille des Brassicacées (ex-Crucifères) est la famille végétale dont le calcium est le plus biodisponible — supérieur même à celui du lait. Le chou frisé (kale) est le champion : 150 mg de calcium pour 100 g avec 49 % de biodisponibilité, soit 74 mg absorbables par 100 g — contre 38 mg absorbables pour 100 mL de lait. Le brocoli : 47 mg/100 g avec 52 % de biodisponibilité = 24 mg absorbables. Le chou chinois (pak-choï) : 105 mg/100 g avec 54 % de biodisponibilité = 57 mg absorbables. Le navet (feuilles) : 190 mg/100 g avec 52 % de biodisponibilité = 99 mg absorbables — la meilleure source de calcium absorbable du règne végétal, portion pour portion.
La haute biodisponibilité du calcium des Brassicacées s’explique par leur faible teneur en oxalates (20 à 40 mg/100 g, contre 800 mg pour l’épinard) et par la présence de glucosinolates dont les produits d’hydrolyse (isothiocyanates) pourraient faciliter le transport paracellulaire du calcium — hypothèse encore à confirmer.
Parmi les Brassicacées sauvages, plusieurs espèces sont d’excellentes sources de calcium. La cardamine des prés (Cardamine pratensis) — petite plante à fleurs lilas des prairies humides, feuilles pennées à folioles arrondies — contient environ 120 mg de calcium pour 100 g avec une biodisponibilité probablement élevée (faible en oxalates). Ses feuilles ont un goût de cresson piquant et se mangent crues en salade. La capselle bourse-à-pasteur (Capsella bursa-pastoris), omniprésente dans les jardins et les terres cultivées, contient environ 200 mg de calcium pour 100 g — une des teneurs les plus élevées parmi les sauvages. La moutarde sauvage (Sinapis arvensis), la roquette sauvage (Diplotaxis tenuifolia) et l’alliaire (Alliaria petiolata, goût ail-moutarde) sont d’autres Brassicacées sauvages riches en calcium biodisponible.
La règle pratique est simple : toute Brassicacée est une bonne source de calcium. Sauvage ou cultivée, crue ou cuite, feuille ou tige — le calcium des Crucifères est toujours bien absorbé. Intégrer une portion de Brassicacées à chaque repas (salade de roquette au déjeuner, soupe de chou au dîner, cardamine sur les tartines du matin) est la stratégie la plus simple pour accumuler du calcium biodisponible.
VIII. Plantain, pissenlit et autres feuilles sauvages
Au-delà de l’ortie et des Brassicacées, plusieurs plantes sauvages communes fournissent un calcium correctement biodisponible.
Le plantain lancéolé (Plantago lanceolata) contient 180 à 250 mg de calcium pour 100 g de feuilles sèches, avec une teneur en oxalates faible (40 à 60 mg/100 g). Sa biodisponibilité calcique, bien que non mesurée directement, est estimée à 25 à 35 % sur la base de son ratio oxalate/calcium favorable (inférieur à 2). Les jeunes feuilles se mangent crues, les plus âgées cuites (la nervure centrale durcit en vieillissant). Le grand plantain (Plantago major) a un profil similaire.
Le pissenlit (Taraxacum officinale) contient 180 à 190 mg de calcium pour 100 g de feuilles fraîches — une teneur remarquablement élevée pour un légume frais. Sa teneur en oxalates est modérée (40 à 100 mg/100 g selon les sources et le stade de croissance), donnant une biodisponibilité estimée à 20 à 30 %. Les jeunes rosettes printanières, avant floraison, sont les plus tendres et les moins amères. Les racines contiennent aussi du calcium (environ 100 mg/100 g) avec de l’inuline qui facilite l’absorption colique.
Le trèfle blanc (Trifolium repens) et le trèfle des prés (Trifolium pratense) contiennent 200 à 300 mg de calcium pour 100 g de feuilles sèches, avec des oxalates faibles. Les jeunes feuilles se consomment crues en petite quantité (goût doux, légèrement sucré) ou cuites en mélange avec d’autres feuilles sauvages. Les fleurs de trèfle se sèchent pour des tisanes calciques.
Le lamier blanc (Lamium album, « ortie blanche ») — Lamiacée ressemblant à l’ortie mais sans poils urticants — contient environ 150 mg de calcium pour 100 g de feuilles fraîches, avec des oxalates très faibles. Son goût est doux et légèrement champignonné. C’est un excellent substitut de l’ortie pour les timides.
Le lierre terrestre (Glechoma hederacea), autre Lamiacée des haies et sous-bois, contient environ 120 mg de calcium pour 100 g. Ses petites feuilles réniformes au goût aromatique et légèrement amer se consomment crues en salade ou en tisane.
La mauve sylvestre (Malva sylvestris) — feuilles et fleurs — contient 180 à 250 mg de calcium pour 100 g de feuilles sèches, avec des mucilages abondants et des oxalates faibles. Les mucilages pourraient faciliter l’absorption du calcium en formant un gel qui ralentit le transit et prolonge le temps de contact avec la muqueuse intestinale.
En revanche, les plantes sauvages suivantes sont de fausses sources de calcium malgré leur teneur brute élevée : l’oseille (Rumex acetosa, 44 mg Ca/100 g frais mais 700 mg d’oxalates — biodisponibilité calcique quasi nulle), le chénopode blanc (Chenopodium album, 300 mg Ca/100 g sec mais 300 mg d’oxalates — biodisponibilité réduite de moitié), le pourpier (Portulaca oleracea, excellent pour les oméga-3 mais 400 mg d’oxalates/100 g qui piègent son calcium). Ces plantes restent intéressantes pour d’autres nutriments, mais pas pour le calcium.
IX. Les algues : lithothame et wakamé
Les algues sont des sources de calcium exceptionnelles, trop souvent ignorées dans l’alimentation européenne. Le lithothame (Lithothamnium calcareum, syn. Phymatolithon calcareum) est une algue rouge calcaire qui forme des concrétions coralliennes dans les eaux froides de l’Atlantique Nord (côtes bretonnes, irlandaises, islandaises). Ce n’est pas une algue au sens culinaire habituel — c’est un squelette calcaire composé à 32 % de carbonate de calcium et à 3 % de carbonate de magnésium, avec des traces de 70 oligo-éléments (fer, manganèse, zinc, sélénium, bore, strontium). Le calcium du lithothame a une biodisponibilité de 40 à 50 %, supérieure à celle du carbonate de calcium synthétique (25 à 35 %), probablement grâce à sa structure microporeuse et à la présence synergique de magnésium et d’oligo-éléments.
Le lithothame se consomme en poudre (1 à 3 g par jour, soit 320 à 960 mg de calcium — une cuillerée à café rase suffit), saupoudrée sur les aliments, mélangée aux soupes ou ajoutée aux smoothies. Son goût est neutre à légèrement iodé. Il est disponible en magasins bio et en herboristeries. Un essai clinique (Adluri et al., 2010, Nutrition and Cancer) a montré que le lithothame réduisait la prolifération cellulaire dans les polypes coliques — effet protecteur potentiel indépendant du calcium.
Le wakamé (Undaria pinnatifida) est une algue brune comestible, traditionnelle au Japon (soupe miso) et désormais cultivée en Bretagne. Il contient 150 mg de calcium pour 100 g de poids frais (660 mg pour 100 g sec) avec des oxalates faibles, soit une biodisponibilité estimée à 30 à 40 %. Le wakamé est aussi riche en fucoxanthine (caroténoïde anti-inflammatoire et anti-obésité), en fucanes (polysaccharides sulfatés immunomodulateurs) et en iode (attention : 100 g de wakamé frais contiennent 150 à 300 µg d’iode, soit 100 à 200 % de l’apport journalier recommandé — ne pas dépasser 200 g par jour).
La dulse (Palmaria palmata), algue rouge atlantique, contient 50 à 80 mg de calcium pour 100 g frais (300 à 500 mg/100 g sec). Le nori (Porphyra spp.) contient 70 mg/100 g sec. Le kombu (Laminaria digitata) contient 80 à 120 mg/100 g sec mais est très riche en iode (risque thyroïdien en cas de consommation excessive).
Les algues d’eau douce — spiruline (Arthrospira platensis) et chlorelle (Chlorella vulgaris) — contiennent 120 mg et 220 mg de calcium pour 100 g sec respectivement, mais se consomment en quantités trop faibles (3 à 10 g/jour) pour contribuer significativement aux apports calciques.
X. Graines et oléagineux
Certaines graines et oléagineux sont des sources concentrées de calcium, mais leur biodisponibilité est variable en raison de la présence de phytates et d’oxalates.
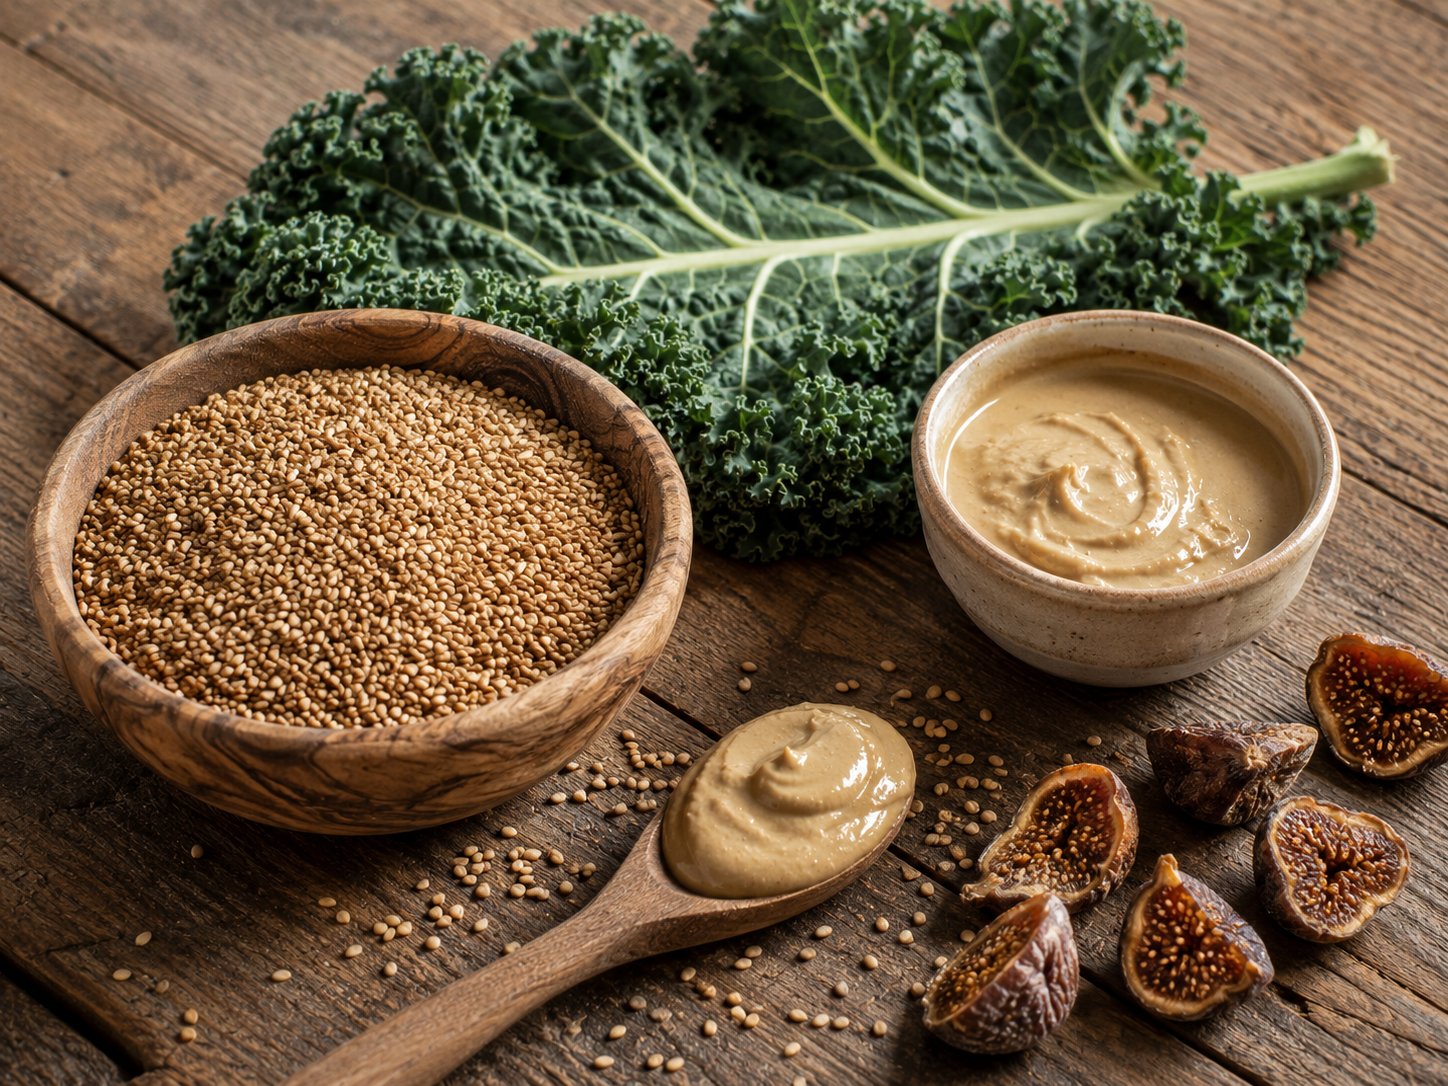
Le sésame complet (non décortiqué) est le champion absolu : 975 mg de calcium pour 100 g — huit fois plus que le lait. Mais le sésame contient aussi des oxalates (180 à 350 mg/100 g) et des phytates (5 à 6 g/100 g) qui réduisent la biodisponibilité à environ 20 à 25 %. Pour 100 g de sésame, on absorbe donc environ 200 à 250 mg de calcium — l’équivalent de 2 verres de lait. Le tahini (purée de sésame) est une forme plus digeste car le broyage rompt les parois cellulaires et libère le calcium. Le gomasio (sésame torréfié broyé avec du sel) est un condiment quotidien japonais qui apporte 50 à 100 mg de calcium absorbable par cuillerée à soupe. Le sésame décortiqué (blanc) ne contient que 60 mg de calcium pour 100 g — le calcium est concentré dans l’enveloppe.
Les amandes contiennent 270 mg de calcium pour 100 g, mais leur peau est riche en acide phytique (phytates) qui complexe le calcium et réduit sa biodisponibilité à 21 %. Pour optimiser l’apport calcique, il faut consommer des amandes émondées (mondées, sans peau) ou les tremper 12 heures dans l’eau froide puis retirer la peau (le trempage active aussi les phytases endogènes qui dégradent une partie des phytates résiduels). La purée d’amandes émondées est une alternative au beurre et au fromage à tartiner qui fournit du calcium biodisponible à chaque tartine.
Les noisettes contiennent 114 mg/100 g, les noix du Brésil 160 mg/100 g, les pistaches 105 mg/100 g, les graines de chia 631 mg/100 g (biodisponibilité réduite par les mucilages — trempage recommandé), les graines de lin 255 mg/100 g (broyage nécessaire, sinon les graines traversent l’intestin intactes).
Les légumineuses sont des sources modestes de calcium (haricots blancs : 150 mg/100 g sec ; pois chiches : 105 mg ; lentilles : 56 mg) mais le trempage et la cuisson réduisent leur teneur en phytates de 50 à 70 %, améliorant la biodisponibilité. Le tofu préparé avec du sulfate de calcium (nigari ou gypse) contient 350 mg/100 g avec 31 % de biodisponibilité — une excellente source. Le tempeh (soja fermenté) bénéficie de la dégradation des phytates par Rhizopus oligosporus, avec une biodisponibilité calcique améliorée.
XI. Les eaux minérales calciques
Les eaux minérales riches en calcium sont une source souvent méconnue mais remarquablement biodisponible. Le calcium dissous dans l’eau est sous forme ionique (Ca²⁺) ou de bicarbonate de calcium (Ca(HCO₃)₂) — des formes directement absorbables, sans matrice alimentaire, sans oxalates, sans phytates. La biodisponibilité du calcium de l’eau minérale est de 40 à 50 % — supérieure à celle du lait.
Les eaux les plus riches en calcium disponibles en France sont les suivantes. L’Hépar contient 555 mg de calcium par litre, plus 110 mg de magnésium — un litre d’Hépar fournit environ 250 mg de calcium absorbable, soit plus de 2 verres de lait. La Courmayeur contient 576 mg/L. La Contrex contient 486 mg/L. La Talians contient 596 mg/L. La Vittel contient 240 mg/L. Ces eaux sont plates (non gazeuses). Parmi les eaux gazeuses, la San Pellegrino contient 208 mg/L et la Badoit 190 mg/L.
Boire un litre et demi d’eau calcique par jour (Hépar, Courmayeur ou Contrex) fournit 350 à 430 mg de calcium absorbable — soit 35 à 45 % de l’apport recommandé, sans aucun effort alimentaire particulier. C’est la stratégie la plus simple et la plus passive pour compléter les apports calciques végétaux.
Les eaux calciques n’augmentent pas le risque de calculs rénaux — au contraire. Le calcium alimentaire (y compris celui de l’eau) se lie aux oxalates dans l’intestin, formant de l’oxalate de calcium insoluble qui est éliminé dans les selles. Cela réduit l’absorption intestinale des oxalates et donc leur excrétion urinaire — et les calculs rénaux d’oxalate de calcium sont principalement causés par l’excès d’oxalates urinaires, pas par l’excès de calcium urinaire. L’étude DASH (Curhan et al., 2004, JAMA) a montré que les régimes riches en calcium alimentaire (> 1 000 mg/jour) réduisaient le risque de calculs rénaux de 28 % par rapport aux régimes pauvres en calcium (< 600 mg/jour).
XII. Vitamine D et absorption du calcium
La vitamine D est le cofacteur le plus critique de l’absorption du calcium. Sans vitamine D suffisante, même un apport calcique de 1 500 mg/jour sera mal absorbé — la voie transcellulaire active (qui domine à apport calcique faible ou modéré) dépend entièrement de la calbindine intestinale, dont l’expression est induite par le calcitriol (forme active de la vitamine D).
La carence en vitamine D est endémique en Europe : 40 à 70 % de la population européenne a un taux de 25-hydroxyvitamine D sérique inférieur à 50 nmol/L (20 ng/mL), le seuil de suffisance. En hiver (octobre à mars), la synthèse cutanée de vitamine D est quasi nulle au-dessus de 45° de latitude Nord (tout le nord de la France, la Belgique, les Pays-Bas, l’Allemagne, la Scandinavie) — l’angle d’incidence des UVB est trop faible pour activer la conversion du 7-déhydrocholestérol en pré-vitamine D3 dans l’épiderme.
Les sources alimentaires de vitamine D sont limitées : poissons gras (saumon, hareng, maquereau : 10 à 20 µg/100 g), huile de foie de morue (250 µg/100 mL), jaune d’œuf (2 à 5 µg par jaune), champignons exposés aux UV (shiitake séché au soleil : 40 à 50 µg/100 g ; champignons de Paris exposés aux UVB : 10 à 20 µg/100 g). Le lichen Cladonia rangiferina (lichen des rennes) et Cetraria islandica (mousse d’Islande) contiennent de la vitamine D3 — fait exceptionnel pour un organisme non animal — et sont la base de suppléments végétaliens de vitamine D3.
Dans le cadre d’une alimentation sans lait enrichi en vitamine D, la supplémentation hivernale est quasi indispensable sous nos latitudes : 1 000 à 2 000 UI (25 à 50 µg) par jour d’octobre à mars, ou 800 à 1 000 UI toute l’année pour les personnes à peau foncée, obèses, âgées ou peu exposées au soleil. L’exposition solaire estivale (15 à 30 minutes par jour, bras et jambes découverts, sans crème solaire, entre 11h et 15h) est la source physiologique — une exposition modérée suffit, sans brûlure.
La synergie vitamine D + calcium est fondamentale : un apport calcique de 600 mg/jour avec un statut optimal en vitamine D (75-125 nmol/L de 25-OH-D) donne de meilleurs résultats osseux qu’un apport de 1 200 mg/jour avec une carence en vitamine D. Autrement dit, mieux vaut optimiser la vitamine D que d’augmenter le calcium brut.
XIII. Vitamine K2 : diriger le calcium vers les os
La vitamine K2 (ménaquinone) est le chauffeur routier du calcium : elle détermine où le calcium absorbé sera déposé. Sans vitamine K2 suffisante, le calcium peut se déposer dans les artères (calcification vasculaire, athérosclérose) et les reins (calculs) au lieu de se fixer dans les os et les dents — c’est le paradoxe du calcium : supplémenter en calcium sans K2 peut aggraver le risque cardiovasculaire tout en bénéficiant peu aux os.
Le mécanisme est le suivant. La vitamine K2 active par carboxylation (ajout d’un groupement γ-carboxyglutamique, Gla) deux protéines clés. L’ostéocalcine (ou bone Gla protein, BGP), sécrétée par les ostéoblastes, ne peut fixer le calcium sur la matrice osseuse d’hydroxyapatite que sous sa forme carboxylée — dépendante de K2. L’ostéocalcine non carboxylée (ucOC) est un marqueur de carence en K2. La Matrix Gla Protein (MGP), présente dans les parois artérielles, inhibe la calcification vasculaire — mais seulement sous sa forme carboxylée par K2. La MGP non carboxylée (dp-ucMGP) est un marqueur de risque cardiovasculaire.
Les deux principales formes de K2 alimentaire sont la MK-4 (ménaquinone-4, à courte chaîne, demi-vie courte de 6 à 8 heures, présente dans les produits animaux : foie, jaune d’œuf, beurre de vaches nourries à l’herbe) et la MK-7 (ménaquinone-7, à longue chaîne, demi-vie de 72 heures, plus efficace à dose égale, produite par la fermentation bactérienne). La meilleure source alimentaire de MK-7 est le nattō japonais (soja fermenté par Bacillus subtilis var. natto) : 1 000 à 1 100 µg de MK-7 pour 100 g — une portion de 30 g couvre largement les besoins quotidiens (45 à 200 µg selon les recommandations).
Dans une alimentation sans produits laitiers, les sources de K2 sont le nattō (de loin la meilleure), la choucroute et les légumes lactofermentés (les bactéries lactiques produisent de la MK-7 et de la MK-8 : 5 à 15 µg/100 g — modeste mais régulier), le miso (fermentation de soja : 10 à 30 µg/100 g), et les jaunes d’œufs de poules élevées en plein air (15 à 30 µg de MK-4 par jaune).
La vitamine K1 (phylloquinone), abondante dans les feuilles vertes (ortie : 500 µg/100 g frais ; chou frisé : 817 µg ; plantain : 300 µg environ ; épinard : 483 µg), est convertie en K2 (MK-4) par l’enzyme UBIAD1 dans les tissus périphériques — mais le taux de conversion est variable et souvent insuffisant. L’apport direct en K2 est préférable.
La stratégie optimale pour les os est donc : calcium biodisponible (plantes sauvages, Brassicacées, eau calcique) + vitamine D (soleil + supplémentation hivernale) + vitamine K2 (nattō, lactofermentations) + magnésium (ortie, noix, eau Hépar) + silice (ortie, prêle) + activité physique en charge.
XIV. Magnésium, silice et cofacteurs
Le calcium ne travaille jamais seul. Son métabolisme dépend d’un réseau de cofacteurs dont la carence est souvent plus limitante que celle du calcium lui-même.
Le magnésium est le cofacteur le plus critique après la vitamine D. Il intervient à trois niveaux : il est nécessaire à la conversion de la vitamine D en sa forme active (le calcitriol — les enzymes 25-hydroxylase hépatique et 1α-hydroxylase rénale sont magnésium-dépendantes), il module la sécrétion de PTH (l’hypomagnésémie provoque une résistance des parathyroïdes au calcium, perturbant l’homéostasie calcique), et il participe directement à la minéralisation osseuse (le magnésium est un constituant de la surface des cristaux d’hydroxyapatite, où il influence la taille et la stabilité des cristaux). La carence en magnésium est fréquente : 60 à 75 % des Européens n’atteignent pas l’apport recommandé (375 à 420 mg/jour).
Les meilleures sources végétales et sauvages de magnésium sont les graines de courge (535 mg/100 g), le cacao (500 mg), les amandes (270 mg), les noix de cajou (260 mg), les noix (160 mg), l’ortie séchée (860 mg/100 g — chiffre remarquable), l’eau Hépar (110 mg/L) et la Contrex (84 mg/L). Le magnésium du chocolat noir et des oléagineux est bien absorbé (30 à 40 %) ; celui des céréales complètes est partiellement complexé par les phytates.
La silice (dioxyde de silicium, SiO₂, et acide orthosilicique Si(OH)₄ soluble) est un cofacteur osseux méconnu mais important. Elle stimule la synthèse de collagène de type I par les ostéoblastes (le collagène représente 90 % de la matrice organique de l’os — le calcium ne se dépose que sur cette trame protéique), favorise le cross-linking des fibres de collagène (ponts entre chaînes polypeptidiques qui confèrent la résistance mécanique à l’os), et intervient dans les premières étapes de la calcification (nucléation de l’hydroxyapatite sur les fibres de collagène). L’étude Framingham Offspring (Jugdaohsingh et al., 2004, Journal of Bone and Mineral Research) a montré qu’un apport élevé en silice (> 40 mg/jour) était associé à une densité minérale osseuse plus élevée chez les hommes et les femmes préménopausées.
Les plantes les plus riches en silice sont la prêle des champs (Equisetum arvense : 5 à 8 % de silice dans la masse sèche — la plus forte concentration du règne végétal), l’ortie (1 à 4 %), le bambou (tabashir : 70 % de silice, mais ce n’est pas une plante européenne sauvage), le pissenlit et la paille d’avoine (Avena sativa). La silice est très peu absorbée sous forme cristalline (quartz) — elle doit être sous forme d’acide orthosilicique soluble, comme dans les tisanes de prêle et d’ortie (la décoction libère l’acide orthosilicique des structures végétales).
Le bore est un oligo-élément trace qui réduit l’excrétion urinaire de calcium et de magnésium de 25 à 40 % (Nielsen et al., 1987, FASEB Journal) et potentialise l’action de la vitamine D. Les sources : fruits (pommes, poires, raisins, prunes), légumineuses, noix et feuilles sauvages. L’apport optimal est de 3 à 6 mg/jour.
Le zinc est un cofacteur de l’enzyme alkaline phosphatase osseuse (ALP), nécessaire à la minéralisation. Le cuivre est nécessaire à la lysyl-oxydase, enzyme du cross-linking du collagène. Le manganèse est un cofacteur des glycosyltransférases impliquées dans la synthèse des protéoglycanes de la matrice osseuse. Ces trois oligo-éléments sont généralement bien couverts par une alimentation riche en plantes sauvages et en oléagineux.
XV. Une journée à 900 mg sans lait
Voici un exemple concret de journée alimentaire fournissant environ 900 mg de calcium absorbable, sans aucun produit laitier, en utilisant largement les plantes sauvages.
Petit déjeuner — Porridge d’avoine cuit dans du lait d’amande enrichi en calcium (120 mg/100 mL), garni d’une cuillerée à soupe de tahini (sésame complet : ~65 mg Ca absorbable), de figues séchées coupées (3 figues : ~50 mg Ca), et de poudre d’ortie (2 cuillerées à café, ~10 g : ~25 mg Ca absorbable). Un grand verre d’eau Hépar (250 mL : ~70 mg Ca absorbable). Total petit déjeuner : environ 240 mg de calcium absorbable.
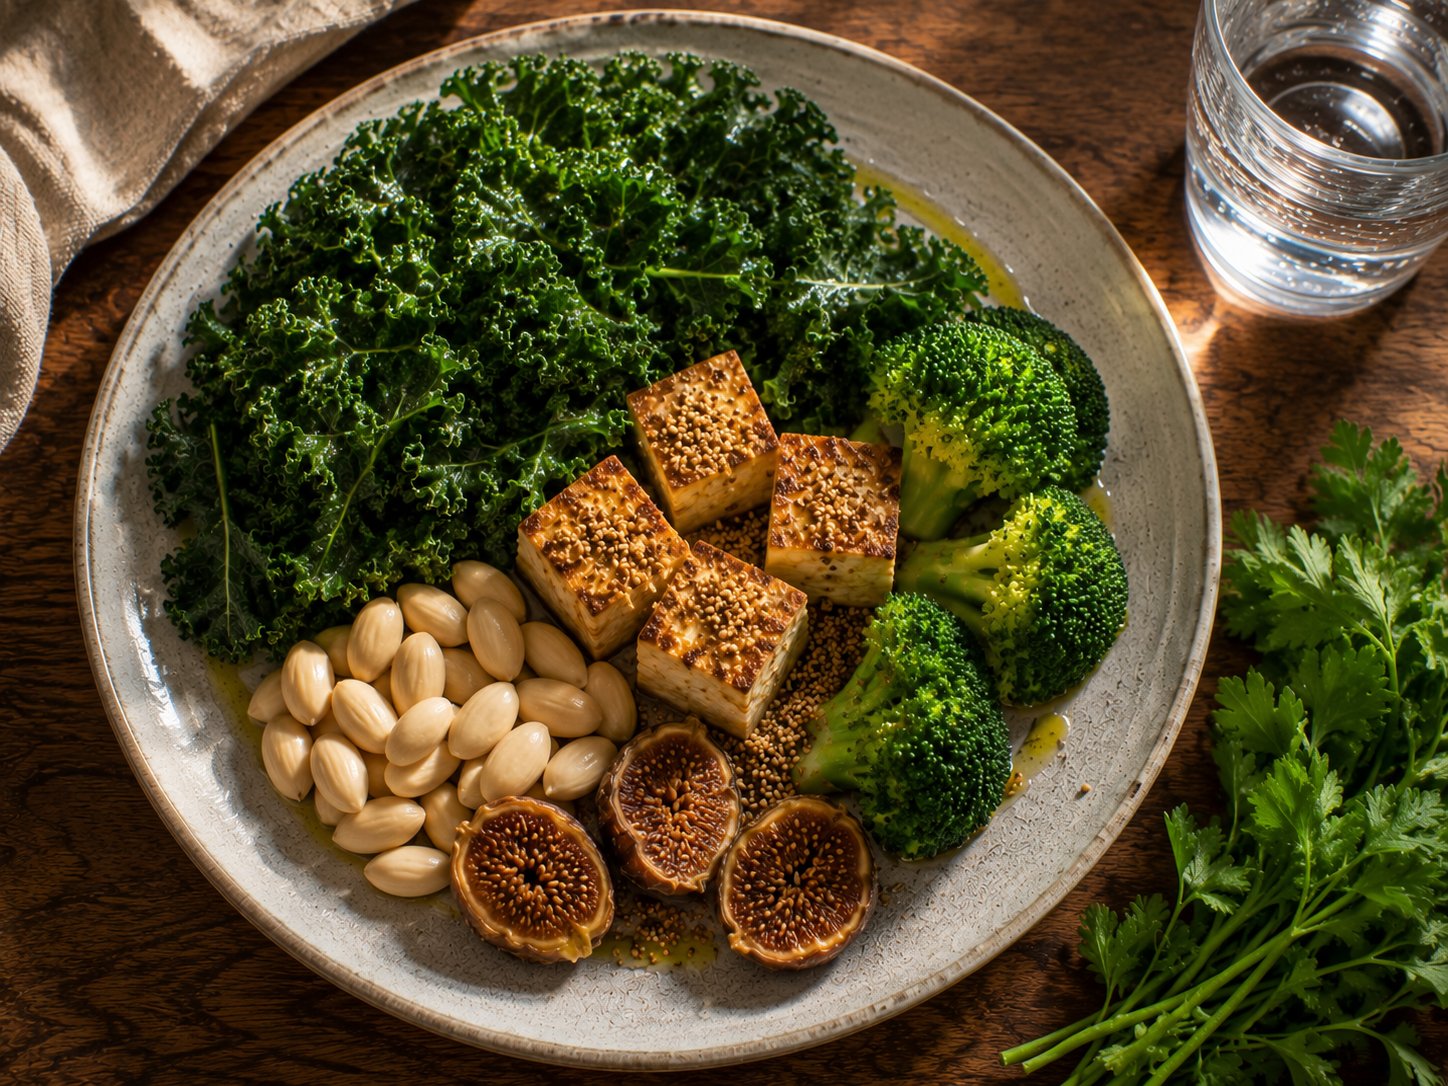
Déjeuner — Salade de roquette sauvage et de jeunes feuilles de pissenlit (150 g : ~50 mg Ca absorbable), avec du tofu au sulfate de calcium grillé (100 g : ~110 mg Ca absorbable), des amandes émondées effilées (20 g : ~15 mg Ca), et une vinaigrette à l’huile de cameline. En accompagnement, une soupe de chou frisé (200 g : ~150 mg Ca absorbable). Eau Hépar (500 mL : ~140 mg Ca absorbable). Total déjeuner : environ 460 mg de calcium absorbable.
En-cas — Une poignée de noisettes (30 g : ~10 mg Ca absorbable) et une orange (60 mg Ca, biodisponibilité ~30 % : ~18 mg). Total en-cas : environ 28 mg.
Dîner — Gratin de brocoli et de cardamine des prés (200 g total : ~60 mg Ca absorbable), saupoudré de gomasio (1 cuillerée à soupe : ~40 mg Ca absorbable). Salade de plantain et de lamier blanc (100 g : ~30 mg Ca absorbable). Eau Hépar (250 mL : ~70 mg Ca absorbable). Total dîner : environ 200 mg de calcium absorbable.
Tisane du soir — Ortie + prêle des champs + trèfle, départ à froid, 500 mL : ~15 mg Ca absorbable.
Total de la journée : environ 943 mg de calcium absorbable.
Ce calcul est conservateur — il ne compte pas le calcium des pâtes, du riz, du pain, des légumes d’accompagnement et des autres aliments qui contribuent chacun modestement mais qui s’additionnent. En pratique, une journée structurée autour des Brassicacées, de l’ortie, du sésame/tahini, du tofu et de l’eau Hépar dépasse facilement les 900 mg absorbables sans le moindre produit laitier.
Les clés : fractionner les apports (la voie transcellulaire est saturable — 3 à 4 prises valent mieux qu’une), associer une source de vitamine D (supplémentation ou exposition solaire), inclure de la vitamine K2 (nattō, lactofermentations), éviter de mélanger les sources calciques avec les aliments très riches en oxalates (oseille, épinard) au même repas, et boire une eau calcique plutôt qu’une eau pauvre en minéraux (eau du robinet : variable de 50 à 200 mg/L selon les régions — vérifier la composition locale).
XVI. Modes de préparation et cuisson
La manière dont on prépare les aliments influence la quantité de calcium réellement disponible. Quelques principes pratiques maximisent les apports.
Consommer le bouillon de cuisson. La cuisson à l’eau des feuilles vertes fait passer 20 à 40 % du calcium dans le bouillon. Si on jette l’eau de cuisson, on perd ce calcium. La solution : cuisiner sous forme de soupes (on consomme le bouillon), de ragoûts ou de gratins (l’eau de cuisson est incorporée). La soupe d’ortie est l’archétype du plat qui concentre 100 % du calcium de la plante — feuilles + bouillon.
Préparer des poudres de plantes séchées. Sécher les feuilles d’ortie, de plantain et de trèfle à l’ombre, puis les réduire en poudre fine au moulin. Cette poudre concentre le calcium (480 mg/100 g pour l’ortie séchée) et peut être ajoutée à chaque repas : saupoudrée sur les salades, les soupes, les pâtes, les gratins, mélangée aux pâtes à crêpes ou à pain. Cinq à dix grammes par jour est un objectif réaliste et facile à atteindre.
Réduire les phytates par trempage et fermentation. Les graines, les légumineuses et les céréales complètes doivent être trempées 12 à 24 heures avant cuisson (activation des phytases endogènes qui dégradent les phytates — réduction de 30 à 70 %). Le levain naturel pour le pain dégrade 60 à 80 % des phytates de la farine en 12 à 24 heures de fermentation — le pain au levain est une bien meilleure source de minéraux que le pain à la levure chimique. La germination (24 à 72 heures) dégrade la quasi-totalité des phytates.
Acidifier les préparations. L’ajout de jus de citron, de vinaigre de sureau ou de vinaigre de cidre aux salades et aux légumes cuits augmente la solubilité du calcium (le calcium est plus soluble en milieu acide qu’en milieu neutre) et stabilise les polyphénols. La cuisson des os dans un bouillon acidifié au vinaigre (bouillon d’os traditionnel) libère le calcium de l’hydroxyapatite — pertinent pour les non-végétaliens.
Utiliser le gomasio quotidiennement. Le gomasio (sésame complet torréfié et broyé avec 5 à 10 % de sel marin) est un condiment japonais qui remplace le sel de table tout en fournissant du calcium, du magnésium, du zinc et des acides gras insaturés. Une cuillerée à soupe de gomasio par jour (10 g) apporte environ 100 mg de calcium brut, dont 20 à 25 mg absorbables.
Préparer des tisanes calciques départ à froid. Les tisanes de plantes riches en calcium (ortie, prêle, trèfle, mauve) libèrent une partie de leur calcium sous forme ionique dans l’eau de tisane — une forme directement absorbable, sans matrice alimentaire ni inhibiteurs. Boire 1 à 1,5 litre de tisane calcique par jour contribue à l’apport total de manière passive et agréable.
XVII. Précautions et contre-indications
L’alimentation riche en calcium végétal est globalement très sûre et ne présente pas les risques associés à la supplémentation calcique en comprimés (risque cardiovasculaire accru signalé par certaines méta-analyses pour les suppléments de carbonate de calcium > 1 000 mg/jour — Bolland et al., 2010, BMJ). Le calcium alimentaire, quelle que soit sa source, n’est pas associé à ce risque.
L’excès de calcium (> 2 500 mg/jour sur une longue période) est cependant possible, surtout en combinant eau très calcique + suppléments + alimentation riche. Il peut provoquer une hypercalcémie (constipation, nausées, confusion, calculs rénaux, calcification ectopique) et réduire l’absorption du fer et du zinc (compétition pour les transporteurs intestinaux DMT1 et ZIP4). Le risque est faible avec une alimentation exclusivement végétale — il concerne surtout les personnes qui cumulent suppléments et alimentation riche.
Les personnes souffrant de calculs rénaux d’oxalate de calcium doivent maintenir un apport calcique normal (800 à 1 000 mg/jour — un apport trop faible augmente paradoxalement le risque de calculs en augmentant l’absorption intestinale des oxalates) mais éviter les aliments très riches en oxalates (oseille, épinard, rhubarbe, chénopode, pourpier) et boire abondamment pour diluer les urines.
Les personnes sous digitaliques (digoxine) doivent éviter les variations brutales d’apport calcique, car le calcium potentialise la toxicité des digitaliques. Les personnes sous tétracyclines ou quinolones (antibiotiques) doivent espacer la prise de calcium d’au moins 2 heures, car le calcium forme des chélates avec ces molécules et réduit leur absorption.
Les personnes atteintes d’hyperparathyroïdie (production excessive de PTH, souvent par adénome parathyroïdien) ont déjà une calcémie élevée et ne doivent pas augmenter leur apport calcique sans avis médical.
L’insuffisance rénale chronique perturbe le métabolisme du calcium, du phosphore et de la vitamine D — les recommandations calciques standard ne s’appliquent pas. Un suivi néphrologique est indispensable.
La supplémentation en vitamine D à forte dose (> 4 000 UI/jour) sans surveillance biologique (dosage de la 25-OH-D sérique) peut provoquer une hypervitaminose D avec hypercalcémie — toxicité rare mais grave. Se limiter à 1 000-2 000 UI/jour en automne-hiver sans avis médical.
XVIII. Synthèse
Le calcium est un minéral essentiel dont les besoins sont parfaitement couverts sans aucun produit laitier — l’espèce humaine a vécu sans lait animal pendant plus de 99 % de son histoire évolutive, et les deux tiers de l’humanité actuelle ne consomment pas ou peu de lait sans souffrir de carence calcique ni d’épidémie d’ostéoporose.
Les sources de calcium les plus fiables dans une alimentation sans lait sont, par ordre de priorité pratique : les Brassicacées sauvages et cultivées (chou frisé, roquette, cardamine, alliaire — biodisponibilité 49-54 %, supérieure au lait), l’ortie (480-600 mg/100 g sec, biodisponibilité 30-40 %, avec magnésium, silice et fer en prime), le sésame complet et le tahini (975 mg/100 g, biodisponibilité ~22 %), le tofu au sulfate de calcium (350 mg/100 g, biodisponibilité 31 %), les eaux minérales calciques (Hépar, Courmayeur, Contrex : 480-576 mg/L, biodisponibilité 40-50 % — la stratégie la plus passive), le lithothame en poudre (32 % de calcium, biodisponibilité 40-50 %), et les feuilles sauvages variées (plantain, pissenlit, trèfle, lamier, mauve — 120-250 mg/100 g sec, biodisponibilité 20-35 %).
Mais le calcium n’est que la brique. Les cofacteurs sont tout aussi importants : vitamine D (soleil + supplémentation hivernale 1 000-2 000 UI/jour — indispensable à l’absorption intestinale), vitamine K2 (nattō, lactofermentations, jaunes d’œufs — dirige le calcium vers les os et hors des artères), magnésium (ortie, noix, eau Hépar — cofacteur de la vitamine D et de la PTH), silice (prêle, ortie — cross-linking du collagène osseux), et activité physique en charge (le stimulus mécanique est le plus puissant inducteur de formation osseuse — aucun nutriment ne compense la sédentarité).
Les pièges à éviter : ne pas confondre teneur brute et biodisponibilité (l’épinard et l’oseille sont de fausses sources de calcium à cause de leurs oxalates), ne pas mélanger sources calciques et aliments riches en oxalates au même repas, ne pas oublier la vitamine D en hiver, ne pas se supplémenter en calcium en comprimés sans K2 (risque de calcification vasculaire), et ne pas croire que le calcium seul suffit à protéger les os (l’activité physique est plus importante que l’apport calcique au-delà du seuil minimal de 500-600 mg/jour).
L’alimentation sans lait, riche en plantes sauvages, en Brassicacées, en oléagineux et en eau calcique, ne demande aucun effort particulier ni aucune privation. Elle est plus riche en cofacteurs (magnésium, silice, vitamine K1, polyphénols), plus diversifiée, moins inflammatoire et plus proche de l’alimentation ancestrale que le régime lacté occidental. Les os humains se sont construits pendant deux millions d’années sans lait de vache — ils n’en ont pas besoin aujourd’hui.
Bibliographie
- Feskanich, D. et al. (1997). Milk, dietary calcium, and bone fractures in women: a 12-year prospective study. American Journal of Public Health, 87(6), 992-997.
- Michaëlsson, K. et al. (2014). Milk intake and risk of mortality and fractures in women and men: cohort studies. BMJ, 349, g6015.
- Avenell, A. et al. (2014). Vitamin D and vitamin D analogues for preventing fractures in post-menopausal women and older men. Cochrane Database of Systematic Reviews, (4), CD000227.
- Weaver, C. M. et al. (1999). Choices for achieving adequate dietary calcium with a vegetarian diet. American Journal of Clinical Nutrition, 70(3), 543S-548S.
- Heaney, R. P. & Weaver, C. M. (1990). Calcium absorption from kale. American Journal of Clinical Nutrition, 51(4), 656-657.
- Chai, W. & Liebman, M. (2005). Effect of different cooking methods on vegetable oxalate content. Journal of Agricultural and Food Chemistry, 53(8), 3027-3030.
- Jugdaohsingh, R. et al. (2004). Dietary silicon intake is positively associated with bone mineral density in men and premenopausal women of the Framingham Offspring cohort. Journal of Bone and Mineral Research, 19(2), 297-307.
- Nielsen, F. H. et al. (1987). Effect of dietary boron on mineral, estrogen, and testosterone metabolism in postmenopausal women. FASEB Journal, 1(5), 394-397.
- Bolland, M. J. et al. (2010). Effect of calcium supplements on risk of myocardial infarction and cardiovascular events: meta-analysis. BMJ, 341, c3691.
- Curhan, G. C. et al. (2004). Dietary factors and the risk of incident kidney stones in younger women. Archives of Internal Medicine, 164(8), 885-891.
- Adluri, R. S. et al. (2010). Comparative effects of a novel plant-based calcium supplement with two dietary calcium salts on proliferation and mineralization in human osteoblast cells. Nutrition and Cancer, 62(8), 1040-1048.
- Knapen, M. H. et al. (2013). Three-year low-dose menaquinone-7 supplementation helps decrease bone loss in healthy postmenopausal women. Osteoporosis International, 24(9), 2499-2507.
- Rizzoli, R. et al. (2014). Nutrition and bone health in women after the menopause. Women’s Health, 10(6), 599-608.
- Wachman, A. & Bernstein, D. S. (1968). Diet and osteoporosis. The Lancet, 291(7549), 958-959.
- Tucker, K. L. et al. (2009). Potassium, magnesium and fruit and vegetable intakes are associated with greater bone mineral density in elderly men and women. American Journal of Clinical Nutrition, 69(4), 727-736.
Avertissement — Cet article est proposé à titre informatif et éducatif. Il ne constitue en aucun cas un avis médical. Les informations présentées ne remplacent pas les conseils d’un médecin, d’un diététicien ou d’un pharmacien. Les personnes souffrant de maladies osseuses, rénales ou métaboliques, les femmes enceintes ou allaitantes, et les personnes sous traitement médicamenteux doivent consulter un professionnel de santé avant de modifier leur alimentation. L’identification certaine des plantes sauvages par un botaniste compétent est un préalable indispensable à toute cueillette.