L’inflammation chronique de bas grade est le dénominateur commun des maladies qui tuent le plus dans les sociétés industrialisées : maladies cardiovasculaires, diabète de type 2, cancers, maladies neurodégénératives, maladies auto-immunes, dépression, obésité. Cette inflammation silencieuse, sans fièvre ni douleur franche, s’installe au fil des années sous l’effet d’une alimentation déséquilibrée, d’un microbiote appauvri, d’un stress chronique et d’une sédentarité généralisée. La médecine conventionnelle dispose d’anti-inflammatoires puissants — AINS, corticoïdes, immunosuppresseurs — mais leurs effets secondaires en limitent l’usage prolongé. L’alimentation, en revanche, agit en continu, trois fois par jour, sans ordonnance et sans effets indésirables. Les plantes sauvages européennes concentrent des molécules anti-inflammatoires à des teneurs souvent dix à cent fois supérieures à celles des légumes cultivés : polyphénols, flavonoïdes, acides gras oméga-3, terpènes, acides phénoliques, anthocyanes. L’ortie, la reine-des-prés, le cassis, le plantain, le pissenlit, le sureau, les baies sauvages, les Lamiacées aromatiques — ces plantes, accessibles gratuitement dans les haies, les prés et les sous-bois, constituent une pharmacopée alimentaire anti-inflammatoire d’une puissance remarquable. Cette monographie détaille les mécanismes de l’inflammation, les molécules végétales qui la modulent, les plantes sauvages les plus efficaces, et les modes de préparation qui préservent leur potentiel.
II. Inflammation aiguë et inflammation chronique de bas grade
III. L’alimentation pro-inflammatoire moderne
IV. Les marqueurs biologiques de l’inflammation
V. Les polyphénols : première ligne anti-inflammatoire
VI. Les acides gras oméga-3 d’origine sauvage
VII. L’ortie — anti-inflammatoire majeur
VIII. Le plantain lancéolé
IX. La reine-des-prés — l’aspirine végétale
X. Le cassis sauvage — effet cortisone-like
XI. Le pissenlit et la chicorée sauvage
XII. Les Lamiacées aromatiques anti-inflammatoires
XIII. Les fruits sauvages riches en anthocyanes
XIV. Racines et rhizomes anti-inflammatoires
XV. Une journée anti-inflammatoire type
XVI. Modes de préparation qui préservent les principes actifs
XVII. Précautions et contre-indications
XVIII. Synthèse
I. L’inflammation : mécanisme vital devenu menace
L’inflammation est une réponse immunitaire fondamentale, conservée chez tous les vertébrés depuis des centaines de millions d’années. Lorsqu’un tissu est agressé — blessure, infection, brûlure, toxine —, le système immunitaire déclenche une cascade de réactions destinées à neutraliser l’agresseur, nettoyer les débris cellulaires et initier la réparation. Les signes cardinaux de l’inflammation aiguë sont connus depuis Celse (Iᵉʳ siècle) : rubor (rougeur), calor (chaleur), tumor (gonflement), dolor (douleur), auxquels Galien a ajouté functio laesa (perte de fonction).
Le mécanisme est élégant dans sa brutalité. Les cellules sentinelles des tissus — macrophages résidents, mastocytes, cellules dendritiques — détectent l’agression via leurs récepteurs de reconnaissance de motifs (PRR, notamment les récepteurs Toll-like ou TLR). Elles libèrent alors des médiateurs pro-inflammatoires : histamine, prostaglandines, leucotriènes, cytokines (IL-1β, IL-6, TNF-α), chimiokines. Ces molécules dilatent les vaisseaux sanguins locaux (d’où la rougeur et la chaleur), augmentent la perméabilité vasculaire (d’où le gonflement) et attirent des leucocytes circulants — neutrophiles d’abord, puis monocytes qui se différencient en macrophages — vers le site de l’agression.
L’inflammation aiguë est un processus autolimitant. Une fois l’agresseur neutralisé, les mêmes cellules immunitaires produisent des médiateurs de résolution — résolvines, protectines, marésines (dérivés des oméga-3 EPA et DHA), lipoxines (dérivées de l’acide arachidonique) — qui freinent le recrutement de nouveaux leucocytes, stimulent la phagocytose des débris et des cellules immunitaires apoptotiques, et orientent les macrophages vers un phénotype réparateur (M2). L’inflammation se résout, le tissu se répare, l’homéostasie est restaurée.
Le problème survient quand ce processus ne se résout pas.
II. Inflammation aiguë et inflammation chronique de bas grade
L’inflammation chronique de bas grade — appelée aussi meta-inflammation ou inflammaging (inflammation liée au vieillissement) — est un état d’activation immunitaire permanente, à bas bruit, sans agent infectieux identifiable. Elle ne produit ni fièvre, ni douleur localisée, ni rougeur visible. Elle est systémique (elle affecte l’organisme entier) et silencieuse (elle progresse pendant des années sans symptôme apparent).
Ses causes sont multiples et synergiques. L’excès de tissu adipeux viscéral est un facteur majeur : les adipocytes hypertrophiés sécrètent des cytokines pro-inflammatoires (TNF-α, IL-6, leptine) et recrutent des macrophages M1 dans le tissu adipeux, créant un foyer inflammatoire permanent. Le déséquilibre du ratio oméga-6/oméga-3 dans l’alimentation moderne (15:1 à 20:1, contre 1:1 à 4:1 chez les chasseurs-cueilleurs) favorise la production de prostaglandines et leucotriènes pro-inflammatoires (série 2 et 4, dérivés de l’acide arachidonique) au détriment des médiateurs anti-inflammatoires et de résolution (série 3 et 5, dérivés de l’EPA et du DHA). La dysbiose intestinale — appauvrissement du microbiote par les antibiotiques, les édulcorants artificiels, le manque de fibres — augmente la perméabilité intestinale (« leaky gut »), permettant le passage de lipopolysaccharides bactériens (LPS) dans la circulation sanguine, qui activent les TLR4 des cellules immunitaires et entretiennent une inflammation systémique chronique.
Le stress oxydatif amplifie l’inflammation : les espèces réactives de l’oxygène (ROS) activent le facteur de transcription NF-κB, maître régulateur de l’expression des gènes pro-inflammatoires (cytokines, enzymes COX-2 et iNOS, molécules d’adhésion). NF-κB est au cœur du cercle vicieux : l’inflammation produit des ROS, qui activent NF-κB, qui amplifie l’inflammation.
Les conséquences cliniques sont considérables. L’inflammation chronique de bas grade est aujourd’hui considérée comme un facteur causal ou aggravant de l’athérosclérose (inflammation de la paroi artérielle, formation de plaques), du diabète de type 2 (résistance à l’insuline induite par le TNF-α et l’IL-6), des cancers (promotion tumorale par le microenvironnement inflammatoire), des maladies neurodégénératives (neuro-inflammation dans Alzheimer et Parkinson), de la dépression (inflammation cérébrale et déplétion en tryptophane par l’enzyme IDO), de l’ostéoporose (activation des ostéoclastes par les cytokines), des maladies auto-immunes (perte de tolérance immunitaire) et du vieillissement accéléré (raccourcissement des télomères).
Réduire l’inflammation chronique de bas grade est donc un enjeu de santé publique majeur. L’alimentation est le levier le plus puissant et le plus accessible — chaque repas est une occasion de nourrir ou d’éteindre le feu inflammatoire.
III. L’alimentation pro-inflammatoire moderne
L’alimentation occidentale moderne est intrinsèquement pro-inflammatoire. Plusieurs composants alimentaires activent directement ou indirectement les voies inflammatoires.
Les sucres raffinés et les glucides à index glycémique élevé (pain blanc, riz blanc, pâtes blanches, sucreries, boissons sucrées) provoquent des pics de glycémie qui génèrent un stress oxydatif (glycation des protéines, production de ROS mitochondriaux) et activent NF-κB. Les produits de glycation avancée (AGE), formés lors de la cuisson à haute température (grillades, fritures, caramélisation), se lient aux récepteurs RAGE des cellules immunitaires et déclenchent une réponse inflammatoire.
Les huiles végétales riches en acide linoléique (oméga-6) — tournesol, maïs, soja, carthame — fournissent le précurseur de l’acide arachidonique, substrat des enzymes COX-2 et 5-LOX qui produisent les prostaglandines E2 (PGE2) et les leucotriènes B4 (LTB4), puissants médiateurs pro-inflammatoires. Le ratio oméga-6/oméga-3 de l’huile de tournesol est de 71:1 — un record.
Les acides gras trans industriels (huiles partiellement hydrogénées, margarines, viennoiseries industrielles) augmentent les marqueurs inflammatoires (CRP, IL-6, TNF-α) et altèrent la fonction endothéliale. Bien que partiellement bannis dans certains pays, ils persistent dans de nombreux produits ultra-transformés.
La viande transformée (charcuteries, saucisses, bacon) contient des nitrites qui forment des nitrosamines pro-inflammatoires et cancérigènes, des AGE en grande quantité (cuisson à haute température), et un excès de fer héminique qui catalyse la peroxydation lipidique dans le côlon.
Les émulsifiants (carboxyméthylcellulose, polysorbate 80) présents dans les aliments ultra-transformés altèrent la couche de mucus intestinal et favorisent la translocation de LPS bactériens, entretenant l’inflammation systémique. Les édulcorants artificiels (aspartame, sucralose, saccharine) perturbent le microbiote intestinal et peuvent aggraver la dysbiose.
L’alcool en excès augmente la perméabilité intestinale, surcharge le foie en acétaldéhyde (métabolite toxique) et active les cellules de Kupffer hépatiques qui libèrent des cytokines pro-inflammatoires dans la circulation systémique.
En résumé, l’alimentation ultra-transformée moderne est un cocktail pro-inflammatoire permanent. Passer d’une alimentation industrielle à une alimentation basée sur les plantes sauvages, c’est inverser simultanément tous ces facteurs.
IV. Les marqueurs biologiques de l’inflammation
L’inflammation chronique de bas grade est détectable par des analyses sanguines. Plusieurs biomarqueurs permettent d’évaluer le niveau d’inflammation systémique.
La protéine C-réactive ultrasensible (CRP-us ou hs-CRP) est le marqueur le plus utilisé en pratique clinique. Produite par le foie en réponse à l’IL-6, elle reflète l’inflammation systémique. Une valeur inférieure à 1 mg/L indique un risque cardiovasculaire faible ; entre 1 et 3 mg/L, un risque modéré ; au-dessus de 3 mg/L, un risque élevé. Les études interventionnelles montrent qu’une alimentation riche en polyphénols et en oméga-3 réduit la CRP-us de 20 à 40 % en quelques semaines.
L’interleukine-6 (IL-6) est une cytokine pléiotrope : pro-inflammatoire en phase aiguë, elle joue aussi un rôle dans la résolution de l’inflammation. Son élévation chronique est associée à la résistance à l’insuline, à l’athérosclérose et à la dépression. Les flavonoïdes des plantes sauvages (quercétine, lutéoline, apigénine) inhibent directement la production d’IL-6 par les macrophages.
Le TNF-α (facteur de nécrose tumorale alpha) est la cytokine pro-inflammatoire la plus puissante. Il active NF-κB, induit la résistance à l’insuline dans le tissu adipeux et le muscle, et favorise la cachexie (perte musculaire) dans les maladies chroniques. L’acide rosmarinique (romarin, mélisse, sauge) et les acides boswelliques (encens) inhibent la production de TNF-α.
Le fibrinogène, les ferritine élevée (marqueur indirect d’inflammation), la vitesse de sédimentation (VS), le rapport neutrophiles/lymphocytes (NLR) et l’homocystéine sont d’autres marqueurs utiles. Le médecin traitant peut prescrire un bilan inflammatoire de base (CRP-us, VS, ferritine) pour évaluer le terrain inflammatoire du patient.
L’index inflammatoire alimentaire (Dietary Inflammatory Index, DII) est un outil de recherche qui attribue un score pro- ou anti-inflammatoire à chaque composant alimentaire. Les régimes les plus anti-inflammatoires selon le DII sont ceux riches en fibres, en polyphénols, en oméga-3, en magnésium, en vitamines C et E, et en caroténoïdes — exactement le profil des plantes sauvages comestibles.
V. Les polyphénols : première ligne anti-inflammatoire
Les polyphénols sont une famille de plus de 8 000 molécules produites par les plantes comme métabolites secondaires de défense — contre les UV, les pathogènes, les herbivores et le stress oxydatif. Ingérés par l’être humain, ils exercent des effets anti-inflammatoires puissants par plusieurs mécanismes convergents.
Le mécanisme principal est l’inhibition de NF-κB. Les flavonoïdes (quercétine, kaempférol, lutéoline, apigénine), les stilbènes (resvératrol), les acides phénoliques (acide rosmarinique, acide chlorogénique, acide caféique) et les tanins (ellagitanins, proanthocyanidines) bloquent la phosphorylation d’IκBα (inhibiteur de NF-κB), empêchant la translocation nucléaire de NF-κB et donc l’expression des gènes pro-inflammatoires (COX-2, iNOS, cytokines, molécules d’adhésion). C’est le même mécanisme — en plus doux et plus large — que celui des AINS pharmaceutiques, qui ciblent uniquement COX-1 et COX-2.
Le deuxième mécanisme est l’inhibition directe des enzymes COX-2 et 5-LOX. La quercétine (ortie, sureau, oignon) inhibe COX-2 avec un IC50 comparable à celui de l’ibuprofène in vitro. L’acide rosmarinique (romarin, mélisse, sauge, thym) inhibe la 5-LOX, réduisant la production de leucotriènes. Les salicylates naturels de la reine-des-prés et du saule inhibent COX-1 et COX-2 — ce sont les précurseurs historiques de l’aspirine.
Le troisième mécanisme est le piégeage des espèces réactives de l’oxygène (ROS). Les polyphénols sont des antioxydants directs : leur structure phénolique (noyau aromatique hydroxylé) permet de neutraliser les radicaux libres (superoxyde, hydroxyle, peroxyle) par don d’hydrogène. En réduisant le stress oxydatif, ils coupent le cercle vicieux ROS → NF-κB → inflammation → ROS.
Le quatrième mécanisme est la modulation du microbiote intestinal. Les polyphénols non absorbés dans l’intestin grêle (90 % de la dose ingérée) atteignent le côlon où ils sont métabolisés par les bactéries intestinales en métabolites bioactifs (acide protocatéchique, urolithines, équol). En retour, ils favorisent la croissance de bactéries bénéfiques (Akkermansia muciniphila, Faecalibacterium prausnitzii) productrices de butyrate — un acide gras à chaîne courte aux propriétés anti-inflammatoires puissantes (inhibition de NF-κB dans les cellules épithéliales coliques, renforcement de la barrière intestinale).
Les plantes sauvages sont extraordinairement riches en polyphénols. L’ortie contient 10 à 20 fois plus de quercétine que la laitue. Le plantain lancéolé contient de l’aucubine et de l’actéoside, deux polyphénols quasi absents des légumes cultivés. Les baies sauvages (myrtilles, mûres, sureau) contiennent 2 à 5 fois plus d’anthocyanes que leurs homologues cultivés, car le stress environnemental (altitude, UV, froid) stimule la biosynthèse des polyphénols.
VI. Les acides gras oméga-3 d’origine sauvage
Les acides gras oméga-3 sont les précurseurs des médiateurs lipidiques de résolution de l’inflammation — résolvines, protectines, marésines — découverts par Charles Serhan (Harvard) dans les années 2000. Ces molécules ne se contentent pas de freiner l’inflammation : elles organisent activement sa résolution, un processus distinct de la simple suppression. Les résolvines de la série E (dérivées de l’EPA) et de la série D (dérivées du DHA) stimulent la phagocytose des neutrophiles apoptotiques par les macrophages, réduisent la production de cytokines pro-inflammatoires et favorisent la régénération tissulaire.
Les plantes sauvages fournissent de l’acide alpha-linolénique (ALA, 18:3 n-3), le précurseur végétal des oméga-3 à longue chaîne. Le taux de conversion de l’ALA en EPA est de 5 à 10 %, et en DHA de 1 à 3 % — modeste mais significatif, surtout si le ratio oméga-6/oméga-3 alimentaire est faible (ce qui réduit la compétition pour les enzymes de désaturation Δ6 et Δ5).
Le pourpier (Portulaca oleracea) est la source végétale la plus riche en ALA parmi les plantes terrestres : 300 à 400 mg d’ALA pour 100 g de feuilles fraîches, soit plus que certains poissons. Il contient aussi des traces d’EPA (fait exceptionnel pour un végétal terrestre). Le mouron des oiseaux (Stellaria media) contient environ 200 mg d’ALA pour 100 g. Le chénopode blanc (Chenopodium album) en contient 150 à 200 mg. L’ortie (Urtica dioica) en contient 100 à 150 mg. Les noix (Juglans regia) en sont la source sèche la plus concentrée : 9 g d’ALA pour 100 g de cerneaux.
L’ALA exerce aussi des effets anti-inflammatoires propres, indépendants de sa conversion en EPA/DHA. Il inhibe la production d’IL-1β et de TNF-α par les macrophages, réduit l’expression des molécules d’adhésion endothéliales (VCAM-1, ICAM-1) qui facilitent l’infiltration leucocytaire, et diminue la production d’eicosanoïdes pro-inflammatoires en compétitionnant avec l’acide arachidonique pour les enzymes COX et LOX.
La cameline (Camelina sativa), ancienne plante cultivée aujourd’hui quasi sauvage, fournit une huile contenant 35 à 40 % d’ALA — ratio oméga-6/oméga-3 de 0,5:1, l’inverse exact de l’huile de tournesol. L’huile de périlla (Perilla frutescens), Lamiacée d’Asie naturalisée en Europe, contient jusqu’à 60 % d’ALA. L’huile de lin (Linum usitatissimum) en contient 55 %, mais elle s’oxyde très rapidement et doit être consommée fraîche, jamais chauffée.
VII. L’ortie — anti-inflammatoire majeur
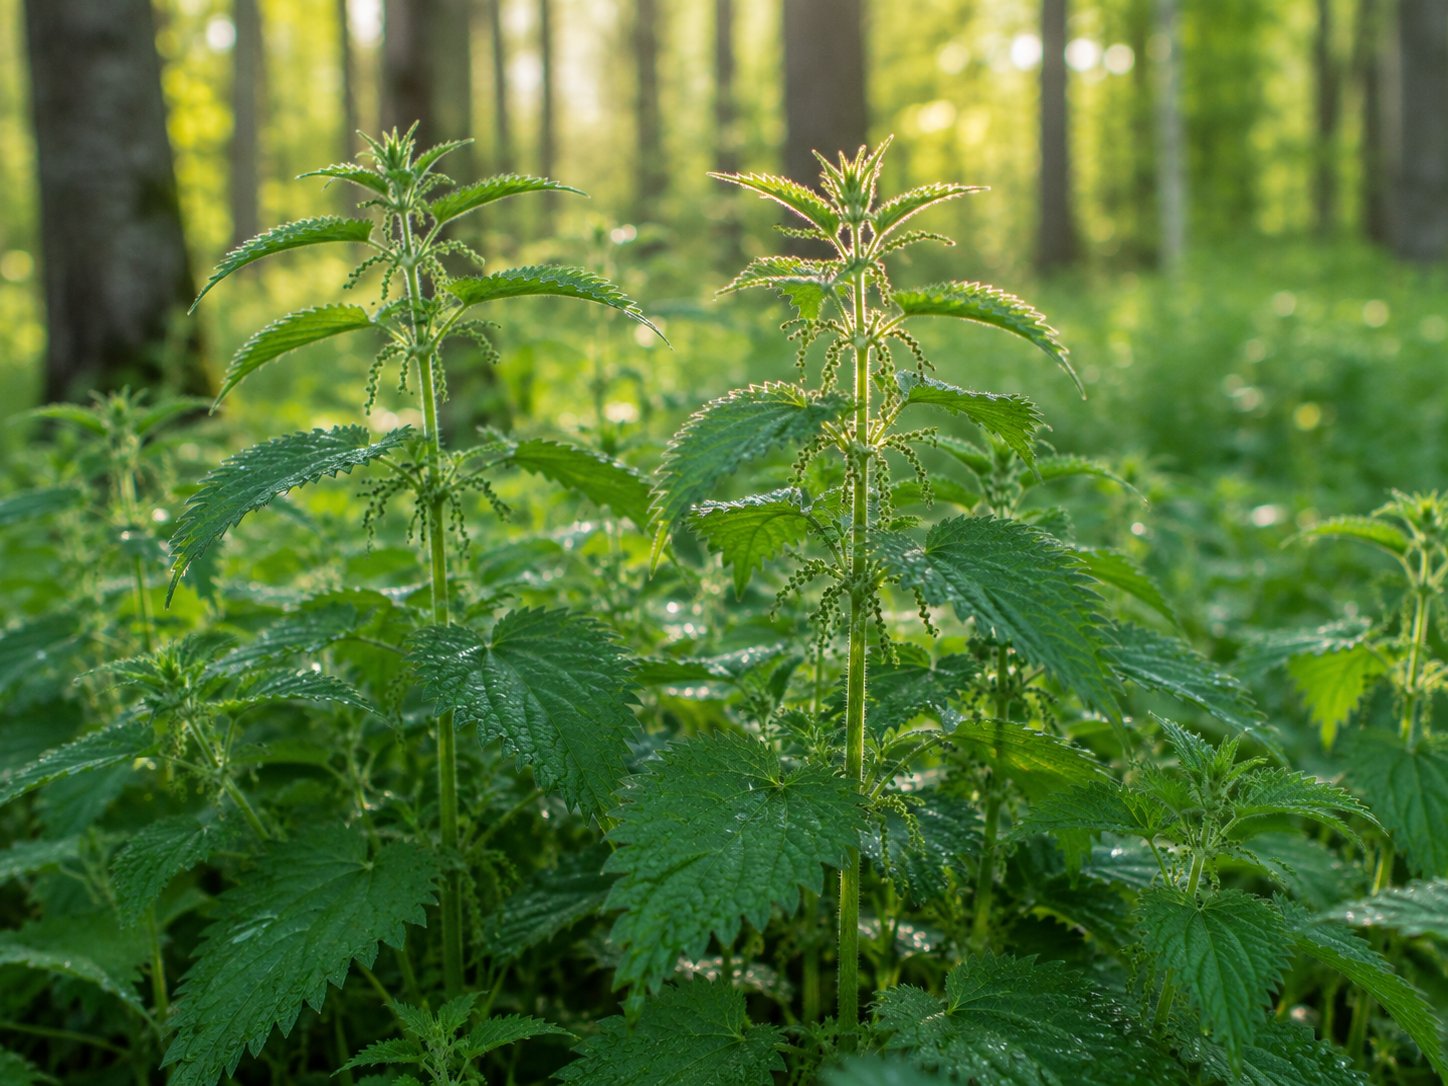
L’ortie (Urtica dioica) est probablement la plante sauvage anti-inflammatoire la mieux documentée scientifiquement. Paradoxe fascinant : la plante dont le contact provoque une inflammation aiguë (urticaire) est l’une des plus puissantes pour combattre l’inflammation chronique.
Les feuilles d’ortie contiennent un cocktail de molécules anti-inflammatoires à spectre large. La quercétine et ses glycosides (quercétine-3-O-rutinoside, quercétine-3-O-glucoside) inhibent NF-κB, COX-2 et 5-LOX. L’acide caféique et l’acide chlorogénique piègent les ROS et inhibent la production d’IL-6 et de TNF-α. Le bêta-sitostérol et d’autres phytostérols inhibent la production de prostaglandines pro-inflammatoires en modulant le métabolisme de l’acide arachidonique. Les lectines d’ortie (Urtica dioica agglutinin, UDA) modulent la réponse immunitaire en se liant aux glycoprotéines de surface des lymphocytes T.
Les études cliniques confirment ces effets. Un essai randomisé contrôlé (Randall et al., 2000, Journal of the Royal Society of Medicine) a montré que l’application de feuilles d’ortie fraîches sur les articulations douloureuses réduisait significativement la douleur arthrosique — l’urtication thérapeutique, pratiquée depuis l’Antiquité (Dioscoride la recommandait déjà). Un essai clinique (Chrubasik et al., 1997, Phytomedicine) a démontré que l’extrait de racine d’ortie réduisait les marqueurs inflammatoires et les symptômes de l’hyperplasie bénigne de la prostate. Une étude in vitro (Riehemann et al., 1999, FEBS Letters) a montré que l’extrait d’ortie inhibait la dégradation d’IκBα et donc l’activation de NF-κB — le mécanisme central de l’inflammation chronique.
En alimentation anti-inflammatoire, l’ortie se consomme de multiples façons. La soupe d’ortie est le plat le plus simple et le plus concentré : 200 g de jeunes pousses cuites dans un bouillon de légumes fournissent une dose massive de quercétine, de chlorophylle, de fer (4 mg pour 100 g de feuilles fraîches, 2 à 3 fois plus que l’épinard), de magnésium, de calcium et de silice. Le pesto d’ortie (feuilles blanchies 30 secondes, mixées avec huile de cameline, noix et ail des ours) concentre les polyphénols sans cuisson prolongée. La poudre d’ortie (feuilles séchées à l’ombre et réduites en poudre fine) se saupoudre sur les plats — 5 g par jour suffisent pour un apport significatif en quercétine et en minéraux.
En tisane départ à froid, placer 3 à 4 cuillerées à soupe de feuilles d’ortie séchées dans un litre d’eau froide, laisser monter à frémissement, couper le feu et laisser infuser 15 minutes couvert. Cette infusion vert sombre et minérale se boit tout au long de la journée — 3 à 4 tasses — comme boisson anti-inflammatoire de fond.
VIII. Le plantain lancéolé
Le plantain lancéolé (Plantago lanceolata) est une plante discrète, omniprésente dans les prairies, les bords de chemins et les pelouses de toute l’Europe. Son profil anti-inflammatoire est remarquable et repose sur des molécules spécifiques, quasi absentes des autres plantes comestibles.
L’aucubine est un glycoside iridoïde caractéristique du plantain. Après ingestion, elle est hydrolysée par les bêta-glucosidases intestinales en aucubigénine, un dialdéhyde réactif qui inhibe la production de NO (monoxyde d’azote) par l’enzyme iNOS (NO synthase inductible) et réduit la production de PGE2 par COX-2. L’aucubine inhibe aussi l’activation de NF-κB dans les macrophages stimulés par le LPS (Jeong et al., 1999, Planta Medica). Cette double action — inhibition d’iNOS et de COX-2 — place le plantain dans la même catégorie pharmacologique que les anti-inflammatoires de synthèse, sans leurs effets gastro-intestinaux.
L’actéoside (ou verbascoside) est un phényletanoïde glycoside présent en grande quantité dans le plantain lancéolé (1 à 3 % de la masse sèche). C’est un antioxydant puissant (ORAC supérieur à celui de la vitamine E) qui inhibe la production de TNF-α, d’IL-1β et d’IL-6 par les monocytes humains activés. L’actéoside protège aussi les chondrocytes (cellules du cartilage) de la dégradation induite par les métalloprotéases matricielles (MMP-1, MMP-13) — un mécanisme pertinent dans l’arthrose.
Le plantain contient aussi de l’apigénine (un flavone anti-inflammatoire qui inhibe la production d’IL-4 et d’IL-13 par les mastocytes — d’où son effet antiallergique), de la lutéoline (inhibiteur de COX-2 et de la production de leucotriènes), du baicaléine, et des mucilages (polysaccharides qui forment un gel protecteur sur les muqueuses enflammées — gorge, estomac, intestin).
En usage alimentaire, les jeunes feuilles de plantain lancéolé se mangent crues en salade (goût légèrement champignonné), cuites en soupe ou en gratin (texture d’épinard), ou séchées en poudre à ajouter aux plats. Le sirop de plantain (feuilles fraîches en couches alternées avec du miel, macérées 6 semaines) est un classique de l’herboristerie populaire pour les affections respiratoires inflammatoires (toux, bronchite, asthme).
En tisane départ à froid, placer 2 cuillerées à soupe de feuilles de plantain séchées et 1 cuillerée de fleurs de sureau dans un litre d’eau froide, monter à frémissement, couper le feu, infuser 10 minutes couvert. Cette tisane douce et légèrement sucrée est spécifiquement indiquée pour l’inflammation des voies respiratoires et les allergies saisonnières.
IX. La reine-des-prés — l’aspirine végétale
La reine-des-prés (Filipendula ulmaria) occupe une place unique dans l’histoire de la pharmacologie. C’est à partir de ses fleurs que Johann Buchner a isolé la salicine en 1828, puis que Hermann Kolbe a synthétisé l’acide salicylique en 1860. En 1897, Felix Hoffmann (Bayer) a acétylé l’acide salicylique pour créer l’acide acétylsalicylique — l’aspirine —, dont le nom dérive de l’ancien nom botanique de la reine-des-prés : Spiraea ulmaria (a-spir-ine).
Mais la plante entière est pharmacologiquement supérieure au médicament isolé. La reine-des-prés contient de la salicine, du salicylaldéhyde, du salicylate de méthyle et des monotropitosides — un complexe de dérivés salicylés qui sont convertis en acide salicylique dans l’organisme de manière progressive (effet retard). L’aspirine de synthèse est un inhibiteur brutal et irréversible de COX-1 et COX-2 : elle bloque la production de toutes les prostaglandines, y compris les prostaglandines gastroprotectrices (PGE2 et PGI2 dans la muqueuse gastrique), d’où les ulcères et les hémorragies digestives qui sont sa principale limitation. La reine-des-prés, elle, contient aussi des tanins et des mucilages qui protègent la muqueuse gastrique — elle est traditionnellement utilisée contre les brûlures d’estomac et les gastrites, l’exact opposé de l’aspirine de synthèse.
Les flavonoïdes de la reine-des-prés (quercétine, kaempférol, spiréoside) complètent l’action anti-inflammatoire des salicylates en inhibant NF-κB et en piégeant les ROS. L’acide ellagique et les ellagitanins protègent l’endothélium vasculaire et inhibent l’agrégation plaquettaire — un effet antithrombotique qui s’ajoute à l’effet antiagrégant des salicylates.
En tisane anti-inflammatoire départ à froid, placer 2 cuillerées à soupe de sommités fleuries de reine-des-prés séchées dans un litre d’eau froide, monter doucement à frémissement (ne jamais faire bouillir — l’ébullition détruit les salicylates volatils), couper le feu immédiatement et infuser 10 minutes couvert. Cette tisane au parfum d’amande et de miel (dû au salicylaldéhyde) se boit en 3 prises dans la journée pour les douleurs articulaires, les états grippaux, les maux de tête et l’inflammation chronique.
La reine-des-prés est contre-indiquée chez les personnes allergiques à l’aspirine, sous anticoagulants (warfarine, héparine) ou antiagrégants plaquettaires (clopidogrel), et pendant la grossesse (les salicylates sont tératogènes à forte dose). Elle est déconseillée chez les enfants de moins de 12 ans (risque théorique de syndrome de Reye, comme pour l’aspirine).
X. Le cassis sauvage — effet cortisone-like
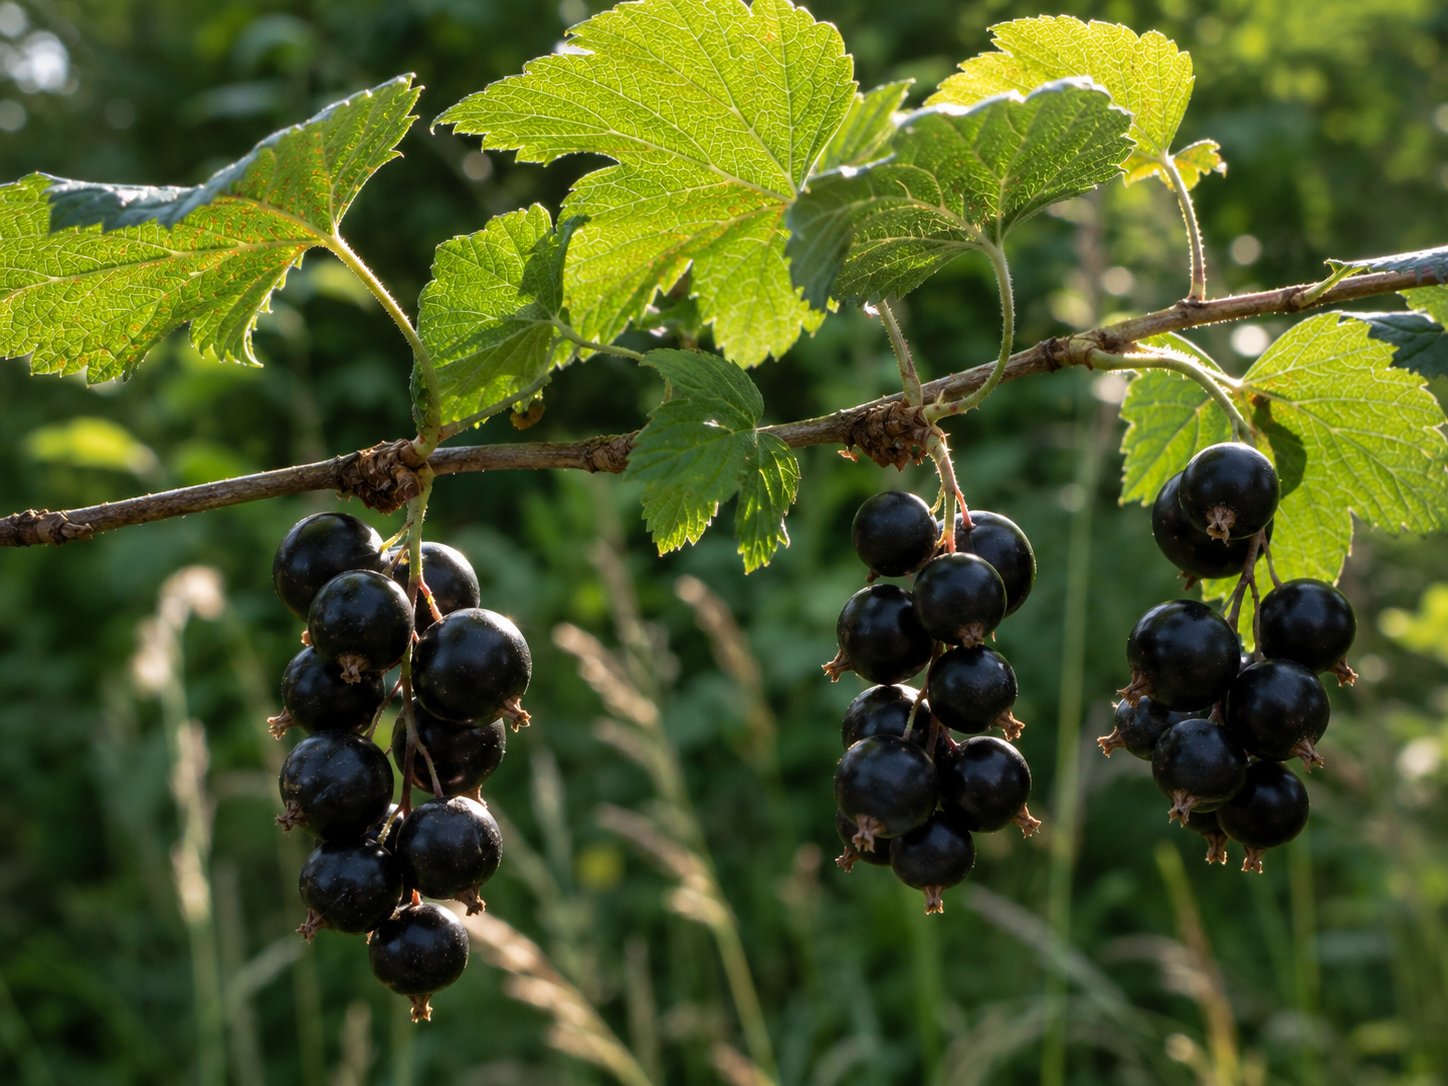
Le cassis (Ribes nigrum) est l’une des rares plantes européennes à exercer un effet cortisone-like — c’est-à-dire une stimulation de la production endogène de cortisol par les glandes surrénales, sans apport exogène de corticoïdes. Cet effet, découvert par les chercheurs français Léaud et Pourrat dans les années 1960, est attribué principalement aux bourgeons et aux feuilles, plus qu’aux fruits.
Le mécanisme est le suivant : les proanthocyanidines oligomères (OPC) et les flavonoïdes (quercétine, myricétine, kaempférol) des bourgeons de cassis stimulent l’axe hypothalamo-hypophyso-surrénalien (HHS) et potentialisent l’action de l’ACTH sur les cellules corticosurrénaliennes. Le cortisol endogène ainsi libéré exerce ses effets anti-inflammatoires physiologiques : inhibition de la phospholipase A2 (en amont de COX et LOX), stabilisation des membranes lysosomiales, réduction de la perméabilité vasculaire, suppression de la migration leucocytaire. Contrairement à la cortisone de synthèse (prednisone, prednisolone, dexaméthasone), cet effet est modulé par les mécanismes de rétrocontrôle endogènes — pas de suppression surrénalienne, pas d’ostéoporose, pas de diabète stéroïdien, pas de syndrome cushingoïde.
Les feuilles de cassis contiennent en outre des acides phénoliques (acide chlorogénique, acide gallique), des terpènes et des mucilages qui complètent l’effet anti-inflammatoire. Une étude in vitro (Garbacki et al., 2004, Journal of Ethnopharmacology) a montré que l’extrait de feuilles de cassis inhibait la production de TNF-α, d’IL-1β, d’IL-6 et de PGE2 par les macrophages activés, avec une efficacité comparable à celle de la dexaméthasone à certaines concentrations.
Les fruits de cassis sont parmi les plus riches en anthocyanes de toute la flore européenne : 130 à 400 mg pour 100 g de baies fraîches, soit 2 à 4 fois plus que la myrtille sauvage. Les anthocyanes du cassis (delphinidine-3-glucoside, cyanidine-3-rutinoside) inhibent COX-2, réduisent la production de NO par iNOS et protègent l’endothélium vasculaire. Les baies sont aussi exceptionnellement riches en vitamine C (180 mg pour 100 g, 3 fois plus que l’orange) et en acide gamma-linolénique (GLA, oméga-6 anti-inflammatoire — un cas rare d’oméga-6 bénéfique) dans l’huile de pépins.
En gemmothérapie (macérat glycériné de bourgeons), le cassis est le « remède de fond » anti-inflammatoire par excellence. Le macérat de bourgeons de cassis (Ribes nigrum MG 1DH) se prend à raison de 50 à 100 gouttes par jour en 2 prises, en cure de 3 semaines à 3 mois. C’est la préparation la plus puissante pour l’effet cortisone-like.
En tisane départ à froid, placer 2 cuillerées à soupe de feuilles de cassis séchées et 1 cuillerée de feuilles de frêne (Fraxinus excelsior, autre anti-inflammatoire articulaire) dans un litre d’eau froide, monter à frémissement, couper le feu, infuser 15 minutes couvert. Cette tisane légèrement astringente et aromatique est spécifiquement indiquée pour les rhumatismes, l’arthrite et les tendinites.
XI. Le pissenlit et la chicorée sauvage
Le pissenlit (Taraxacum officinale) et la chicorée sauvage (Cichorium intybus) sont deux Astéracées omniprésentes dont les propriétés anti-inflammatoires sont largement sous-estimées.
Le pissenlit contient des sesquiterpènes lactones (taraxacine, taraxacérine) qui sont responsables de l’amertume du latex blanc de la plante. Ces molécules inhibent directement NF-κB en alkylant la sous-unité p65, empêchant sa liaison à l’ADN (Jeon et al., 2008, International Immunopharmacology). C’est un mécanisme anti-inflammatoire distinct de celui des polyphénols — il ne passe pas par l’inhibition de la phosphorylation d’IκBα mais par la modification covalente du facteur de transcription lui-même. Les sesquiterpènes lactones sont aussi présents dans l’armoise (artémisinine), la grande camomille (parthénolide) et l’achillée millefeuille — toutes des Astéracées aux propriétés anti-inflammatoires reconnues.
Les feuilles de pissenlit contiennent aussi de la lutéoline (inhibiteur de COX-2 et de la production de leucotriènes), de l’acide chicorésique (antioxydant puissant), et du bêta-carotène (précurseur de la vitamine A, modulateur immunitaire). La racine de pissenlit est riche en inuline (15 à 20 % de la masse sèche en automne), un fructane prébiotique qui nourrit sélectivement les bifidobactéries et les lactobacilles producteurs de butyrate — l’effet anti-inflammatoire indirect via le microbiote.
La chicorée sauvage partage ces propriétés et les amplifie. Sa racine contient jusqu’à 40 % d’inuline en automne — la source prébiotique la plus concentrée du règne végétal. La lactucopicrine et la lactucine (sesquiterpènes lactones spécifiques des Cichorieae) inhibent NF-κB et la production de NO. L’acide chicorique (un dérivé de l’acide caféique) présent dans les feuilles et la racine inhibe la hyaluronidase — une enzyme impliquée dans la dégradation de la matrice extracellulaire et la propagation de l’inflammation dans les tissus conjonctifs.
En alimentation anti-inflammatoire, les jeunes feuilles de pissenlit et de chicorée se consomment crues en salade amère (l’amertume est directement proportionnelle à la teneur en sesquiterpènes lactones — ne pas la masquer). Les racines de chicorée torréfiées donnent le « café de chicorée », boisson prébiotique riche en inuline partiellement caramélisée. La racine de pissenlit séchée se prépare en décoction départ à froid : placer 2 cuillerées à soupe de racine coupée dans un litre d’eau froide, porter à frémissement, laisser frémir doucement 10 minutes, couper le feu, infuser 10 minutes couvert. Cette décoction amère et terreuse stimule la digestion, le foie et le microbiote.
XII. Les Lamiacées aromatiques anti-inflammatoires
La famille des Lamiacées (ex-Labiées) est un réservoir d’anti-inflammatoires végétaux. Romarin, thym, sauge, origan, mélisse, menthe, serpolet, hysope, sarriette, lavande — toutes ces plantes aromatiques méditerranéennes (et leurs cousines sauvages européennes) partagent un socle commun de molécules anti-inflammatoires, à des concentrations très élevées.
L’acide rosmarinique est le marqueur phytochimique de la famille. C’est un ester de l’acide caféique et de l’acide 3,4-dihydroxyphényllactique, présent dans toutes les Lamiacées à des teneurs de 0,5 à 5 % de la masse sèche. L’acide rosmarinique inhibe la 5-LOX (réduction des leucotriènes), inhibe l’activation du complément C3 (composante du système immunitaire inné), piège les ROS, et inhibe la production d’IL-6 et de TNF-α. Il est aussi un puissant antiallergique : il inhibe la dégranulation des mastocytes et réduit la production d’IgE — d’où l’usage traditionnel de la mélisse et de la menthe contre le rhume des foins.
Le carnosol et l’acide carnosique (spécifiques du romarin et de la sauge) sont des diterpènes phénoliques qui inhibent NF-κB, activent le facteur de transcription Nrf2 (Nuclear factor erythroid 2-related factor 2) — maître régulateur de la défense antioxydante cellulaire — et réduisent la production de médiateurs pro-inflammatoires dans les macrophages et les cellules microgliales (cellules immunitaires du cerveau). L’activation de Nrf2 est un mécanisme anti-inflammatoire indirect mais puissant : Nrf2 induit l’expression de centaines de gènes de détoxification et d’antioxydation (glutathion peroxydase, superoxyde dismutase, hème oxygénase-1), réduisant le stress oxydatif qui alimente l’inflammation.
Le thymol et le carvacrol (monoterpènes phénoliques du thym et de l’origan) inhibent COX-2 et la production de PGE2, et sont de puissants antimicrobiens qui modulent le microbiote intestinal en faveur des bactéries bénéfiques.
L’apigénine (flavone abondante dans le thym, le romarin, la sauge, le persil) inhibe COX-2, réduit la production d’IL-4, d’IL-5 et d’IL-13 (cytokines Th2 impliquées dans l’allergie et l’asthme), et exerce un effet anxiolytique par modulation positive des récepteurs GABA-A (le stress chronique étant un puissant amplificateur de l’inflammation).
En usage culinaire anti-inflammatoire, les Lamiacées aromatiques doivent être consommées quotidiennement et généreusement — pas comme décoration, mais comme ingrédient principal. Une cuillerée à soupe de thym frais ou une demi-cuillerée de romarin séché par repas apporte une dose significative d’acide rosmarinique. Le vinaigre de sureau au thym sauvage, l’huile d’olive au romarin, le pesto de sauge et de noix, les salades de pourpier au serpolet sont autant de préparations qui concentrent ces principes actifs dans l’alimentation quotidienne.
En tisane départ à froid, le mélange anti-inflammatoire classique des Lamiacées : placer 1 cuillerée à soupe de thym, 1 cuillerée de romarin, 1 cuillerée de mélisse et quelques feuilles de sauge dans un litre d’eau froide, monter à frémissement, couper le feu, infuser 10 minutes couvert. Cette tisane aromatique et légèrement amère se boit en 3 tasses par jour.
XIII. Les fruits sauvages riches en anthocyanes
Les anthocyanes sont les pigments responsables de la couleur rouge, violette, bleue et noire des fruits. Ce sont des flavonoïdes glycosylés, dont les six aglycones principaux sont la cyanidine, la delphinidine, la pélargonidine, la péonidine, la pétunidine et la malvidine. Leur concentration est maximale dans les fruits sauvages, car la biosynthèse des anthocyanes est stimulée par le stress environnemental — UV intenses, froid nocturne, sol pauvre, altitude — que subissent les plantes non cultivées.
Les anthocyanes exercent leurs effets anti-inflammatoires par plusieurs voies. Elles inhibent COX-2 avec une efficacité comparable à celle de l’ibuprofène et du naproxène in vitro (Seeram et al., 2001, Journal of Agricultural and Food Chemistry). Elles inhibent NF-κB en empêchant la phosphorylation d’IκBα. Elles réduisent la production de NO par iNOS. Elles protègent l’endothélium vasculaire en réduisant l’expression des molécules d’adhésion (VCAM-1, ICAM-1) et en stimulant la production de NO endothélial (vasodilatateur et anti-athérogène) par eNOS. Elles modulent le microbiote en favorisant la croissance d’Akkermansia muciniphila, une bactérie associée à la réduction de l’inflammation métabolique.
Les fruits sauvages européens les plus riches en anthocyanes (par ordre décroissant de concentration) sont les suivants. Le sureau noir (Sambucus nigra) : 500 à 1 000 mg pour 100 g de baies fraîches, principalement de la cyanidine-3-sambubioside et de la cyanidine-3-glucoside. Le cassis (Ribes nigrum) : 130 à 400 mg pour 100 g, principalement de la delphinidine-3-rutinoside et de la cyanidine-3-rutinoside. La myrtille sauvage (Vaccinium myrtillus) : 300 à 700 mg pour 100 g (3 à 5 fois plus que la myrtille cultivée Vaccinium corymbosum), avec les six aglycones représentés — profil le plus diversifié. La mûre sauvage (Rubus fruticosus agg.) : 100 à 250 mg pour 100 g, principalement de la cyanidine-3-glucoside. La prunelle (Prunus spinosa) : 150 à 300 mg pour 100 g (après blettissement). L’argousier (Hippophae rhamnoides) : fruits orange riches en caroténoïdes plutôt qu’en anthocyanes, mais les feuilles contiennent des flavonoïdes anti-inflammatoires (isorhamnétine, quercétine).
En alimentation anti-inflammatoire, les baies sauvages se consomment fraîches en saison (août-octobre), congelées (la congélation préserve 80 à 90 % des anthocyanes), séchées (perte de 30 à 50 %), en sirop (le sucre limite les bénéfices — préférer le miel), ou lactofermentées (les bactéries lactiques métabolisent partiellement les anthocyanes en métabolites bioactifs plus absorbables). Le vinaigre de sureau (baies écrasées fermentées avec une mère de vinaigre) concentre les anthocyanes dans un support acétique qui améliore leur stabilité. Le rob de sureau (jus concentré par cuisson lente) est un classique de la médecine populaire — 1 à 2 cuillerées à soupe par jour en automne-hiver.
XIV. Racines et rhizomes anti-inflammatoires
Plusieurs racines et rhizomes de plantes sauvages européennes possèdent des propriétés anti-inflammatoires spécifiques, souvent liées à des molécules différentes de celles des feuilles et des fruits.
La racine de bardane (Arctium lappa) contient de l’arctiine et de l’arctigenine, deux lignanes qui inhibent NF-κB et la production de NO par iNOS (Zhao et al., 2009, Biochemical Pharmacology). L’arctigenine inhibe aussi la production d’IL-6 et de MCP-1 (monocyte chemoattractant protein-1) dans les adipocytes — un effet pertinent pour l’inflammation liée à l’obésité. La racine de bardane contient aussi de l’inuline (jusqu’à 50 % de la masse sèche en automne — la plus forte concentration de toutes les plantes européennes), des acides chlorogéniques et des polyacétylènes antifongiques et anti-tumoraux.
La racine de réglisse (Glycyrrhiza glabra) contient de la glycyrrhizine (3 à 5 % de la masse sèche), un saponoside triterpénique dont le métabolite, l’acide glycyrrhétinique, inhibe la 11β-hydroxystéroïde déshydrogénase de type 2 (11β-HSD2) — l’enzyme qui inactive le cortisol en cortisone dans les tissus périphériques. En bloquant cette enzyme, la réglisse augmente la concentration locale de cortisol actif, mimant l’effet d’un corticoïde exogène. C’est un mécanisme anti-inflammatoire puissant, mais qui impose des précautions : la consommation excessive de réglisse peut provoquer une hypertension, une hypokaliémie et des œdèmes par rétention sodée (effet minéralocorticoïde). La dose maximale recommandée est de 3 g de racine séchée par jour (soit 100 mg de glycyrrhizine), et la durée maximale d’utilisation continue est de 4 à 6 semaines.
La racine de guimauve (Althaea officinalis) contient 10 à 20 % de mucilages (arabinogalactanes, rhamnogalacturonanes) qui forment un gel protecteur sur les muqueuses enflammées. Ce gel physique — appelé effet mucilagineux ou émollient — réduit le contact direct entre les agents irritants et l’épithélium, diminuant l’activation des récepteurs de la douleur (nocicepteurs) et des récepteurs immunitaires (TLR). C’est un anti-inflammatoire « mécanique », complémentaire des anti-inflammatoires biochimiques. La guimauve contient aussi des flavonoïdes (hypolaetine-8-glucoside) qui inhibent la production de leucotriènes.
La racine de benoîte (Geum urbanum) contient de l’eugénol (le composé aromatique du clou de girofle, puissant inhibiteur de COX-2 et analgésique local) et des tanins ellagiques anti-inflammatoires. La racine de consoude (Symphytum officinale) contient de l’allantoïne (stimulant de la prolifération cellulaire et de la cicatrisation) et de l’acide rosmarinique — mais elle est réservée à l’usage externe en raison de sa teneur en alcaloïdes pyrrolizidiniques hépatotoxiques.
En décoction anti-inflammatoire départ à froid, le mélange de racines classique : placer 1 cuillerée à soupe de racine de bardane coupée, 1 cuillerée de racine de pissenlit, et 1 demi-cuillerée de racine de réglisse dans un litre d’eau froide. Porter à frémissement, laisser frémir doucement 15 minutes, couper le feu, infuser 10 minutes couvert, filtrer. Cette décoction riche en inuline, en lignanes et en glycyrrhizine se boit en 2 à 3 tasses par jour pendant 3 semaines, puis pause d’une semaine.
XV. Une journée anti-inflammatoire type
Voici un exemple de journée alimentaire intégralement basée sur les plantes sauvages et les aliments anti-inflammatoires, réaliste et réalisable au fil des saisons.
Au réveil — Un grand verre d’eau tiède avec le jus d’un demi-citron (acide citrique alcalinisant, vitamine C, limonène anti-inflammatoire). Si disponible, 50 gouttes de macérat de bourgeons de cassis (Ribes nigrum MG 1DH) directement sous la langue, pour l’effet cortisone-like matinal.
Petit déjeuner — Un bol de porridge de flocons d’avoine (bêta-glucanes immunomodulateurs) cuit dans du lait végétal, garni de myrtilles sauvages décongelées (anthocyanes), de cerneaux de noix concassés (oméga-3 ALA), d’une cuillerée à café de poudre d’ortie (quercétine, fer, silice), et d’un filet de miel de châtaignier (polyphénols). Une tasse de tisane thym-romarin-mélisse départ à froid.
En-cas matinal — Une poignée de noisettes sauvages (vitamine E, phytostérols) et quelques feuilles de plantain frais cueillies au jardin (aucubine, actéoside), grignotées crues.
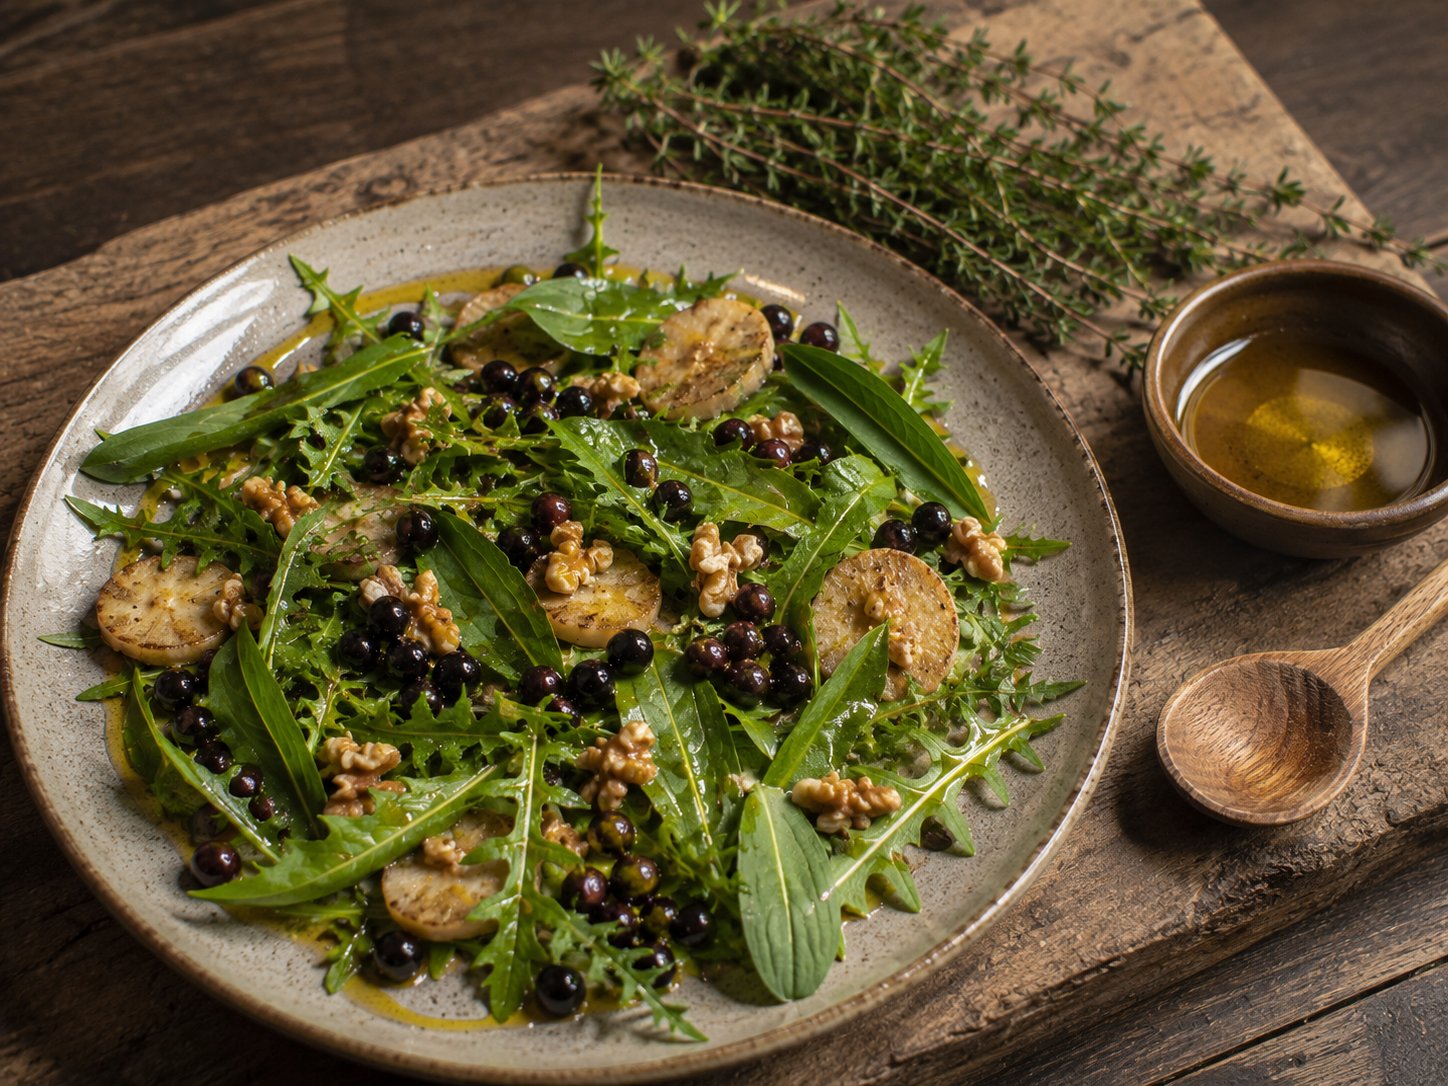
Déjeuner — Salade de jeunes feuilles de pissenlit et de roquette sauvage (sesquiterpènes lactones, isothiocyanates), assaisonnée d’huile de cameline (ALA, ratio oméga-6/oméga-3 de 0,5:1) et de vinaigre de sureau (anthocyanes, acide acétique). En plat, une soupe d’ortie et de pommes de terre (quercétine, chlorophylle, amidon résistant après refroidissement). En accompagnement, des légumes lactofermentés maison (probiotiques, acide lactique). En boisson, un litre d’infusion de feuilles de cassis départ à froid.
En-cas d’après-midi — Un fruit frais de saison. En automne-hiver, 1 cuillerée à soupe de rob de sureau ou de confiture de cynorrhodons (vitamine C, anthocyanes) sur une galette de sarrasin.
Dîner — Pesto d’ail des ours et de noix sur des pâtes au sarrasin (l’ail des ours contient de l’allicine anti-inflammatoire, de la quercétine et des composés soufrés). Ou bien : gratin de feuilles de berce des prés (Heracleum sphondylium — riche en furanocoumarines à dose modérée, en vitamine C et en minéraux) avec des racines de bardane sautées à l’huile d’olive et au romarin. En dessert, des prunelles lactofermentées ou quelques carrés de chocolat noir à 85 % (flavanols de cacao, magnésium). En tisane du soir, reine-des-prés et mélisse départ à froid (salicylates, acide rosmarinique, effet sédatif léger de la mélisse).
Ce menu fournit, sans effort particulier, plus de 1 000 mg de polyphénols par jour (contre 300 à 500 mg pour un régime français moyen), un ratio oméga-6/oméga-3 de 2:1 à 3:1 (contre 15:1 dans l’alimentation occidentale standard), une abondance de fibres prébiotiques (inuline, bêta-glucanes, pectines), et une diversité de probiotiques vivants (lactofermentation). C’est un régime anti-inflammatoire complet, gratuit en grande partie (cueillette), et savoureux.
XVI. Modes de préparation qui préservent les principes actifs
La manière dont on prépare les plantes anti-inflammatoires détermine en grande partie leur efficacité. Certains principes actifs sont fragiles et perdus par une cuisson inadaptée ; d’autres sont au contraire libérés ou activés par la transformation.
Le départ à froid est la règle fondamentale pour les tisanes. Plonger des plantes dans de l’eau déjà bouillante détruit instantanément les composés volatils (salicylaldéhyde de la reine-des-prés, thymol du thym, cinéole du romarin) et dénature une partie des polyphénols thermosensibles. En partant de l’eau froide et en montant progressivement à frémissement (85-90 °C), on extrait davantage de principes actifs avec une dégradation minimale. Le temps d’infusion après coupure du feu complète l’extraction des molécules plus lourdes (tanins, mucilages, saponines).
La macération à froid (plantes dans l’eau froide pendant 4 à 12 heures, sans chauffage) est optimale pour les mucilages (guimauve, plantain, mauve) et pour les plantes très riches en vitamines thermosensibles (cynorrhodon, ortie fraîche). Les mucilages se dissolvent mieux à froid qu’à chaud — la chaleur provoque leur gélification précoce qui emprisonne les polyphénols.
La décoction (frémissement prolongé 10-20 minutes) est réservée aux parties dures : racines (bardane, pissenlit, réglisse, guimauve), écorces (saule, chêne), graines (fenouil, chardon-Marie). Les molécules de ces tissus lignifiés nécessitent une extraction prolongée pour diffuser dans l’eau.
La cuisson courte à basse température (vapeur douce, poêlage rapide) préserve 70 à 90 % des polyphénols des feuilles sauvages. La cuisson à l’eau bouillante fait passer une partie des polyphénols hydrosolubles dans l’eau de cuisson — il faut donc consommer le bouillon (soupe d’ortie = feuilles + bouillon = 100 % des polyphénols). La cuisson au four à haute température (> 180 °C) et la friture détruisent 50 à 80 % des anthocyanes et des flavonoïdes.
Les corps gras améliorent l’absorption des polyphénols lipophiles (quercétine, acide rosmarinique, caroténoïdes). Assaisonner une salade de pissenlit avec de l’huile de cameline multiplie par 3 à 5 l’absorption de la quercétine et du bêta-carotène. Les acides (vinaigre, citron) stabilisent les anthocyanes, qui sont instables en milieu neutre ou alcalin — ajouter du vinaigre de sureau aux baies sauvages préserve leur couleur et leur activité.
La fermentation transforme et potentialise les polyphénols. Les bactéries lactiques hydrolysent les glycosides de flavonoïdes en aglycones libres, plus absorbables. Elles produisent aussi des métabolites originaux (acides phényllactiques, acides indolactiques) aux propriétés anti-inflammatoires propres. Le chénopode lactofermenté est plus anti-inflammatoire que le chénopode frais — la fermentation a libéré la quercétine de ses glycosides et réduit les oxalates pro-inflammatoires.
Le séchage à l’ombre (20-35 °C, ventilé, à l’abri du soleil) préserve 80 à 95 % des polyphénols. Le séchage au soleil direct détruit les anthocyanes et oxyde les composés phénoliques (brunissement). Le séchage au four (> 40 °C) accélère la perte de composés volatils. La lyophilisation est la méthode optimale mais inaccessible au particulier.
Le broyage en poudre (moulin à café) augmente la surface de contact et donc la biodisponibilité des composés — mais il accélère aussi l’oxydation. La poudre de plantes séchées doit être consommée dans les 3 mois et stockée dans un récipient hermétique opaque, au frais.
XVII. Précautions et contre-indications
L’alimentation anti-inflammatoire à base de plantes sauvages est globalement très sûre — elle est, par nature, plus proche de l’alimentation ancestrale que du régime industriel qui provoque l’inflammation. Néanmoins, certaines précautions s’imposent.
Les interactions médicamenteuses sont la principale préoccupation. La reine-des-prés et le saule (salicylates) ne doivent pas être associés aux anticoagulants (warfarine, acénocoumarol) ni aux antiagrégants plaquettaires (aspirine à dose cardiologique, clopidogrel) — risque hémorragique additif. La réglisse interagit avec les antihypertenseurs (elle augmente la pression artérielle), les diurétiques (elle aggrave la perte de potassium), les digitaliques (l’hypokaliémie potentialise la toxicité de la digoxine) et les corticoïdes (effets additifs). Le millepertuis (Hypericum perforatum), parfois utilisé comme anti-inflammatoire, est un puissant inducteur du cytochrome P450 3A4 et interagit avec de très nombreux médicaments — il est hors sujet dans cette monographie alimentaire mais mérite d’être mentionné comme piège potentiel.
Les oxalates de certaines plantes sauvages (oseille, chénopode, pourpier, épinard sauvage) sont pro-inflammatoires à haute dose et contre-indiqués chez les personnes souffrant de calculs rénaux d’oxalate de calcium ou d’insuffisance rénale. La cuisson et la lactofermentation réduisent la teneur en oxalates de 30 à 70 %.
Les furanocoumarines de la berce des prés (Heracleum sphondylium) sont photosensibilisantes : la consommation de berce combinée à une exposition solaire intense peut provoquer des réactions cutanées. Ce risque est minime aux doses alimentaires habituelles mais existe en cas de consommation excessive ou d’application du jus sur la peau. Ne jamais confondre avec la berce du Caucase (H. mantegazzianum), extrêmement dangereuse.
L’identification botanique rigoureuse est un préalable absolu. Certaines plantes toxiques ressemblent à des comestibles : la grande ciguë (Conium maculatum) peut être confondue avec le cerfeuil sauvage, le colchique (Colchicum autumnale) avec l’ail des ours, l’aconit (Aconitum napellus) avec la berce. La règle d’or : ne jamais consommer une plante qu’on n’a pas identifiée avec une certitude absolue, en vérifiant tous les critères diagnostiques (feuilles, tige, fleur, odeur, habitat).
Les femmes enceintes doivent éviter la reine-des-prés (salicylates tératogènes), la réglisse (effet minéralocorticoïde, risque de prématurité), la sauge officinale (thuyone neurotoxique à dose élevée) et le romarin à forte dose (effet emménagogue). Les tisanes d’ortie et de plantain sont en revanche considérées comme sûres pendant la grossesse.
Les allergies croisées sont possibles. Les personnes allergiques aux Astéracées (ambroisie, armoise, marguerite) peuvent réagir au pissenlit, à la chicorée, à l’achillée et à la camomille. Les personnes allergiques aux salicylates réagiront à la reine-des-prés et au saule.
Enfin, l’alimentation anti-inflammatoire ne remplace pas un traitement médical. Les maladies inflammatoires chroniques (polyarthrite rhumatoïde, maladie de Crohn, lupus, spondylarthrite) nécessitent un suivi médical et souvent des traitements immunomodulateurs que l’alimentation peut compléter — mais pas remplacer.
XVIII. Synthèse
L’inflammation chronique de bas grade est le terrain commun des maladies de civilisation. Elle est alimentée par l’alimentation industrielle (sucres raffinés, excès d’oméga-6, produits ultra-transformés, additifs, acides gras trans), le stress chronique, la sédentarité et l’appauvrissement du microbiote. Elle se mesure par des biomarqueurs accessibles (CRP-us, IL-6, ferritine) et se module puissamment par l’alimentation.
Les plantes sauvages européennes constituent un arsenal anti-inflammatoire d’une richesse exceptionnelle, agissant simultanément sur tous les niveaux de la cascade inflammatoire. Les polyphénols (quercétine, acide rosmarinique, acide chlorogénique, anthocyanes) inhibent NF-κB, COX-2, 5-LOX et piègent les ROS. Les acides gras oméga-3 (ALA du pourpier, du mouron, de la cameline) fournissent les précurseurs des résolvines et des protectines qui organisent la résolution de l’inflammation. Les sesquiterpènes lactones (pissenlit, chicorée, achillée) alkylent directement NF-κB. Les salicylates naturels (reine-des-prés, saule) inhibent COX avec protection gastrique intégrée. Les lignanes (bardane) et la glycyrrhizine (réglisse) modulent le cortisol endogène. Les mucilages (plantain, guimauve) protègent physiquement les muqueuses enflammées. Les fibres prébiotiques (inuline de bardane, de pissenlit, de chicorée) nourrissent les bactéries productrices de butyrate anti-inflammatoire. Les probiotiques des aliments lactofermentés restaurent la barrière intestinale et réduisent la translocation de LPS.
Cette polyvalence est la force de l’approche végétale par rapport à l’approche pharmaceutique. Un anti-inflammatoire de synthèse cible une enzyme (COX pour les AINS, 5-LOX pour le zileuton, TNF-α pour les anti-TNF biologiques). Un repas à base de plantes sauvages cible simultanément NF-κB, COX, LOX, iNOS, les ROS, le microbiote, la barrière intestinale, le cortisol endogène et les médiateurs de résolution — avec une synergie entre les centaines de molécules présentes dans chaque plante.
Les plantes sauvages les plus puissantes, à intégrer en priorité dans l’alimentation quotidienne, sont l’ortie (quercétine, fer, silice — la plus polyvalente), la reine-des-prés (salicylates — la plus ciblée sur la douleur), le cassis (cortisone-like, anthocyanes — le plus puissant en gemmothérapie), le plantain (aucubine, actéoside — le plus spécifique des muqueuses), le pissenlit (sesquiterpènes lactones, inuline — le plus accessible), le sureau (anthocyanes — le plus riche en pigments protecteurs) et les Lamiacées aromatiques (acide rosmarinique — les plus agréables à cuisiner). L’huile de cameline et le pourpier corrigent le ratio oméga-6/oméga-3. Les racines de bardane et les aliments lactofermentés restaurent le microbiote.
L’inflammation n’est pas une fatalité. C’est une réponse biologique que chaque repas peut amplifier ou éteindre. Les plantes sauvages, adaptées par des millions d’années de coévolution avec les mammifères herbivores, offrent exactement les molécules dont notre système immunitaire a besoin pour fonctionner en équilibre — ni trop, ni trop peu. L’alimentation anti-inflammatoire à base de plantes sauvages n’est pas un régime à la mode. C’est un retour à l’alimentation humaine ancestrale — celle qui a façonné notre génome, notre microbiote et notre système immunitaire.
Bibliographie
- Calder, P. C. (2006). n-3 Polyunsaturated fatty acids, inflammation, and inflammatory diseases. American Journal of Clinical Nutrition, 83(6), 1505S-1519S.
- Serhan, C. N. (2014). Pro-resolving lipid mediators are leads for resolution physiology. Nature, 510(7503), 92-101.
- Riehemann, K. et al. (1999). Plant extracts from stinging nettle (Urtica dioica), an antirheumatic remedy, inhibit the proinflammatory transcription factor NF-κB. FEBS Letters, 442(1), 89-94.
- Randall, C. et al. (2000). Randomized controlled trial of nettle sting for treatment of base-of-thumb pain. Journal of the Royal Society of Medicine, 93(6), 305-309.
- Garbacki, N. et al. (2004). Inhibitors of TNF-α production and NF-κB activation from Ribes nigrum leaves. Journal of Ethnopharmacology, 93(2-3), 159-167.
- Seeram, N. P. et al. (2001). Cyclooxygenase inhibitory and antioxidant cyanidin glycosides in cherries and berries. Phytomedicine, 8(5), 362-369.
- Jeon, H. J. et al. (2008). Anti-inflammatory activity of Taraxacum officinale. International Immunopharmacology, 8(8), 1050-1056.
- Zhao, F. et al. (2009). Arctigenin exerts anti-inflammatory effects in human endothelial cells. Biochemical Pharmacology, 77(7), 1187-1194.
- Petersen, M. & Simmonds, M. S. J. (2003). Rosmarinic acid. Phytochemistry, 62(2), 121-125.
- Jeong, H. J. et al. (1999). Inhibition of TNF-α and IL-6 production by aucubin through blockade of NF-κB activation in RBL-2H3 mast cells. Planta Medica, 65(6), 533-535.
- Spencer, J. P. E. (2010). The impact of fruit flavonoids on memory and cognition. British Journal of Nutrition, 104(S3), S40-S47.
- Shivappa, N. et al. (2014). Designing and developing a literature-derived, population-based dietary inflammatory index. Public Health Nutrition, 17(8), 1689-1696.
- Cardona, F. et al. (2013). Benefits of polyphenols on gut microbiota and implications in human health. Journal of Nutritional Biochemistry, 24(8), 1415-1422.
- Chrubasik, S. et al. (1997). Evidence for antirheumatic effectiveness of Herba Urticae dioicae in acute arthritis: a pilot study. Phytomedicine, 4(2), 105-108.
- Kolehmainen, M. et al. (2012). Bilberries reduce low-grade inflammation in individuals with features of metabolic syndrome. Molecular Nutrition & Food Research, 56(10), 1501-1510.
Avertissement — Cet article est proposé à titre informatif et éducatif. Il ne constitue en aucun cas un avis médical. Les plantes sauvages contiennent des principes actifs puissants qui peuvent interagir avec des médicaments ou être contre-indiqués dans certaines situations. Consultez un professionnel de santé qualifié avant d’utiliser des plantes à des fins thérapeutiques, en particulier si vous prenez des médicaments, si vous êtes enceinte ou si vous souffrez d’une maladie chronique. L’identification certaine des plantes sauvages par un botaniste compétent est un préalable indispensable à toute cueillette.