La carence en fer est la déficience nutritionnelle la plus répandue au monde — elle touche deux milliards de personnes, dont 10 à 15 % des femmes en âge de procréer en Europe. La réponse classique est la viande rouge, riche en fer héminique hautement biodisponible. Mais que faire quand on ne mange pas ou peu de viande ? Et que faire quand les légumes cultivés, sélectionnés pour la taille et la douceur, ont perdu une grande partie de leur fer au fil de la domestication ? La réponse est dans le terrain. L’ortie contient 4 à 8 mg de fer pour 100 g de feuilles fraîches — deux à quatre fois plus que les épinards cultivés. Le pissenlit en contient 3 à 4 mg, le chénopode blanc 3 à 5 mg, la pariétaire 4 à 6 mg. Mais la teneur en fer d’un aliment ne dit pas grand-chose sur la quantité réellement absorbée. Le fer végétal (non héminique) est piégé par les phytates, les tanins, les oxalates et les polyphénols — et libéré par la vitamine C, les acides organiques et la fermentation. Comprendre cette chimie de l’absorption est la clé pour transformer les plantes sauvages en sources de fer efficaces. Cette monographie explore la biochimie du fer alimentaire, les plantes sauvages les plus riches, les inhibiteurs et les facilitateurs de l’absorption, et les stratégies concrètes pour optimiser l’apport en fer par les végétaux.
II. Fer héminique et fer non héminique
III. Mécanismes d’absorption intestinale
IV. Les plantes sauvages les plus riches en fer
V. L’ortie : la championne verte
VI. Pissenlit, rumex, pariétaire
VII. Les inhibiteurs de l’absorption du fer
VIII. Phytates et tanins : les pièges à fer
IX. La vitamine C : le grand facilitateur
X. Acides organiques et fermentation
XI. Cuisson en fonte et fer exogène
XII. La carence en fer : signes et diagnostic
XIII. Besoins quotidiens et populations à risque
XIV. Stratégies d’optimisation au quotidien
XV. Recettes riches en fer biodisponible
XVI. Surcharge en fer : l’excès inverse
XVII. Précautions et contre-indications
XVIII. Synthèse
I. Le fer : un oligoélément vital
Le fer est le quatrième élément le plus abondant de la croûte terrestre, mais dans l’organisme humain, il n’est présent qu’en quantité infime : 3 à 5 g au total chez un adulte, soit l’équivalent d’un petit clou. Cette quantité minuscule est pourtant indispensable à la vie — le fer participe à des fonctions biologiques si fondamentales que son absence est incompatible avec la survie cellulaire.
Le fer est le cœur fonctionnel de l’hémoglobine — la protéine des globules rouges qui transporte l’oxygène des poumons vers les tissus. Chaque molécule d’hémoglobine contient quatre atomes de fer, chacun capable de lier réversiblement une molécule d’O₂. Sans fer, pas de transport d’oxygène, pas de respiration cellulaire. Environ 65 % du fer corporel se trouve dans l’hémoglobine.
Le fer est aussi un composant essentiel de la myoglobine (protéine de stockage de l’oxygène dans les muscles — 10 % du fer corporel), des cytochromes de la chaîne respiratoire mitochondriale (qui produisent l’ATP, l’énergie cellulaire), de la catalase et de la peroxydase (enzymes antioxydantes), et de nombreuses enzymes impliquées dans la synthèse de l’ADN, la neurotransmission (synthèse de la dopamine, de la sérotonine, de la noradrénaline) et la fonction immunitaire.
Le fer est stocké sous forme de ferritine (protéine de stockage intracellulaire — principalement dans le foie, la rate et la moelle osseuse) et transporté dans le sang lié à la transferrine (protéine de transport plasmatique). Le dosage de la ferritine sérique est le meilleur indicateur des réserves en fer de l’organisme : une ferritine basse (<30 µg/L) indique un épuisement des réserves ; une ferritine très basse (<15 µg/L) indique une carence en fer avérée.
L’organisme humain n’a pas de mécanisme actif d’excrétion du fer. Les pertes sont uniquement passives : desquamation des cellules intestinales (1 mg/jour), transpiration, pertes urinaires et, chez la femme, menstruations (15 à 30 mg de fer perdu par cycle). L’équilibre en fer dépend donc entièrement de la régulation de l’absorption intestinale — un mécanisme finement contrôlé par l’hepcidine, une hormone peptidique hépatique qui agit comme le thermostat du fer : quand les réserves sont pleines, l’hepcidine bloque l’absorption ; quand elles sont basses, l’hepcidine diminue et l’absorption augmente.
II. Fer héminique et fer non héminique
Le fer alimentaire existe sous deux formes chimiques radicalement différentes en termes de biodisponibilité.
Le fer héminique est le fer incorporé dans un noyau porphyrique (hème) — la même structure que l’on trouve dans l’hémoglobine et la myoglobine. Il est présent exclusivement dans les aliments d’origine animale : viande rouge (2 à 4 mg/100 g), abats (foie de bœuf : 7 mg/100 g), volaille, poisson, fruits de mer. Son absorption est élevée et constante : 15 à 35 % du fer héminique ingéré est absorbé, et cette absorption est très peu influencée par les autres composants du repas (phytates, tanins, calcium). L’hème est absorbé intact par un transporteur spécifique (HCP1) de l’entérocyte duodénal, puis le fer est libéré de l’hème par l’hème oxygénase intracellulaire.
Le fer non héminique est le fer sous forme ionique (Fe²⁺ ou Fe³⁺), libre ou lié à des composants de la matrice alimentaire. Il est présent dans tous les aliments — végétaux et animaux — mais c’est la forme exclusive du fer des plantes. Son absorption est faible et très variable : 2 à 20 % selon le contexte alimentaire. Cette variabilité énorme (un facteur 10) est la raison pour laquelle la teneur en fer d’un aliment végétal ne prédit que très mal la quantité réellement absorbée.
L’absorption du fer non héminique dépend de son état d’oxydation. Le fer ferreux (Fe²⁺) est soluble et absorbé par le transporteur DMT1 (Divalent Metal Transporter 1) de la membrane apicale de l’entérocyte. Le fer ferrique (Fe³⁺) est insoluble à pH neutre et doit être réduit en Fe²⁺ par la réductase ferrique (DcytB, Duodenal cytochrome b) avant d’être absorbé. Le pH acide de l’estomac favorise la solubilité du Fe³⁺ — c’est pourquoi les antiacides (inhibiteurs de la pompe à protons) réduisent l’absorption du fer.
En pratique, dans un régime alimentaire occidental mixte (viande + végétaux), le fer héminique fournit environ un tiers du fer absorbé malgré une contribution de seulement 10 à 15 % du fer ingéré total. Le fer non héminique, bien que représentant 85 à 90 % du fer ingéré, ne fournit que deux tiers du fer absorbé en raison de sa faible biodisponibilité.
III. Mécanismes d’absorption intestinale
L’absorption du fer se déroule principalement dans le duodénum et la partie proximale du jéjunum — les 30 premiers centimètres de l’intestin grêle. C’est une zone à pH encore acide (pH 5 à 6) qui favorise la solubilité du fer.
Pour le fer non héminique, le processus comporte trois étapes. Premièrement, le fer Fe³⁺ de l’aliment est solubilisé par l’acidité gastrique et maintenu en solution par des ligands alimentaires (acide ascorbique, acides organiques, acides aminés). En l’absence de ces ligands, le fer Fe³⁺ précipite sous forme d’hydroxydes insolubles dès que le pH remonte dans le duodénum — il devient alors indisponible. Deuxièmement, le fer Fe³⁺ soluble est réduit en Fe²⁺ par la réductase DcytB à la surface de l’entérocyte. Troisièmement, le Fe²⁺ est transporté à travers la membrane apicale par DMT1, puis à travers la membrane basolatérale par la ferroportine (le seul exportateur de fer connu), oxydé en Fe³⁺ par l’héphaestine et chargé sur la transferrine plasmatique pour être distribué aux tissus.
L’hepcidine, synthétisée par le foie, régule l’ensemble du système. Quand les réserves en fer sont suffisantes ou en cas d’inflammation, l’hepcidine augmente et provoque l’internalisation et la dégradation de la ferroportine — le fer reste piégé dans l’entérocyte et est perdu quand la cellule est éliminée (renouvellement tous les 3 à 5 jours). Quand les réserves sont basses ou en cas d’hypoxie, l’hepcidine diminue, la ferroportine reste fonctionnelle et le fer est exporté vers le sang.
Ce mécanisme explique pourquoi les personnes carencées absorbent le fer beaucoup plus efficacement que les personnes non carencées — l’hepcidine basse maximise l’absorption. C’est une adaptation homéostatique remarquable qui compense partiellement la faible biodisponibilité du fer végétal chez les personnes qui en ont le plus besoin.
IV. Les plantes sauvages les plus riches en fer
Les plantes sauvages, non sélectionnées pour la tendreté et poussant dans des sols naturels non appauvris, contiennent généralement plus de fer que leurs équivalents cultivés. Voici un classement des plantes sauvages européennes les plus riches en fer (mg de fer pour 100 g de feuilles fraîches) :
— Ortie (Urtica dioica) : 4 à 8
— Pariétaire (Parietaria officinalis) : 4 à 6
— Chénopode blanc (Chenopodium album) : 3 à 5
— Amarante réfléchie (Amaranthus retroflexus) : 3 à 5
— Pissenlit (Taraxacum officinale) : 3 à 4
— Plantain lancéolé (Plantago lanceolata) : 2 à 4
— Rumex — patience (Rumex patientia) : 2 à 4
— Mouron des oiseaux (Stellaria media) : 2 à 3
— Mauve sylvestre (Malva sylvestris) : 2 à 3
À titre de comparaison :
— Épinard cultivé : 2,7
— Laitue iceberg : 0,4
— Brocoli : 0,7
L’ortie est la star incontestée : avec 4 à 8 mg de fer pour 100 g, elle surpasse tous les légumes-feuilles cultivés et se rapproche des valeurs de la viande rouge (2 à 4 mg/100 g de bœuf). Une assiette de soupe d’ortie (150 g de feuilles fraîches) fournit 6 à 12 mg de fer — soit 35 à 70 % des besoins quotidiens d’un homme adulte et 25 à 50 % de ceux d’une femme.
Ces teneurs varient selon le sol (les sols acides, riches en fer biodisponible, produisent des plantes plus riches), la saison (les jeunes pousses printanières sont plus concentrées), l’altitude et le stade de développement de la plante.
V. L’ortie : la championne verte
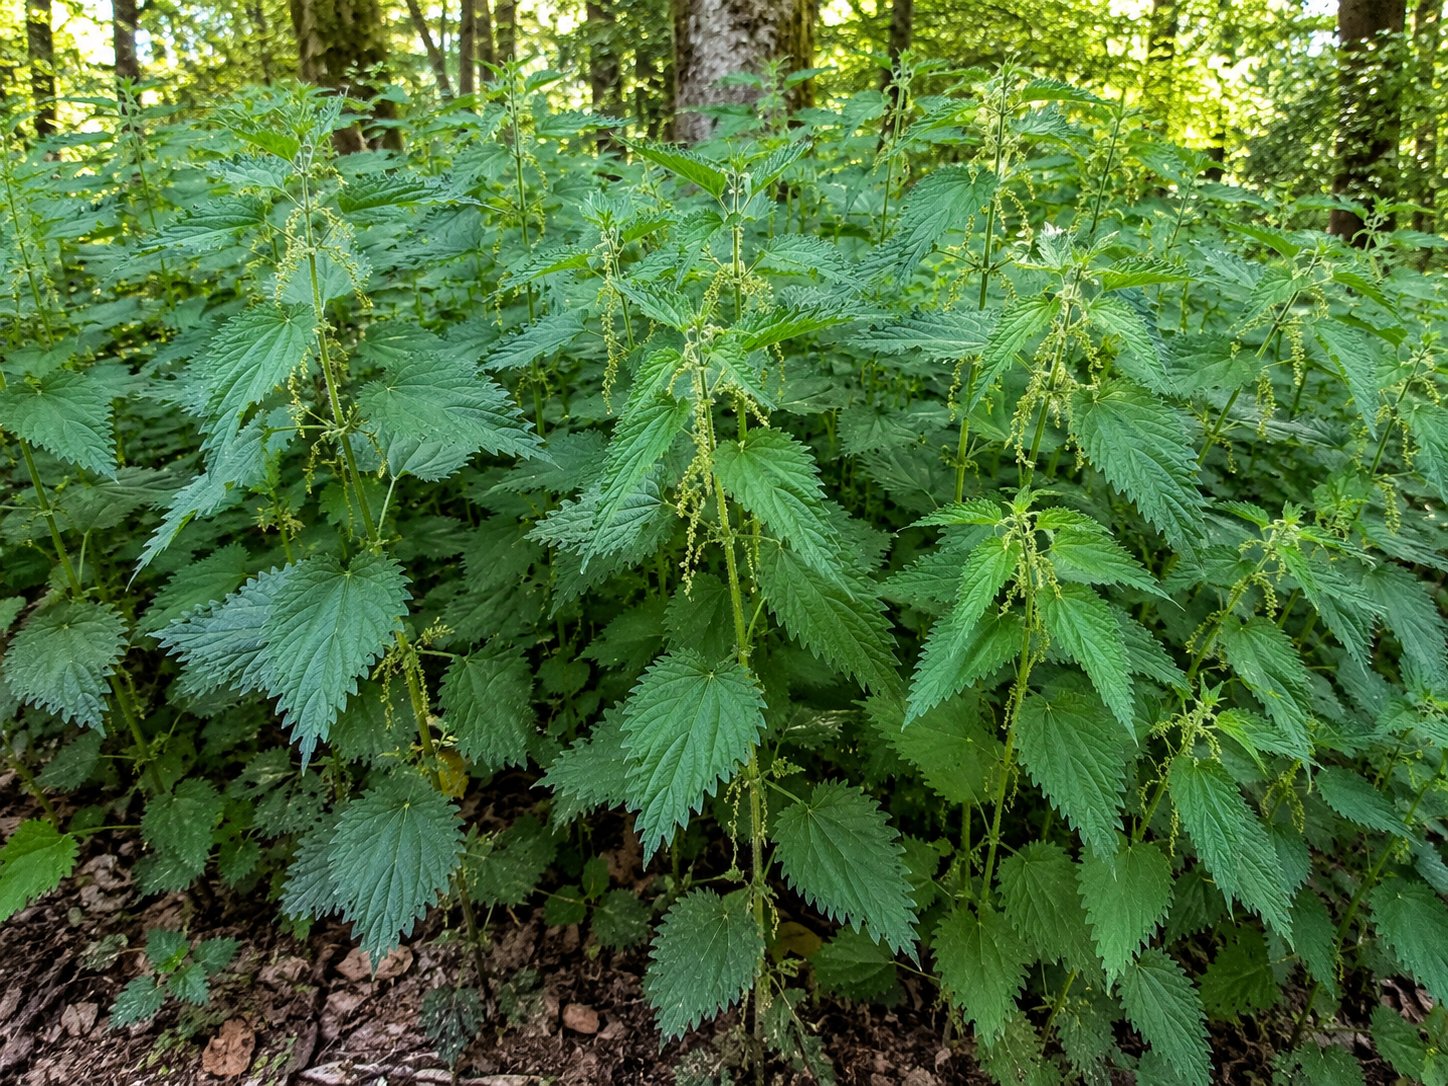
L’ortie (Urtica dioica L., Urticacées) mérite une section à part. Elle est non seulement la plante sauvage la plus riche en fer d’Europe, mais aussi l’une des plantes les plus complètes sur le plan nutritionnel — un véritable multivitamine naturel.
Outre le fer (4-8 mg/100 g), l’ortie contient du calcium (480 mg/100 g — six fois plus que le lait), du magnésium (71 mg/100 g), du potassium (334 mg/100 g), du silicium (sous forme d’acide silicique soluble — bénéfique pour les os, les cartilages, les cheveux et les ongles), de la vitamine C (80 à 120 mg/100 g dans les feuilles fraîches), de la vitamine A (sous forme de bêta-carotène : 2,6 mg/100 g), des vitamines B (B2, B5, B9), de la vitamine K (500 µg/100 g — l’une des sources végétales les plus concentrées) et des protéines (5 à 7 g/100 g de feuilles fraîches — remarquable pour un légume-feuille).
Le profil de l’ortie est particulièrement intéressant pour l’absorption du fer : elle contient simultanément du fer ET de la vitamine C en quantité élevée — la vitamine C facilite l’absorption du fer non héminique en le réduisant de Fe³⁺ en Fe²⁺. L’ortie porte son propre facilitateur d’absorption. De plus, elle contient peu de tanins et peu de phytates (qui sont surtout présents dans les graines, pas dans les feuilles), ce qui limite les inhibiteurs d’absorption.
L’ortie se récolte d’avril à octobre, en coupant les sommités (les 4 à 6 premières feuilles — les plus tendres et les plus concentrées en nutriments). Porter des gants épais — les poils urticants contiennent de l’histamine, de l’acétylcholine et de l’acide formique qui provoquent la brûlure caractéristique. La cuisson (2 à 3 minutes à la vapeur, en soupe ou blanchie) détruit instantanément les poils urticants.
Tisane d’ortie. 30 g de feuilles fraîches (ou 15 g de feuilles séchées) dans 1 L d’eau froide. Porter à frémissement, couper le feu immédiatement, laisser infuser 15 minutes, filtrer. Boire 2 à 3 tasses par jour. Cette tisane fournit une partie du fer soluble de l’ortie (le fer passe partiellement dans l’eau d’infusion) et la totalité de la vitamine C si l’on ne fait pas bouillir longtemps.
VI. Pissenlit, rumex, pariétaire
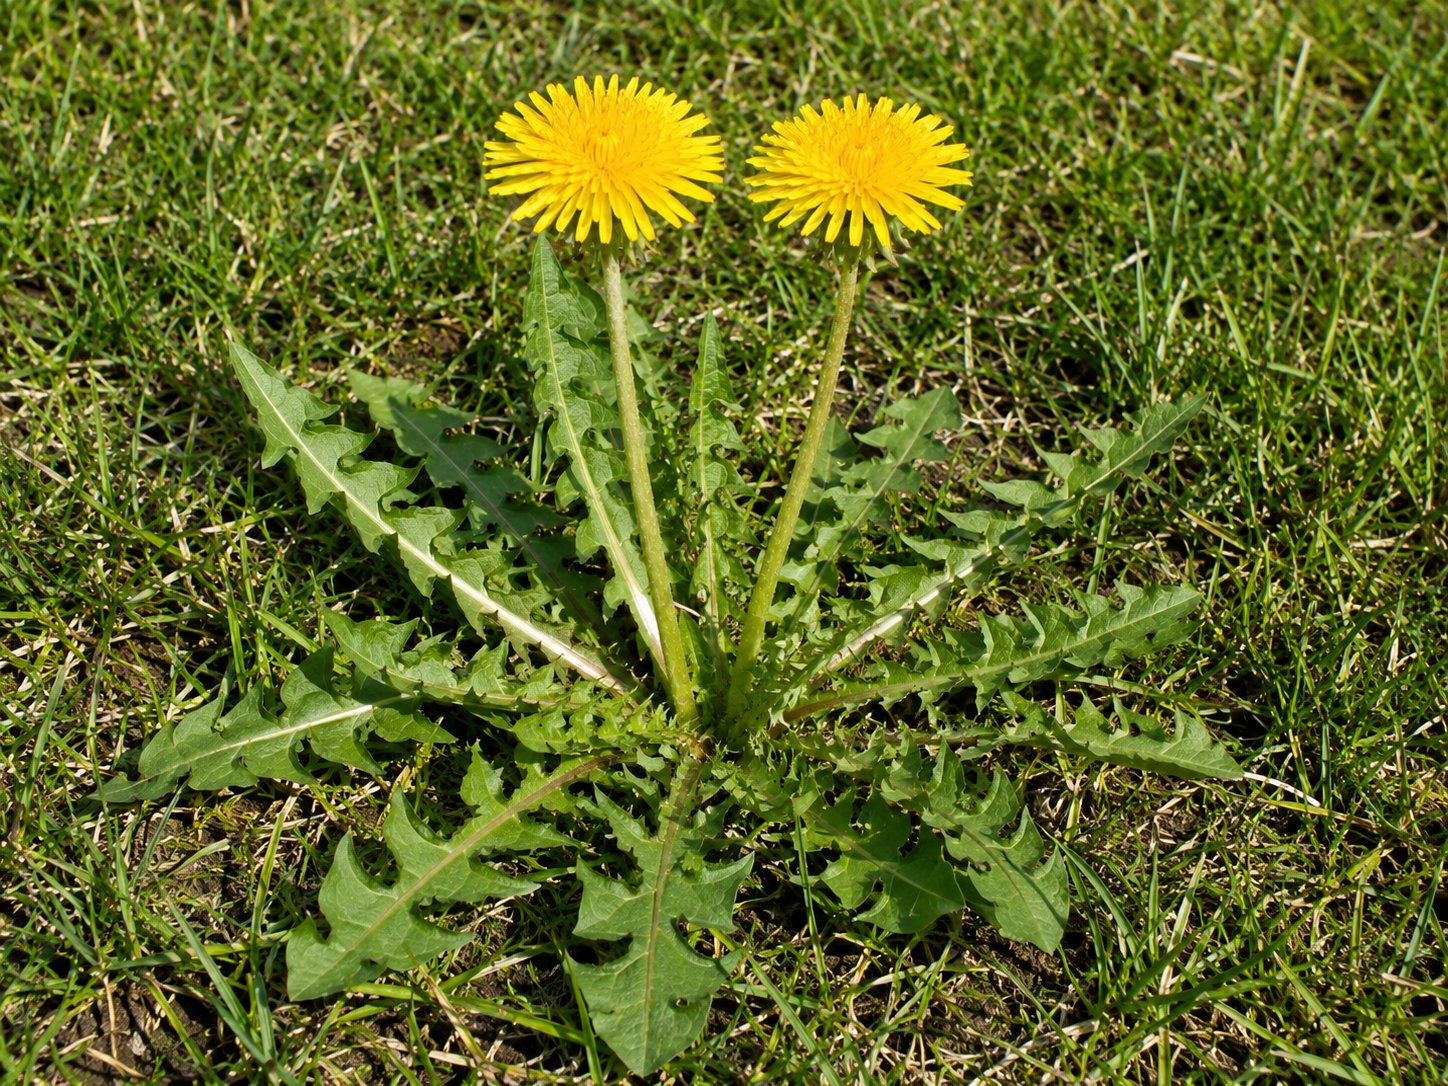
Le pissenlit (Taraxacum officinale) est une source de fer modérée mais très accessible (3-4 mg/100 g de feuilles). Ses feuilles se consomment crues en salade (les jeunes feuilles du centre de la rosette sont les moins amères) ou cuites. La racine, riche en inuline, contribue indirectement à l’absorption du fer : l’inuline, en étant fermentée par le microbiote colique en acides gras à chaîne courte, acidifie le milieu intestinal et augmente la solubilité du fer dans le côlon, permettant une absorption colique du fer qui complète l’absorption duodénale (Yeung et al., 2005).
Le rumex à feuilles obtuses (Rumex obtusifolius) et la patience (Rumex patientia) sont des plantes vivaces robustes à grandes feuilles basales ovales, communes dans les prairies humides, les fossés et les terrains vagues. Leurs feuilles contiennent 2 à 4 mg de fer pour 100 g — mais aussi des oxalates en quantité significative (voir article précédent). Pour les personnes sujettes aux calculs rénaux, cuire les feuilles et jeter l’eau de cuisson (les oxalates solubles passent dans l’eau). La patience (R. patientia) est moins riche en oxalates que l’oseille (R. acetosa) et constitue un meilleur choix comme légume de fer.
La pariétaire (Parietaria officinalis L., Urticacées) est une plante vivace à tiges cassantes et à petites feuilles ovales vert sombre, qui pousse sur les vieux murs, les ruines et les rochers dans le sud de la France. Elle est apparentée à l’ortie mais ne pique pas. Ses feuilles contiennent 4 à 6 mg de fer pour 100 g — un taux comparable à l’ortie. La pariétaire est aussi diurétique (elle contient du nitrate de potassium et des flavonoïdes) et était autrefois appelée « herbe de muraille » ou « casse-pierre » en raison de son usage traditionnel contre les calculs rénaux. Elle se consomme cuite en soupe ou en tisane (départ à froid, 30 g de plante fraîche par litre).
VII. Les inhibiteurs de l’absorption du fer
L’absorption du fer non héminique est une course d’obstacles. Plusieurs composants alimentaires forment avec le fer des complexes insolubles qui le rendent indisponible pour l’absorption. Ces inhibiteurs sont la raison principale pour laquelle le fer végétal est si mal absorbé.
L’acide phytique (IP6) est l’inhibiteur le plus puissant. Présent dans les graines, les céréales complètes et les légumineuses, il chélate le fer avec une affinité extrêmement élevée. Même de petites quantités de phytates (5 à 10 mg de phytate dans un repas) réduisent significativement l’absorption du fer. Les graines de chénopode, les glands de chêne et les graines d’ortie contiennent des phytates — mais les feuilles en contiennent très peu.
Les polyphénols et tanins sont le deuxième inhibiteur majeur. Les tanins du thé noir (acide tannique), du café (acide chlorogénique), du vin rouge (proanthocyanidines) et de nombreuses plantes sauvages (prunelles, cenelles, glands) forment avec le fer des complexes fer-polyphénol bleu-noir insolubles. Une tasse de thé noir bue pendant un repas réduit l’absorption du fer de 60 à 70 %. Une tasse de café la réduit de 40 %. Un verre de vin rouge la réduit de 60 %.
Le calcium inhibe l’absorption du fer héminique et non héminique — c’est le seul inhibiteur connu du fer héminique. Le mécanisme exact n’est pas complètement élucidé (probablement une compétition pour le transport intracellulaire dans l’entérocyte). Un apport de 300 à 600 mg de calcium dans un repas réduit l’absorption du fer de 30 à 50 %. En pratique : ne pas prendre un supplément de calcium en même temps qu’un repas riche en fer.
Les oxalates forment des complexes insolubles avec le fer, mais leur effet inhibiteur est moins puissant que celui des phytates et des polyphénols — l’acide oxalique a une affinité plus faible pour le fer que l’acide phytique.
Les protéines de soja (phytates + peptides spécifiques) inhibent fortement l’absorption du fer — le tofu et le lait de soja sont de mauvais véhicules pour le fer végétal.
VIII. Phytates et tanins : les pièges à fer
Le mécanisme de piégeage du fer par les phytates est chimiquement simple mais redoutablement efficace. L’acide phytique possède six groupements phosphate chargés négativement, chacun capable de lier un cation métallique divalent (Fe²⁺, Zn²⁺, Ca²⁺). À pH intestinal (pH 6 à 7), l’acide phytique forme avec le fer un complexe fer-phytate insoluble qui précipite dans la lumière intestinale et est éliminé dans les selles sans être absorbé.
L’effet inhibiteur des phytates est dose-dépendant et suit une courbe logarithmique : les premiers milligrammes de phytate ont l’effet inhibiteur le plus fort, puis l’effet se stabilise. Le rapport molaire phytate/fer est le meilleur prédicteur de l’absorption : un rapport phytate:fer <1:1 permet une absorption raisonnable ; un rapport >6:1 réduit l’absorption à moins de 5 % (Hurrell & Egli, 2010).
Les tanins piègent le fer par un mécanisme différent : les groupements hydroxyles des noyaux phénoliques forment des liaisons de coordination avec le Fe³⁺, produisant des complexes fer-polyphénol de couleur bleu-noir intense — c’est la même réaction chimique qui produisait l’encre ferro-gallique utilisée pendant des siècles pour l’écriture (noix de galle + sulfate de fer = encre noire). Ces complexes sont insolubles et non absorbables.
L’implication pratique est claire : pour optimiser l’absorption du fer des plantes sauvages, séparer les sources de fer des sources de tanins et de phytates. Concrètement : ne pas boire de thé, de café ou de vin rouge pendant ou dans l’heure qui suit un repas riche en fer végétal. Ne pas combiner des graines riches en phytates (céréales complètes, graines de chénopode) avec des feuilles riches en fer dans le même repas — ou alors, ajouter un puissant facilitateur (vitamine C) pour contrebalancer l’effet inhibiteur.
IX. La vitamine C : le grand facilitateur
L’acide ascorbique (vitamine C) est le plus puissant facilitateur connu de l’absorption du fer non héminique. Son effet est spectaculaire : l’ajout de 50 mg de vitamine C à un repas peut multiplier l’absorption du fer par 3 à 6 (Hallberg et al., 1989). L’ajout de 100 mg la multiplie par 4 à 8.
Le mécanisme est double. Premièrement, l’acide ascorbique réduit le fer Fe³⁺ (ferrique, insoluble à pH neutre) en Fe²⁺ (ferreux, soluble et absorbable par DMT1). Cette réduction est le facteur limitant de l’absorption du fer non héminique — la vitamine C lève ce verrou. Deuxièmement, l’acide ascorbique forme avec le fer ferreux un complexe chélate soluble (ascorbate de fer) qui reste en solution même à pH intestinal et qui résiste partiellement à l’effet inhibiteur des phytates et des tanins.
L’effet facilitateur de la vitamine C est suffisamment puissant pour contrebalancer l’effet des inhibiteurs. Dans une étude classique (Siegenberg et al., 1991), l’ajout de 50 mg de vitamine C à un repas contenant 250 mg de phytates a restauré l’absorption du fer au niveau d’un repas sans phytates. La vitamine C est le « contre-poison » universel des antinutriments du fer.
Les plantes sauvages riches en vitamine C sont donc les alliées naturelles du fer végétal. Le cynorrhodon (500-1700 mg/100 g), l’argousier (200-1300 mg/100 g), le cassis (150-200 mg/100 g), l’ortie fraîche (80-120 mg/100 g), la fraise des bois (80-120 mg/100 g) et le persil (130 mg/100 g) sont des sources de vitamine C exceptionnelles.
L’ortie est un cas idéal : elle contient à la fois le fer (4-8 mg/100 g) et la vitamine C (80-120 mg/100 g) dans le même aliment. C’est une combinaison fer + facilitateur intégrée — un « package » nutritionnel complet que l’on ne trouve dans aucun légume cultivé à ce niveau de concentration.
La vitamine C est thermosensible — elle se dégrade à la cuisson. Pour maximiser l’effet facilitateur : ajouter le jus de citron ou la purée de cynorrhodon après la cuisson, au moment de servir. Ou consommer un fruit riche en vitamine C (fraises des bois, cassis) en dessert du repas contenant le fer végétal.
X. Acides organiques et fermentation
Outre la vitamine C, d’autres acides organiques facilitent l’absorption du fer non héminique en le maintenant en solution à pH intestinal. L’acide citrique (citron, agrumes), l’acide malique (pomme), l’acide tartrique (raisin) et l’acide lactique (aliments fermentés) forment des chélates solubles avec le fer qui le protègent de la précipitation et de la liaison aux inhibiteurs.
L’acide citrique est le mieux documenté après l’acide ascorbique. L’ajout de jus de citron (contenant à la fois de l’acide citrique et de l’acide ascorbique) à un repas riche en fer végétal est probablement le geste nutritionnel le plus simple et le plus efficace pour améliorer l’absorption du fer.
La fermentation améliore la biodisponibilité du fer par plusieurs mécanismes. Les bactéries lactiques (Lactobacillus) produisent de l’acide lactique qui abaisse le pH de l’aliment et maintient le fer en solution. Elles produisent aussi de la phytase qui hydrolyse les phytates de l’aliment (réduction de 40 à 80 % des phytates dans le pain au levain par rapport au pain à la levure). Et elles produisent des acides organiques et des métabolites qui forment des chélates solubles avec le fer.
Les études cliniques confirment l’effet : le fer du pain au levain est 20 à 40 % mieux absorbé que celui du pain à la levure (Brune et al., 1992). Les légumes lactofermentés (choucroute, kimchi, légumes sauvages lactofermentés) ont une meilleure biodisponibilité en fer que les mêmes légumes frais ou cuits.
La germination agit par un mécanisme similaire : les phytases de la graine en germination hydrolysent les phytates, libérant le fer et le zinc. Les graines de chénopode germées, les lentilles germées ou les graines de lin germées ont une biodisponibilité en fer significativement supérieure à celle des graines sèches.
XI. Cuisson en fonte et fer exogène
Un fait peu connu : la cuisson dans des ustensiles en fonte augmente significativement la teneur en fer des aliments. Le fer métallique de la marmite ou de la poêle est solubilisé par l’acidité des aliments pendant la cuisson et passe dans la nourriture sous forme de fer non héminique absorbable.
L’augmentation est substantielle : une sauce tomate cuite 20 minutes dans une poêle en fonte contient 5 à 8 mg de fer pour 100 g, contre 0,6 mg quand elle est cuite dans une casserole en inox (Brittin & Nossaman, 1986). Un ragoût acide (vin, tomates, vinaigre) cuit longuement en cocotte en fonte peut multiplier sa teneur en fer par 10 à 20.
Ce phénomène a été exploité de manière ingénieuse au Cambodge par le projet Lucky Iron Fish : un petit poisson en fonte placé dans la marmite pendant la cuisson libère 6 à 9 mg de fer dans le bouillon — suffisant pour couvrir 75 % des besoins quotidiens. Des essais cliniques randomisés ont montré une réduction significative de l’anémie dans les populations qui utilisaient cet ustensile (Charles et al., 2015).
Pour les plantes sauvages, la cuisson en fonte est particulièrement pertinente. Une soupe d’ortie cuite 15 minutes dans une marmite en fonte, avec du jus de citron (milieu acide favorisant la dissolution du fer), fournit le fer de l’ortie plus le fer de la marmite — un double apport qui peut atteindre 10 à 15 mg de fer par portion.
Les poêles et marmites en fonte doivent être non émaillées pour libérer du fer (l’émail constitue une barrière). La fonte neuve libère plus de fer que la fonte ancienne patinée (le culottage crée une couche protectrice). Les aliments acides (tomate, citron, vin, vinaigre) dissolvent plus de fer que les aliments neutres.
XII. La carence en fer : signes et diagnostic
La carence en fer évolue en trois stades successifs. Le premier stade est l’épuisement des réserves : la ferritine sérique diminue (<30 µg/L) mais l'hémoglobine reste normale. Il n'y a pas de symptômes spécifiques — parfois une fatigue vague. Ce stade est fréquent et souvent non diagnostiqué.
Le deuxième stade est la carence en fer sans anémie (érythropoïèse ferriprive) : les réserves sont épuisées (ferritine <15 µg/L), le fer sérique diminue, la capacité totale de fixation de la transferrine augmente, le coefficient de saturation de la transferrine chute (<20 %). L'hémoglobine est encore normale ou à la limite basse. Les symptômes commencent : fatigue, diminution de la concentration, intolérance au froid, syndrome des jambes sans repos, ongles cassants, chute de cheveux.
Le troisième stade est l’anémie ferriprive : l’hémoglobine est basse (<12 g/dL chez la femme, <13 g/dL chez l'homme). Les globules rouges sont petits (microcytaires) et pâles (hypochromes). Les symptômes s'aggravent : essoufflement à l'effort, tachycardie, pâleur, vertiges, céphalées, altération de la performance cognitive, susceptibilité aux infections.
Le diagnostic repose sur le dosage de la ferritine sérique (meilleur indicateur des réserves) et de la numération formule sanguine (hémoglobine, VGM, CCMH). La ferritine peut être faussement élevée en cas d’inflammation (la ferritine est une protéine de phase aiguë) — dans ce cas, doser aussi la CRP et le coefficient de saturation de la transferrine.
XIII. Besoins quotidiens et populations à risque
Les apports nutritionnels recommandés en fer varient considérablement selon le sexe, l’âge et l’état physiologique :
— Homme adulte : 11 mg/jour (ANSES, 2016)
— Femme adulte non ménopausée : 16 mg/jour (pertes menstruelles)
— Femme enceinte : 30 mg/jour (au 2ᵉ et 3ᵉ trimestre — transfert placentaire)
— Adolescente : 16 mg/jour (croissance + menstruations)
— Enfant 6-11 ans : 7 mg/jour
— Nourrisson 6-12 mois : 11 mg/jour (épuisement des réserves néonatales)
Les populations à risque de carence sont les femmes en âge de procréer (pertes menstruelles : 15-30 mg de fer/cycle), les femmes enceintes (besoins triplés), les nourrissons de 6 à 24 mois (croissance rapide, épuisement des réserves maternelles), les adolescentes (croissance + menstruations), les sportifs d’endurance (hémolyse mécanique, sudation, pertes gastro-intestinales), les donneurs de sang réguliers (perte de 250 mg de fer par don de 500 mL) et les végétariens et végétaliens (fer exclusivement non héminique, moins biodisponible).
Pour les végétariens et végétaliens, les recommandations sont d’augmenter l’apport en fer de 80 % par rapport aux recommandations standard (ANSES) pour compenser la moindre biodisponibilité — soit environ 20 mg/jour pour un homme et 29 mg/jour pour une femme. C’est un objectif atteignable avec une alimentation riche en plantes sauvages ferrifères (ortie, chénopode, pissenlit) combinées à des facilitateurs (vitamine C, acides organiques, fermentation).
XIV. Stratégies d’optimisation au quotidien
Optimiser l’absorption du fer végétal ne demande pas de compléments coûteux — cela demande des gestes simples et des combinaisons alimentaires judicieuses.
Règle 1 : ajouter de la vitamine C à chaque repas contenant du fer végétal. Un filet de jus de citron sur la soupe d’ortie, une poignée de fraises des bois en dessert, une cuillère de purée de cynorrhodon dans le muesli, du persil frais haché sur le plat. 50 mg de vitamine C suffisent à tripler l’absorption — c’est le contenu d’un demi-citron ou de 50 g de fraises.
Règle 2 : séparer le thé et le café des repas. Ne pas boire de thé noir, de thé vert, de café ou de vin rouge pendant le repas ni dans l’heure qui suit. L’effet inhibiteur des tanins est considérable (–60 à –70 %). Boire le thé ou le café entre les repas, à distance d’au moins 1 heure.
Règle 3 : privilégier les plantes sauvages aux légumes cultivés. L’ortie contient 2 à 4 fois plus de fer que l’épinard cultivé. Le chénopode, le pissenlit et la pariétaire sont des sources de fer plus concentrées que la plupart des légumes du commerce. Intégrer régulièrement des plantes sauvages dans l’alimentation — même en petite quantité — augmente significativement l’apport total en fer.
Règle 4 : cuisiner en fonte. Une marmite ou une poêle en fonte non émaillée, utilisée régulièrement pour les préparations acides (soupes de plantes avec citron, sauces tomate), ajoute 3 à 8 mg de fer par portion — un complément non négligeable.
Règle 5 : fermenter et germer. Le pain au levain, les légumes sauvages lactofermentés, les graines germées ont une biodisponibilité en fer supérieure aux aliments non fermentés. La fermentation détruit les phytates et produit des acides organiques facilitateurs.
Règle 6 : ne pas prendre de calcium au même moment que le fer. Séparer les compléments de calcium (ou les produits laitiers riches) des repas riches en fer d’au moins 2 heures.
XV. Recettes riches en fer biodisponible
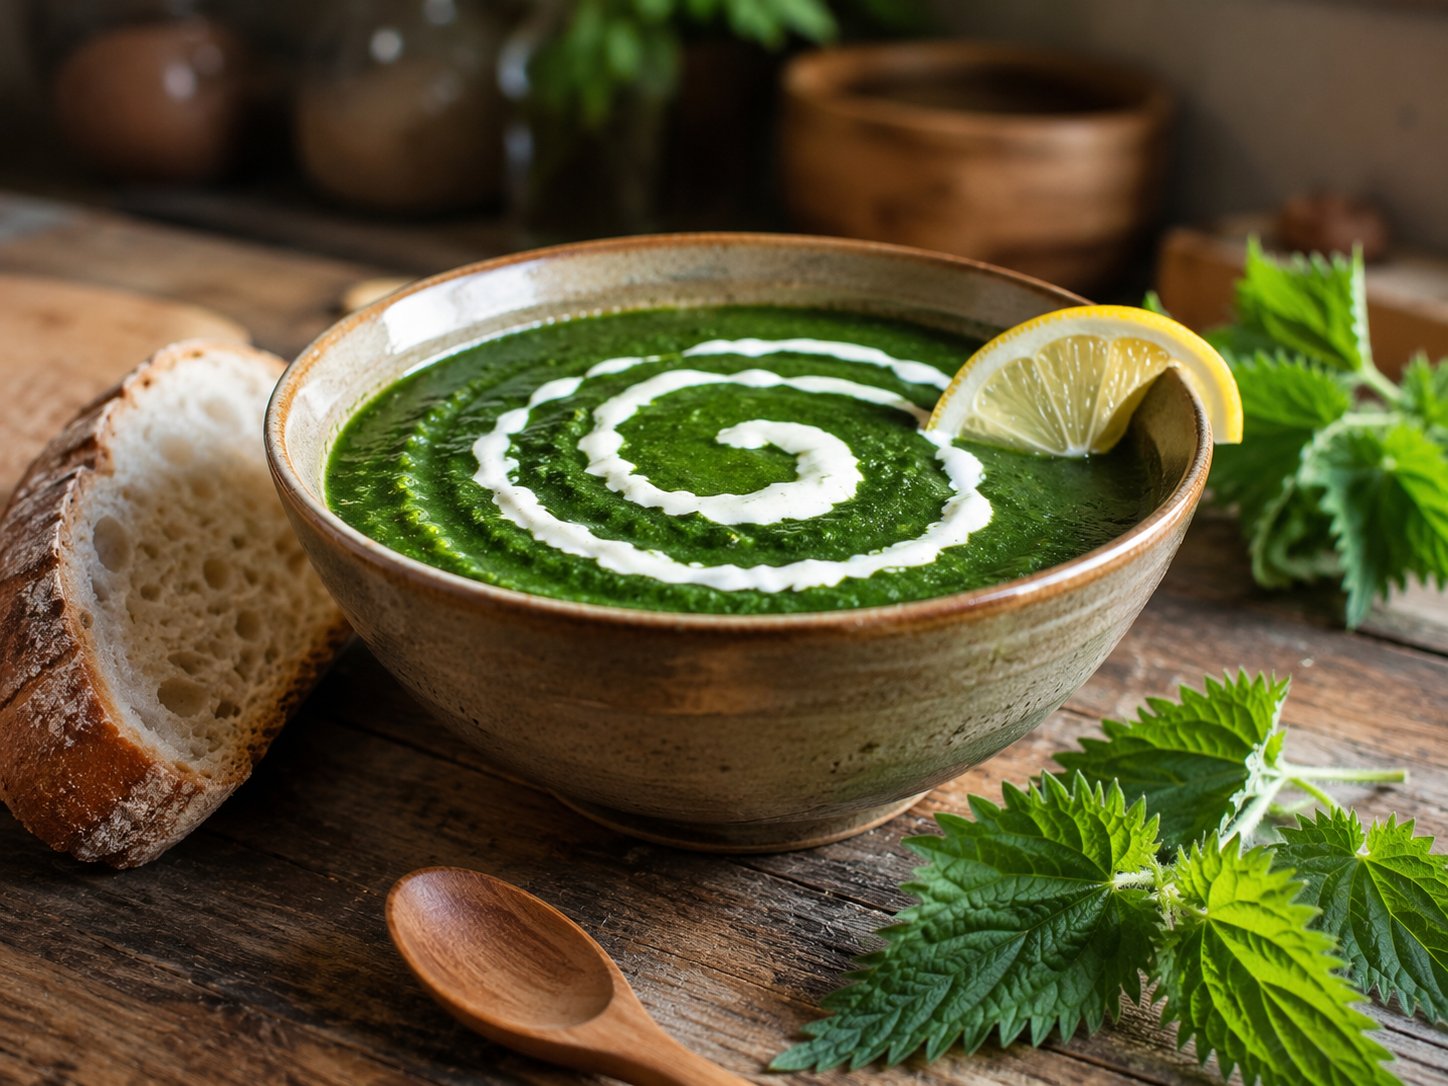
Soupe d’ortie au citron. 200 g de jeunes feuilles d’ortie, 1 oignon, 1 pomme de terre, 1 gousse d’ail, 800 mL d’eau, sel, poivre. Faire revenir l’oignon dans une marmite en fonte. Ajouter la pomme de terre coupée en dés et l’eau froide. Porter à frémissement, cuire 10 minutes. Ajouter l’ortie, cuire 3 minutes. Mixer. Hors du feu, ajouter le jus d’un citron entier (vitamine C + acide citrique). Servir immédiatement. Cette soupe fournit environ 10 à 15 mg de fer (ortie + fonte) avec un facilitateur intégré (citron).
Salade de pissenlit au persil et au citron. 100 g de jeunes feuilles de pissenlit, 30 g de persil plat haché, 1 œuf dur émietté. Vinaigrette : 2 cuillères à soupe d’huile d’olive, jus d’un demi-citron, 1 cuillère à café de moutarde, sel, poivre. Le pissenlit fournit le fer (3-4 mg/100 g), le persil fournit fer et vitamine C (130 mg/100 g), le citron fournit vitamine C et acide citrique, l’œuf fournit un « facteur viande » (les protéines animales facilitent l’absorption du fer non héminique par un mécanisme imparfaitement élucidé).
Pesto d’ortie aux noix. 100 g de feuilles d’ortie blanchies 1 minute, 30 g de cerneaux de noix, 30 g de parmesan, 1 gousse d’ail, 80 mL d’huile d’olive. Mixer. Ajouter le jus d’un demi-citron après le mixage. Servir sur des pâtes, du riz ou des tartines. Le pesto d’ortie est un concentré de fer, de calcium, de vitamine C et d’oméga-3 (noix).
Smoothie vert ferrifère. 50 g de feuilles d’ortie blanchies (ou d’ortie en poudre : 5 g), 1 banane, 100 g de fraises (vitamine C), jus d’un demi-citron, 200 mL d’eau. Mixer. Ce smoothie fournit environ 5 mg de fer et 80 mg de vitamine C dans le même verre — une combinaison fer + facilitateur optimale.
XVI. Surcharge en fer : l’excès inverse
Si la carence en fer est la déficience la plus répandue, la surcharge en fer est le risque inverse — plus rare mais potentiellement grave. Le fer libre est un puissant oxydant : il catalyse la réaction de Fenton (Fe²⁺ + H₂O₂ → Fe³⁺ + OH• + OH⁻), qui produit des radicaux hydroxyles — les espèces réactives de l’oxygène les plus destructrices, capables d’endommager l’ADN, les protéines et les membranes lipidiques.
L’hémochromatose est une maladie génétique (mutation du gène HFE, prévalence 1/300 dans les populations d’origine nord-européenne) qui provoque une absorption excessive du fer alimentaire — l’hepcidine est anormalement basse, la ferroportine n’est pas freinée, et le fer s’accumule progressivement dans le foie (cirrhose), le pancréas (diabète), le cœur (cardiomyopathie) et les articulations (arthropathie). Le diagnostic repose sur une ferritine élevée (>300 µg/L chez l’homme, >200 µg/L chez la femme) et un coefficient de saturation de la transferrine élevé (>45 %). Le traitement est la saignée thérapeutique (phlébotomie).
Les personnes atteintes d’hémochromatose doivent limiter les facilitateurs d’absorption du fer (vitamine C à haute dose, cuisson en fonte) et éviter les compléments de fer. En revanche, les inhibiteurs (thé, phytates) leur sont bénéfiques — un thé bu pendant le repas réduit l’absorption du fer excédentaire.
Pour la population générale sans hémochromatose, la surcharge en fer par l’alimentation est extrêmement improbable — le système hepcidine-ferroportine régule l’absorption avec une grande précision. Le risque de surcharge est lié aux compléments de fer à haute dose, aux transfusions sanguines répétées et à l’hémochromatose génétique — pas à la soupe d’ortie.
XVII. Précautions et contre-indications
Les compléments de fer (sulfate ferreux, fumarate ferreux, gluconate ferreux) ne doivent être pris que sur prescription médicale, après confirmation biologique d’une carence (ferritine basse). L’automédication en fer est risquée : un excès de fer libre est toxique et pro-oxydant. Les compléments de fer provoquent fréquemment des effets secondaires digestifs (constipation, nausées, selles noires, douleurs abdominales).
Les personnes atteintes d’hémochromatose (confirmée ou suspectée) doivent éviter la cuisson en fonte, les compléments de vitamine C à haute dose et les combinaisons alimentaires optimisées pour l’absorption du fer. Pour elles, les conseils de cet article sont à inverser : les inhibiteurs (thé, phytates) deviennent des alliés.
Les personnes sous traitement par fer intraveineux (carboxymaltose ferrique, saccharose de fer) ont des besoins nutritionnels en fer couverts par le traitement — ne pas ajouter de compléments oraux ni de stratégies alimentaires d’optimisation sans avis médical.
L’ortie est contre-indiquée en cas de traitement par anticoagulants (warfarine) en raison de sa teneur très élevée en vitamine K (500 µg/100 g) qui interfère avec l’anticoagulation. Les personnes sous warfarine qui souhaitent consommer de l’ortie doivent maintenir un apport stable et en informer leur médecin pour ajuster la dose.
L’ortie est aussi déconseillée en cas d’insuffisance rénale sévère (sa teneur élevée en potassium peut aggraver une hyperkaliémie) et pendant la grossesse au premier trimestre (effet utérotonique traditionnel non confirmé mais principe de précaution).
XVIII. Synthèse
Le fer végétal est un nutriment piégé. Abondant dans les plantes sauvages — l’ortie en contient autant que la viande rouge —, il est pourtant mal absorbé en raison des inhibiteurs naturels (phytates, tanins, oxalates, calcium) qui le séquestrent dans le tube digestif. Mais ce piégeage n’est pas une fatalité. La vitamine C multiplie l’absorption par 3 à 6. Les acides organiques (citron, vinaigre) maintiennent le fer en solution. La fermentation détruit les phytates. La cuisson en fonte ajoute du fer exogène. Les combinaisons alimentaires traditionnelles (ortie + citron, pissenlit + persil, soupe en fonte) sont des solutions éprouvées par des siècles d’usage empirique.
Les plantes sauvages sont les meilleures sources végétales de fer d’Europe. L’ortie (4-8 mg/100 g avec sa propre vitamine C), le chénopode (3-5 mg/100 g), le pissenlit (3-4 mg/100 g), la pariétaire (4-6 mg/100 g), le plantain (2-4 mg/100 g) surpassent systématiquement leurs équivalents cultivés. Elles n’ont pas subi la dilution nutritionnelle de la sélection agronomique. Elles poussent sur des sols naturels non appauvris. Elles contiennent les cofacteurs (vitamine C, acides organiques) qui facilitent l’absorption de leur propre fer.
Optimiser le fer végétal ne demande ni compléments ni expertise : un filet de citron, pas de thé pendant le repas, une marmite en fonte, des plantes sauvages régulièrement au menu. Ces gestes simples, accessibles et gratuits, permettent de couvrir les besoins en fer d’un adulte sans recourir à la viande rouge ni aux compléments pharmaceutiques — à condition de les appliquer avec constance et en connaissance de cause.
Bibliographie
- Hurrell R.F. & Egli I. (2010). « Iron bioavailability and dietary reference values ». The American Journal of Clinical Nutrition, 91(5), 1461S-1467S.
- Hallberg L. et al. (1989). « The role of vitamin C in iron absorption ». International Journal for Vitamin and Nutrition Research, Suppl. 30, 103-108.
- Siegenberg D. et al. (1991). « Ascorbic acid prevents the dose-dependent inhibitory effects of polyphenols and phytates on nonheme-iron absorption ». The American Journal of Clinical Nutrition, 53(2), 537-541.
- Brune M. et al. (1992). « Iron absorption from bread in humans: inhibiting effects of cereal fiber, phytate and inositol phosphates with different numbers of phosphate groups ». The Journal of Nutrition, 122(3), 442-449.
- Brittin H.C. & Nossaman C.E. (1986). « Iron content of food cooked in iron utensils ». Journal of the American Dietetic Association, 86(7), 897-901.
- Charles C.V. et al. (2015). « An iron-deficiency anaemia intervention using cast iron cooking pots in Cambodia ». Asia Pacific Journal of Clinical Nutrition, 24(3), 446-455.
- Yeung C.K. et al. (2005). « Prebiotics and iron bioavailability — is there a connection? ». Journal of Food Science, 70(5), R88-R92.
- Gupta U.C. & Gupta S.C. (2014). « Sources and deficiency diseases of mineral nutrients in human health and nutrition ». Pedosphere, 24(1), 13-38.
- ANSES (2016). « Actualisation des repères du PNNS : élaboration des références nutritionnelles ». Rapport d’expertise collective.
- Hunt J.R. (2003). « Bioavailability of iron, zinc, and other trace minerals from vegetarian diets ». The American Journal of Clinical Nutrition, 78(3), 633S-639S.
- Nemeth E. & Ganz T. (2006). « Regulation of iron metabolism by hepcidin ». Annual Review of Nutrition, 26, 323-342.
- Uzel C. & Conrad M.E. (1998). « Absorption of heme iron ». Seminars in Hematology, 35(1), 27-34.
- Rühl R. (2021). « Nettle (Urtica dioica L.) as a source of bioactive compounds: a review ». Phytochemistry Reviews, 20, 449-489.
- Gülçin I. et al. (2004). « Determination of antioxidant activity of Urtica dioica ». Journal of Agricultural and Food Chemistry, 52(17), 5338-5342.
- Davis D.R. et al. (2004). « Changes in USDA food composition data for 43 garden crops, 1950 to 1999 ». Journal of the American College of Nutrition, 23(6), 669-682.
Les informations présentées dans cet article sont fournies à titre éducatif et ne remplacent en aucun cas l’avis d’un professionnel de santé. En cas de suspicion de carence en fer, consultez un médecin pour un diagnostic biologique avant toute supplémentation. L’automédication en fer est déconseillée.