Après cinquante ans, la densité osseuse décline chez la femme comme chez l’homme. La médecine conventionnelle répond par des comprimés de calcium et des bisphosphonates ; la phytothérapie traditionnelle, forte d’une observation millénaire, propose une autre voie : reminéraliser l’os par le silicium de la prêle, le calcium hautement assimilable de l’ortie, le magnésium du sarrasin, la vitamine K₂ du nattō, les phyto-œstrogènes du trèfle rouge, et toute une pharmacie végétale qui nourrit la trame collagénique autant que la fraction minérale. Cet article de fond parcourt la physiologie du remodelage osseux, identifie les nutriments critiques après la ménopause et l’andropause, détaille les plantes majeures et leurs modes de préparation — décoctions, poudres, vinaigres d’extraction — et propose un programme journalier reminéralisant réaliste, sans jamais prétendre se substituer au suivi médical.
Sommaire
I. Pourquoi les os changent après cinquante ans
II. Ostéoblastes, ostéoclastes : un équilibre hormono-dépendant
III. Les limites du « tout calcium » conventionnel
IV. Le calcium végétal : biodisponibilité et cofacteurs
V. Le silicium organique : clé oubliée de la trame osseuse
VI. La prêle des champs, concentré de silice
VII. L’ortie, reminéralisante majeure
VIII. Le bambou, record de silicium végétal
IX. La vitamine K₂ : fixer le calcium au bon endroit
X. Le magnésium végétal et la solidité osseuse
XI. Le bore : oligo-élément méconnu
XII. Vitamine D et plantes : un tandem indispensable
XIII. Les phyto-œstrogènes et la densité osseuse
XIV. Plantes anti-inflammatoires et protection ostéo-articulaire
XV. Acides gras oméga-3 végétaux et métabolisme osseux
XVI. Modes de préparation : tisanes, poudres, vinaigres
I. Pourquoi les os changent après cinquante ans
Le squelette n’est pas une charpente inerte : c’est un tissu vivant, parcouru de vaisseaux, de nerfs et de cellules spécialisées, qui se renouvelle intégralement tous les sept à dix ans chez l’adulte jeune. Jusqu’à trente-cinq ans environ, la construction l’emporte sur la destruction ; le capital osseux atteint alors son pic. Après cette date, la balance bascule imperceptiblement : chaque année, la masse osseuse diminue de 0,3 à 0,5 % chez l’homme, et jusqu’à 1 à 2 % chez la femme dans les cinq à dix années qui suivent la ménopause.
Plusieurs facteurs convergent pour accélérer cette érosion après cinquante ans. La chute des hormones sexuelles — œstrogènes chez la femme, testostérone chez l’homme — modifie profondément le métabolisme osseux en levant un frein majeur sur les cellules destructrices. L’absorption intestinale du calcium diminue avec l’âge, en partie parce que la muqueuse duodénale fabrique moins de récepteurs à la vitamine D. La synthèse cutanée de cette même vitamine D recule : une peau de soixante-dix ans produit environ quatre fois moins de cholécalciférol qu’une peau de vingt ans sous un ensoleillement identique. Enfin, la sédentarité croissante réduit les contraintes mécaniques qui stimulent les cellules formatrices de l’os.
L’ostéoporose — littéralement « os poreux » — n’est pas une maladie qui survient brusquement : c’est l’aboutissement de décennies de déséquilibre entre construction et résorption. Elle touche une femme sur trois et un homme sur cinq après soixante-cinq ans. Le coût humain est considérable : fractures vertébrales silencieuses qui tassent la colonne, fractures du col du fémur qui compromettent l’autonomie, fractures du poignet qui signalent la fragilité. Pourtant, le tissu osseux conserve sa capacité de réponse aux stimuli nutritionnels et mécaniques jusqu’à un âge avancé. C’est cette plasticité qui ouvre la porte à une stratégie végétale de reminéralisation.
La phytothérapie ne prétend pas rivaliser avec la pharmacologie lourde dans l’ostéoporose sévère déjà fracturaire. Son champ d’action se situe en amont : l’ostéopénie (stade précurseur), la prévention primaire après la ménopause, et le soutien nutritionnel en complément du traitement médical. Les plantes agissent sur plusieurs leviers simultanément — apport de minéraux hautement biodisponibles, stimulation des ostéoblastes, freinage de l’inflammation chronique de bas grade, modulation hormonale douce — là où le médicament de synthèse ne cible généralement qu’un seul mécanisme.
L’approche végétale présente un avantage fondamental souvent négligé : elle fournit les nutriments dans leur matrice naturelle, accompagnés de leurs cofacteurs d’absorption. Le calcium de l’ortie arrive escorté de magnésium, de silicium, de vitamine K₁ et de bore ; le calcium d’un comprimé de carbonate arrive seul, avec un risque de calcification vasculaire si la vitamine K₂ est absente. Cette synergie intrinsèque explique pourquoi les traditions herboristes obtiennent des résultats tangibles sur la densité osseuse avec des doses de calcium bien inférieures à celles de la supplémentation pharmaceutique.
II. Ostéoblastes, ostéoclastes : un équilibre hormono-dépendant
Pour comprendre comment les plantes peuvent protéger le squelette, il faut d’abord connaître les acteurs cellulaires du remodelage osseux. Deux familles de cellules s’affrontent en permanence dans l’os :
Les ostéoblastes sont les bâtisseurs. Issus de cellules souches mésenchymateuses de la moelle osseuse, ils sécrètent la matrice organique de l’os — le tissu ostéoïde — composée à 90 % de collagène de type I, puis orchestrent sa minéralisation en y déposant des cristaux d’hydroxyapatite (phosphate de calcium). Un ostéoblaste actif synthétise environ 0,5 à 1 micromètre de matrice par jour. Une fois emprisonné dans la matrice qu’il a lui-même sécrétée, l’ostéoblaste se différencie en ostéocyte, cellule sentinelle qui détecte les contraintes mécaniques et communique avec les autres cellules osseuses par de longs prolongements dendritiques traversant des canalicules microscopiques.
Les ostéoclastes sont les démolisseurs. Ce sont des cellules géantes multinucléées, issues de la lignée monocytaire (la même qui produit les macrophages), capables de dissoudre à la fois la fraction minérale de l’os par sécrétion d’acide chlorhydrique et la fraction organique par des enzymes protéolytiques (cathepsine K, métalloprotéases). Un ostéoclaste actif creuse une lacune d’environ 40 à 60 micromètres de profondeur en deux à trois semaines — lacune que les ostéoblastes mettront trois à quatre mois à combler. Cette asymétrie temporelle est fondamentale : toute accélération de la résorption crée un déficit que la formation peine à rattraper.
L’équilibre entre ces deux populations est régi par un système de signalisation moléculaire aujourd’hui bien caractérisé, le trio RANK/RANKL/ostéoprotégérine (OPG). RANKL est un ligand produit par les ostéoblastes eux-mêmes et par les cellules stromales ; il se fixe sur le récepteur RANK à la surface des précurseurs ostéoclastiques et déclenche leur différenciation en ostéoclastes matures actifs. L’ostéoprotégérine (OPG) est un récepteur-leurre soluble, également sécrété par les ostéoblastes, qui intercepte RANKL et empêche sa fixation sur RANK — freinant ainsi la résorption. La densité osseuse dépend donc du rapport RANKL/OPG : quand RANKL domine, l’os se résorbe ; quand OPG domine, l’os se reconstruit.
Les œstrogènes stimulent puissamment la production d’OPG par les ostéoblastes tout en inhibant la sécrétion de RANKL et de cytokines pro-résorptives comme l’interleukine-6 (IL-6) et le TNF-α. La chute des œstrogènes à la ménopause provoque donc une levée de frein massive sur la résorption : les ostéoclastes se multiplient, s’activent, creusent plus de lacunes que les ostéoblastes ne peuvent en combler. C’est la raison pour laquelle la perte osseuse s’accélère brutalement dans les années péri-ménopausiques, pouvant atteindre 3 à 5 % par an au rachis lombaire.
Chez l’homme, la diminution progressive de la testostérone (et surtout de sa conversion en œstradiol par l’aromatase) entraîne un phénomène comparable mais plus lent et plus tardif, expliquant que l’ostéoporose masculine survienne en général dix à quinze ans après l’ostéoporose féminine.
Plusieurs familles de plantes interviennent directement sur cet axe RANK/RANKL/OPG. Les isoflavones du trèfle rouge et du soja stimulent la production d’OPG par les ostéoblastes via l’activation des récepteurs aux œstrogènes de type bêta (ERβ), abondants dans l’os. La génistéine, en particulier, inhibe directement l’activité des ostéoclastes matures en bloquant la tyrosine kinase nécessaire à leur adhésion à la surface osseuse. Les polyphénols du thé vert (épigallocatéchine gallate, EGCG) réduisent l’expression de RANKL tout en augmentant celle d’OPG dans des modèles cellulaires humains. Le resvératrol du raisin stimule la différenciation des cellules souches mésenchymateuses vers la lignée ostéoblastique plutôt que vers la lignée adipocytaire — un phénomène crucial car, avec l’âge, la moelle osseuse tend à se remplir de graisse au détriment du tissu osseux fonctionnel.
Cette connaissance du remodelage osseux éclaire la stratégie phytothérapique : il ne suffit pas d’apporter du calcium — il faut simultanément stimuler les ostéoblastes, freiner les ostéoclastes, fournir les cofacteurs de la minéralisation, et maintenir la trame collagénique qui donne à l’os sa résistance à la flexion. C’est précisément ce que fait un programme végétal bien conçu.
III. Les limites du « tout calcium » conventionnel
Depuis les années 1980, la prévention de l’ostéoporose a été largement résumée à un message simple : « prenez du calcium ». Les recommandations officielles se sont fixées autour de 1 000 à 1 200 mg de calcium par jour après cinquante ans, conduisant à une supplémentation massive par comprimés de carbonate ou de citrate de calcium. Cette approche unilatérale a montré ses limites, voire ses risques.
Plusieurs méta-analyses publiées entre 2010 et 2020 dans le British Medical Journal et le Journal of the American Heart Association ont mis en évidence une association entre la supplémentation calcique isolée (sans vitamine K₂) et une augmentation de 20 à 30 % du risque d’événements cardiovasculaires — infarctus du myocarde et accident vasculaire cérébral. Le mécanisme proposé est la calcification vasculaire : le calcium ingéré en excès, non dirigé vers l’os par la vitamine K₂, se dépose dans les parois artérielles, les valves cardiaques et les reins. Ce phénomène, documenté par imagerie coronarienne (score calcique), est particulièrement marqué chez les personnes carencées en vitamine K₂ et en magnésium.
Par ailleurs, l’efficacité de la supplémentation calcique seule sur la réduction du risque fracturaire est modeste. La méta-analyse Cochrane de 2014 conclut à une réduction de seulement 12 % du risque de fracture toutes localisations confondues, et aucune réduction significative de la fracture du col du fémur. Autrement dit, le calcium seul ne suffit pas à reconstruire un os fragile — et peut même nuire s’il est mal accompagné.
Le problème fondamental réside dans la vision réductionniste de l’os comme un simple réservoir de calcium. En réalité, la résistance mécanique du squelette repose sur deux composantes indissociables : la fraction minérale (cristaux d’hydroxyapatite, composés de calcium, de phosphore et d’hydroxyle) qui assure la rigidité et la résistance à la compression, et la trame organique (collagène de type I, protéoglycanes, ostéocalcine, ostéopontine) qui assure l’élasticité et la résistance à la flexion. Un os correctement minéralisé mais dont la trame collagénique est dégradée cassera tout aussi facilement qu’un os déminéralisé — exactement comme une poutre en béton armé sans ses armatures métalliques.
La trame collagénique dépend du silicium pour la réticulation des fibres de collagène, de la vitamine C pour l’hydroxylation de la proline et de la lysine (acides aminés constitutifs du collagène), du magnésium pour l’activité des enzymes de synthèse, et du zinc pour la maturation des fibres. Aucun de ces nutriments n’est apporté par un comprimé de carbonate de calcium. C’est ici que l’approche végétale prend tout son sens : une tisane de prêle et d’ortie apporte simultanément calcium, silicium, magnésium, zinc, manganèse, fer, vitamine K₁ et acide silicique — dans des proportions que la physiologie humaine sait utiliser, car nous coévoluons avec ces plantes depuis des centaines de milliers d’années.
Un autre écueil de la supplémentation calcique isolée est qu’elle ne prend pas en compte les facteurs d’absorption. Le calcium nécessite un milieu gastrique acide pour être ionisé et absorbé ; or, de nombreuses personnes de plus de cinquante ans souffrent d’hypochlorhydrie (diminution de la sécrétion d’acide chlorhydrique) ou prennent des inhibiteurs de la pompe à protons (IPP) — deux situations qui réduisent drastiquement l’absorption du calcium, en particulier sous forme de carbonate. Le citrate de calcium est mieux absorbé en milieu peu acide, mais il ne résout pas le problème des cofacteurs manquants.
La phytothérapie contourne ces limitations en proposant des sources de calcium organiquement liées, dont l’absorption ne dépend pas exclusivement de l’acidité gastrique, et en fournissant simultanément les cofacteurs nécessaires à la fixation osseuse. Les oxalates de calcium des épinards sont un contre-exemple bien connu (biodisponibilité très faible), mais les sels de calcium de l’ortie, du chou frisé, du brocoli ou des amandes émondées présentent des taux d’absorption souvent supérieurs à ceux du lait.
IV. Le calcium végétal : biodisponibilité et cofacteurs
La question n’est pas combien de calcium on ingère, mais combien on absorbe et combien on fixe sur l’os. Ces deux étapes — absorption intestinale et incorporation osseuse — sont gouvernées par des mécanismes distincts, chacun sensible à des cofacteurs spécifiques que les plantes fournissent naturellement.
L’absorption intestinale du calcium s’effectue par deux voies. La voie transcellulaire, active et saturable, opère principalement dans le duodénum et le jéjunum proximal ; elle est régulée par la vitamine D (qui induit la synthèse de la calbindine, protéine de transport intracellulaire du calcium) et représente environ 20 % de l’absorption totale. La voie paracellulaire, passive et non saturable, opère tout le long de l’intestin grêle et du côlon ; elle dépend du gradient de concentration et représente environ 80 % de l’absorption lorsque l’apport calcique est élevé. La biodisponibilité du calcium varie considérablement selon la source alimentaire, en fonction de la présence de facteurs favorisants ou inhibiteurs.
Facteurs favorisant l’absorption :
- La vitamine D₃ (cholécalciférol), indispensable à la voie transcellulaire active.
- Les fructo-oligosaccharides (FOS) et l’inuline, qui stimulent l’absorption colique du calcium par acidification du milieu et production d’acides gras à chaîne courte (butyrate) par le microbiote.
- Le lactose et certains acides aminés (lysine, arginine) qui facilitent le transport paracellulaire.
- Un milieu gastrique suffisamment acide pour ioniser les sels de calcium.
Facteurs inhibant l’absorption :
- L’acide oxalique (épinards, rhubarbe, bette à carde) : forme des oxalates de calcium insolubles. La biodisponibilité du calcium des épinards est d’environ 5 %, contre 27 % pour le lait et 50-60 % pour le chou frisé.
- L’acide phytique (son de blé, légumineuses non trempées, peau des amandes) : chélate le calcium et le magnésium. Le trempage, la germination et la fermentation réduisent considérablement la teneur en phytates.
- L’excès de phosphore (sodas, viandes transformées) : un rapport calcium/phosphore inférieur à 1 favorise la perte calcique urinaire.
- L’excès de sodium : chaque gramme de sodium excrété entraîne la perte de 20 à 40 mg de calcium urinaire.
- La caféine en excès : au-delà de 3 à 4 tasses de café par jour, la calciurie augmente significativement.
Les meilleures sources végétales de calcium biodisponible sont celles qui combinent une teneur élevée en calcium, un taux faible d’oxalates et de phytates, et la présence naturelle de cofacteurs d’absorption :
L’ortie séchée (Urtica dioica) : environ 630 mg de calcium pour 100 g de feuilles séchées, avec une biodisponibilité estimée à 40-50 % grâce à sa faible teneur en oxalates et sa richesse en magnésium et silicium. Trois cuillères à soupe de poudre d’ortie dans un smoothie ou une soupe apportent environ 190 mg de calcium hautement assimilable.
Le chou frisé (Brassica oleracea var. sabellica) : 150 mg de calcium pour 100 g de feuilles crues, avec une biodisponibilité record de 49-61 %. Les Brassicacées en général (brocoli, chou chinois, bok choy) présentent des taux d’absorption supérieurs à ceux des produits laitiers, car elles contiennent très peu d’oxalates.
Les amandes émondées (Prunus dulcis) : 269 mg de calcium pour 100 g. Il est essentiel d’utiliser des amandes émondées — c’est-à-dire blanchies et débarrassées de leur peau brune — car cette peau contient de l’acide phytique qui chélate le calcium et réduit considérablement son absorption. Le trempage préalable d’une nuit suivi du retrait de la peau est une alternative au blanchiment industriel.
Le sésame complet (Sesamum indicum) : 975 mg de calcium pour 100 g de graines non décortiquées, mais la biodisponibilité est réduite par les oxalates de l’enveloppe. Le tahini (purée de sésame) et le gomasio améliorent l’assimilation par le broyage qui libère le calcium de la matrice fibreuse.
Les figues sèches (Ficus carica) : 162 mg de calcium pour 100 g, avec une excellente biodisponibilité et un apport concomitant de potassium alcalinisant qui réduit la calciurie.
L’incorporation osseuse du calcium — sa fixation effective sur la trame ostéoïde — dépend de cofacteurs supplémentaires : la vitamine K₂ (qui active l’ostéocalcine, protéine qui capture le calcium circulant et l’arrime aux cristaux d’hydroxyapatite), le silicium (qui catalyse l’enzyme prolyl hydroxylase nécessaire à la réticulation du collagène), le magnésium (qui convertit la vitamine D en sa forme active, le calcitriol), et le bore (qui réduit l’excrétion urinaire du calcium et du magnésium). Ces quatre cofacteurs seront détaillés dans les sections suivantes.
V. Le silicium organique : clé oubliée de la trame osseuse
Le silicium est le deuxième élément le plus abondant de la croûte terrestre, mais son rôle biologique a longtemps été ignoré. C’est Edith Carlisle, chercheuse à l’université de Californie, qui a démontré dans les années 1970 que le silicium est un oligo-élément essentiel à la formation osseuse : des poussins et des rats nourris avec un régime dépourvu de silicium développent des anomalies squelettiques sévères — os courts, déformés, fragiles, avec une trame collagénique désorganisée et une minéralisation déficiente.
Le silicium intervient dans le métabolisme osseux à plusieurs niveaux. Il est un cofacteur de la prolyl hydroxylase, enzyme qui hydroxyle les résidus proline du pro-collagène, étape indispensable à la formation des ponts hydrogène qui stabilisent la triple hélice du collagène de type I. Sans silicium suffisant, le collagène synthétisé est structurellement fragile, mal réticulé, incapable d’assurer la résistance mécanique de l’os à la flexion et à la torsion. Le silicium stimule également directement les ostéoblastes : des études in vitro montrent qu’il augmente la production d’ostéocalcine, d’ostéopontine et de phosphatase alcaline — trois marqueurs de l’activité ostéoformatrice.
L’étude de Framingham, publiée en 2004 dans le Journal of Bone and Mineral Research, a observé, chez 2 847 participants d’une étude transversale, que l’apport alimentaire de silicium est positivement corrélé à la densité minérale osseuse du col du fémur, et ce indépendamment de l’apport en calcium. Le quartile le plus élevé d’apport en silicium (supérieur à 40 mg/jour) présente une densité osseuse significativement supérieure au quartile le plus bas (inférieur à 14 mg/jour), avec une différence d’environ 10 % de la densité fémorale .
Deux précisions s’imposent, car elles changent la portée de ce résultat. D’abord, cette association n’a été retrouvée que chez les hommes et chez les femmes non ménopausées — et non chez les femmes ménopausées, qui sont pourtant les premières concernées par l’ostéoporose. Ensuite, il s’agit d’une observation et non d’un essai : elle montre que ceux qui consomment le plus de silicium ont des os plus denses, sans établir que le silicium en soit la cause. À ce jour, aucun essai clinique n’a testé le silicium en mesurant les fractures : son intérêt repose sur un mécanisme solidement décrit et sur des observations concordantes, non sur une preuve d’efficacité.
Le silicium alimentaire se présente sous deux formes principales. L’acide orthosilicique (Si(OH)₄), forme monomérique soluble, est directement absorbable au niveau intestinal avec une biodisponibilité de 50 à 60 %. C’est la forme prédominante dans l’eau minérale silicée, la bière (provenant de l’orge) et les décoctions de plantes riches en silice. Les silicates polymérisés, présents dans les aliments solides, doivent être hydrolysés en acide orthosilicique pour être absorbés ; leur biodisponibilité est nettement plus faible (1 à 20 %). C’est pourquoi les préparations liquides (décoctions, macérations) de plantes silicées sont nettement supérieures aux gélules de poudre en termes d’assimilation du silicium.
Les principales sources végétales de silicium sont la prêle des champs (Equisetum arvense), le bambou (Bambusa spp.), l’ortie (Urtica dioica), le millet brun (Panicum miliaceum), l’avoine (Avena sativa) et les céréales complètes. La prêle est de loin la source la plus concentrée du règne végétal, avec 5 à 8 % de silice dans la plante sèche, ce qui en fait la plante la plus riche en silice du règne végétal.
VI. La prêle des champs, concentré de silice
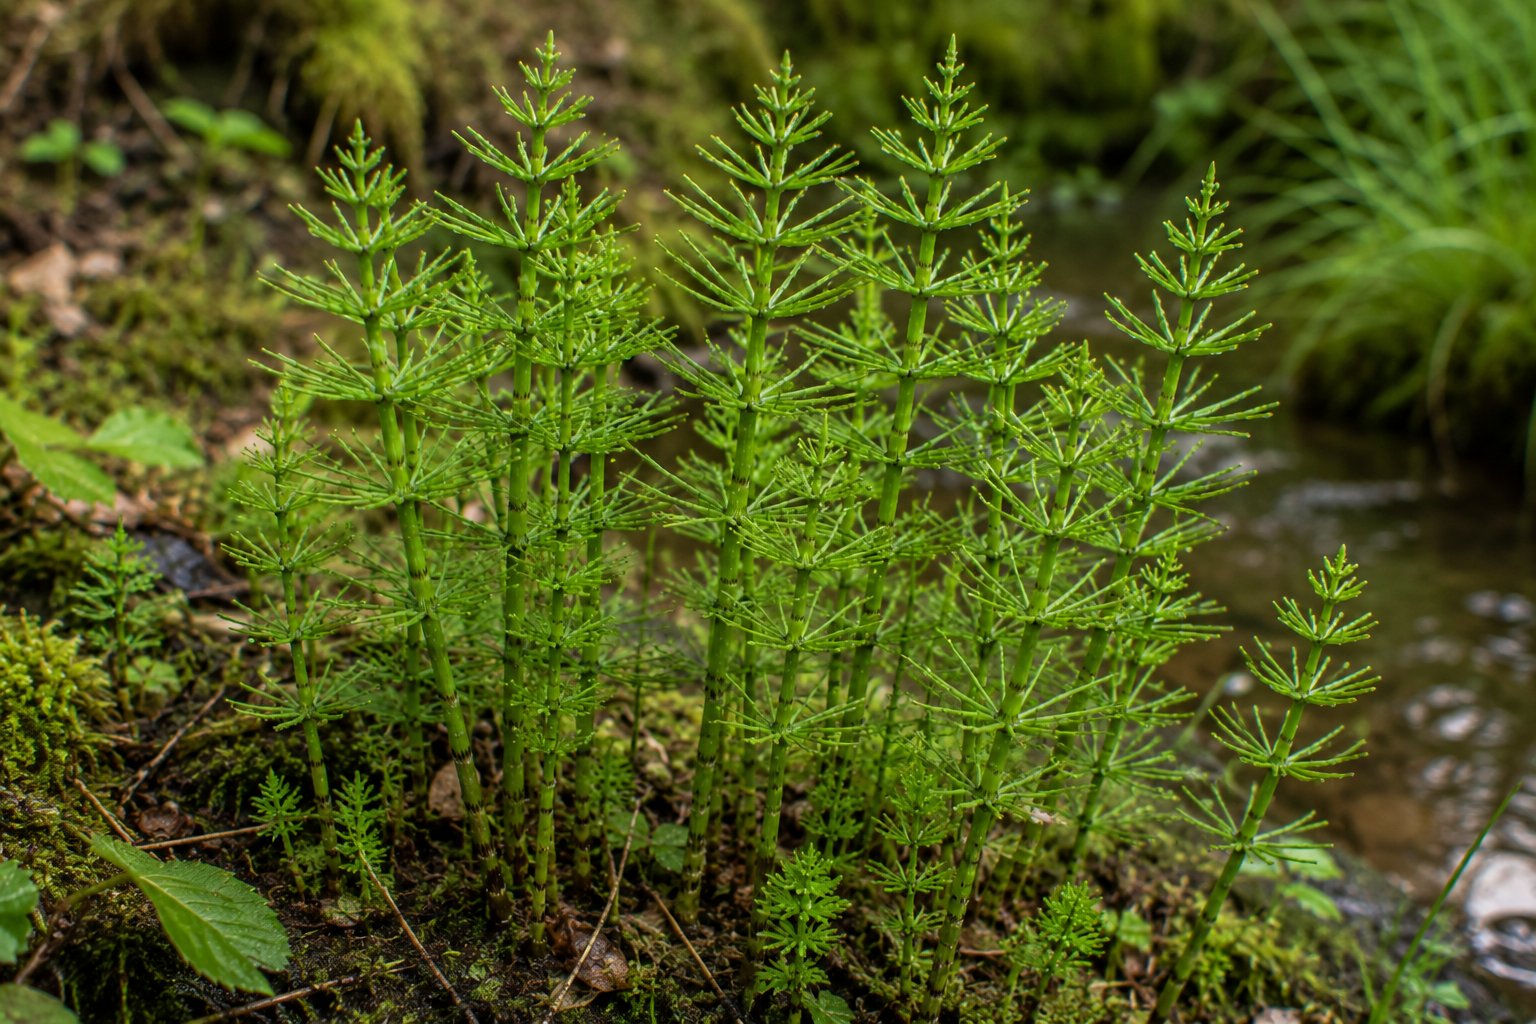
La prêle des champs (Equisetum arvense L., Équisétacées) est un fossile vivant : cette plante sans fleurs, sans graines et sans feuilles au sens botanique est l’une des plus anciennes lignées vasculaires du monde végétal, apparue au Dévonien supérieur il y a environ 350 millions d’années. Ses ancêtres géants, les Calamites, atteignaient vingt mètres dans les forêts carbonifères. La prêle actuelle, haute de 20 à 60 cm, a conservé une caractéristique unique : elle accumule massivement la silice dissoute dans le sol sous forme d’opale biogénique (SiO₂·nH₂O) dans ses parois cellulaires, ses nœuds et ses côtes — au point que sa tige, à la rugosité caractéristique, servait autrefois à récurer les casseroles d’étain, d’où son nom populaire de « queue-de-cheval » ou « herbe à récurer ».
La tige stérile de la prêle des champs contient 5 à 8 % de silice dans la matière sèche, dont une fraction significative est sous forme d’acide orthosilicique soluble (la forme directement absorbable). Elle contient également des flavonoïdes (quercétine, kaempférol, isoquercitrine), des acides phénoliques, des saponines (équisetonine), du potassium (5 à 7 %), du manganèse, du calcium et des traces de fer et de zinc. Cette composition en fait la plante reminéralisante par excellence de la pharmacopée européenne.
L’usage médicinal de la prêle pour les problèmes osseux et articulaires est documenté depuis l’Antiquité. Dioscoride la recommandait pour « resserrer les os brisés » ; Hildegarde de Bingen la prescrivait en cataplasme sur les fractures. Les herboristes du XIXᵉ siècle — Cazin, Leclerc, Fournier — la classaient parmi les reminéralisants majeurs, notamment pour la consolidation des fractures, l’ostéoporose sénile et la fragilité des ongles et des cheveux (structures également dépendantes du silicium pour la kératinisation).
Préparation optimale — la décoction : contrairement à la plupart des plantes médicinales, la prêle nécessite une décoction pour libérer sa silice. Placer 3 à 4 cuillères à soupe de prêle séchée dans un litre d’eau froide, porter lentement à ébullition, puis maintenir un frémissement doux pendant 15 à 20 minutes. Laisser infuser hors du feu encore 10 minutes, filtrer. La décoction, légèrement trouble et de couleur jaune verdâtre, se boit tiède ou froide dans la journée. La cuisson prolongée hydrolyse les polymères de silice en acide orthosilicique assimilable — c’est pourquoi l’infusion simple est nettement moins efficace que la décoction pour cet usage.
Posologie traditionnelle : 2 à 3 tasses de décoction par jour, en cures de 3 semaines suivies d’une semaine de pause, pendant 3 à 6 mois. La poudre micronisée de prêle en gélules (500 à 1 500 mg par jour) est une alternative, mais la biodisponibilité du silicium est inférieure à celle de la décoction. Le macérat glycériné de bourgeons (gemmothérapie) n’existe pas pour la prêle (plante sans bourgeons ligneux), mais la teinture-mère hydro-alcoolique est disponible (30 à 50 gouttes, 2 à 3 fois par jour).
Précautions : la prêle des champs ne doit pas être confondue avec la prêle des marais (Equisetum palustre), toxique en raison de sa teneur en alcaloïdes (palustrine). La distinction repose sur la morphologie des gaines : chez E. arvense, les dents des gaines sont soudées par deux ou trois en groupes noirâtres ; chez E. palustre, les dents sont libres, plus larges, avec une marge blanche nette. En cas de doute, il est préférable de se fournir auprès d’un herboriste qualifié. La prêle est contre-indiquée en cas d’insuffisance rénale sévère (elle est légèrement diurétique) et déconseillée pendant la grossesse par principe de précaution.
VII. L’ortie, reminéralisante majeure
L’ortie dioïque (Urtica dioica L., Urticacées) est probablement la plante la plus complète du règne végétal en termes de profil minéral. Ses feuilles séchées contiennent environ 630 mg de calcium, 860 mg de potassium, 285 mg de magnésium, 4,2 mg de fer, 1,6 mg de zinc, 7 mg de manganèse, 0,8 mg de bore et 2 à 4 % de silicium — le tout pour 100 g de feuilles sèches. Cette richesse exceptionnelle s’explique par le système racinaire profond et ramifié de l’ortie, capable d’aller puiser les minéraux dans les couches du sol inaccessibles aux graminées superficielles.
Au-delà des minéraux, l’ortie fournit des cofacteurs critiques pour le métabolisme osseux : la vitamine K₁ (phylloquinone, 500 µg/100 g sec), précurseur de la vitamine K₂ nécessaire à l’activation de l’ostéocalcine ; la vitamine C (83 mg/100 g de feuilles fraîches), indispensable à la synthèse du collagène ; les caroténoïdes (bêta-carotène, lutéine), précurseurs de la vitamine A qui régule la différenciation des ostéoblastes ; et des protéines complètes (25 à 30 % de la matière sèche), incluant tous les acides aminés essentiels nécessaires à la synthèse de la matrice ostéoïde.
La tradition herboriste utilise l’ortie comme reminéralisant depuis des siècles. Maria Treben, herboriste autrichienne dont l’ouvrage La Santé à la pharmacie du Bon Dieu s’est vendu à plus de huit millions d’exemplaires, la recommandait en cure printanière de six semaines pour « restaurer les os et le sang ». Dans la médecine populaire alpine, la soupe d’ortie de printemps — confectionnée avec les jeunes pousses de 15 à 20 cm — était un rituel de revitalisation après l’hiver, prescrit notamment aux femmes ménopausées et aux personnes âgées pour prévenir les fractures.
Modes de préparation pour l’os :
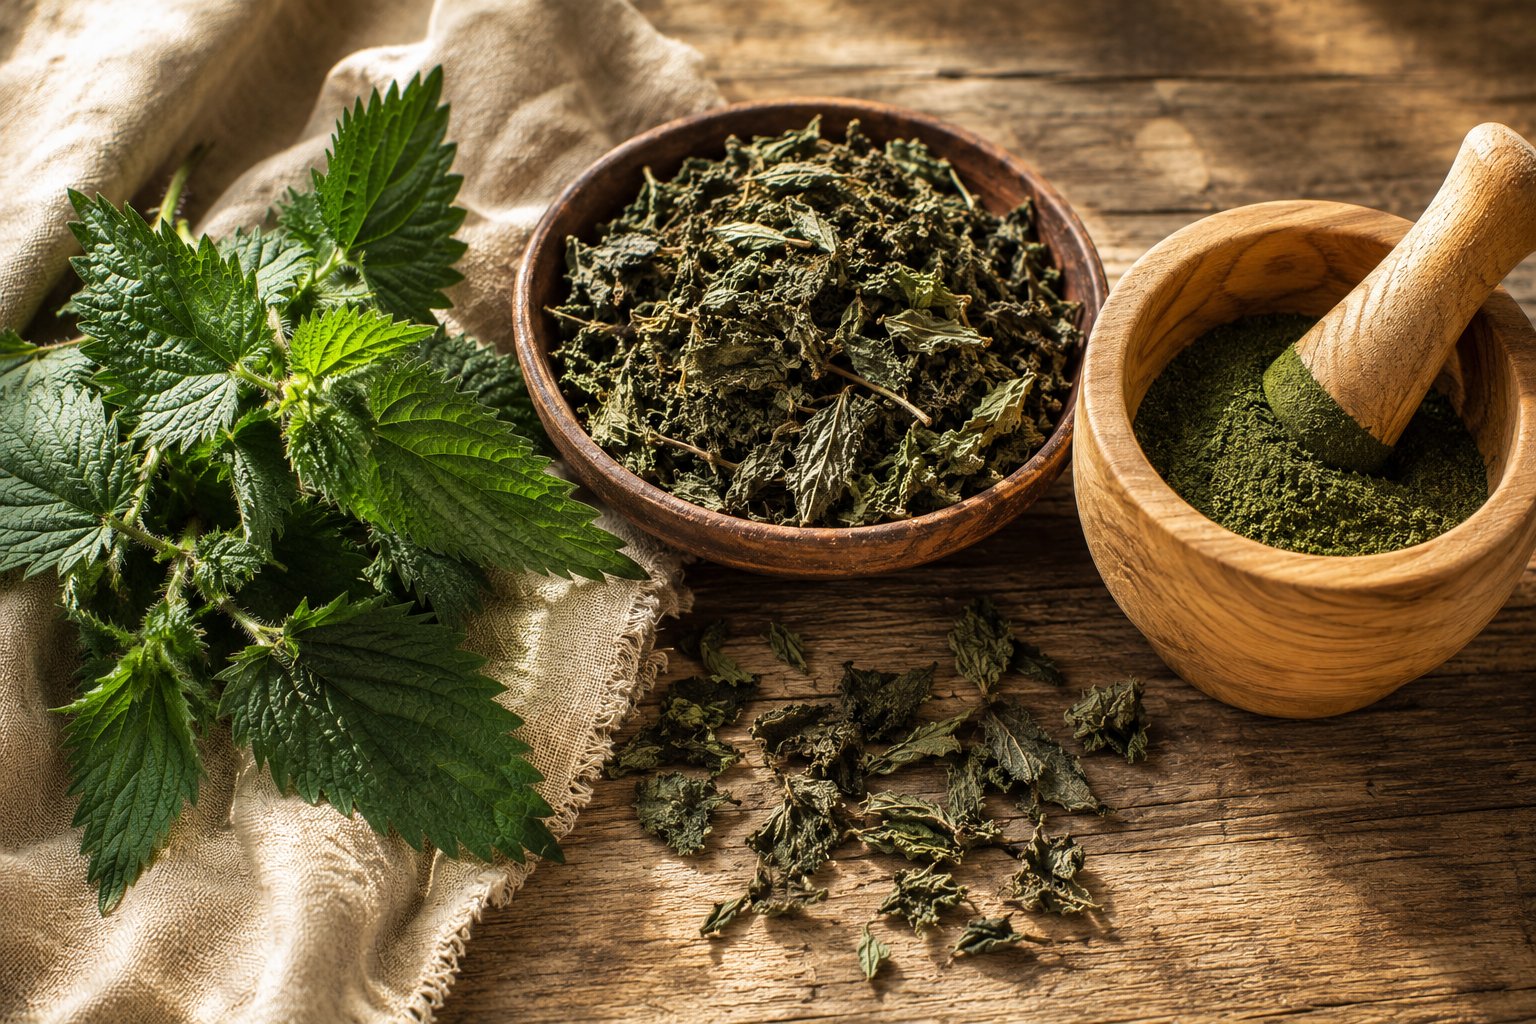
Tisane reminéralisante : placer 3 à 4 cuillères à soupe de feuilles d’ortie séchées dans un litre d’eau froide, porter lentement à frémissement (ne pas faire bouillir vigoureusement, ce qui détruirait la vitamine C), maintenir 2 à 3 minutes, puis couper le feu et laisser infuser 10 minutes couvert. Filtrer et boire dans la journée. L’ajout d’un filet de jus de citron améliore l’absorption du fer et du calcium par acidification.
Poudre d’ortie : les feuilles séchées finement broyées au moulin à café ou au mortier donnent une poudre vert foncé qui se conserve six mois en bocal hermétique à l’abri de la lumière. Posologie : 1 à 3 cuillères à café par jour, incorporées dans un smoothie, un yaourt, une soupe ou saupoudrées sur une salade. C’est la forme la plus concentrée et la plus pratique pour un apport minéral quotidien.
Vinaigre d’ortie : remplir un bocal de feuilles d’ortie fraîches ou sèches, couvrir de vinaigre de cidre non pasteurisé, fermer et macérer 4 à 6 semaines en agitant régulièrement. Le vinaigre acide dissout et chélate les minéraux (calcium, magnésium, fer, silicium), les rendant hautement biodisponibles. Deux cuillères à soupe de ce vinaigre dans une vinaigrette quotidienne apportent un supplément minéral significatif. Cette préparation ancestrale est l’une des plus efficaces pour l’assimilation du calcium végétal, car l’acide acétique du vinaigre mime l’acidité gastrique et facilite l’ionisation des sels minéraux.
Soupe d’ortie printanière : récolter les sommités de 15 à 20 cm de mars à mai (avant la floraison), les laver abondamment, les faire revenir 2 minutes dans un fond d’huile d’olive avec de l’oignon, ajouter de l’eau ou un bouillon de légumes, cuire 10 minutes, mixer. La cuisson neutralise les poils urticants (acide formique, histamine, sérotonine) tout en préservant l’essentiel du profil minéral. Consommée deux à trois fois par semaine au printemps, cette soupe constitue un apport reminéralisant de premier ordre.
VIII. Le bambou, record de silicium végétal
L’exsudat de bambou — la résine blanche qui se forme naturellement dans les nœuds de certaines espèces tropicales de bambou, principalement Bambusa arundinacea et Bambusa vulgaris — contient jusqu’à 70 à 90 % de silice (SiO₂), ce qui en fait de loin la source végétale la plus concentrée en silicium. Cette substance, appelée « tabashir » ou « bamboosil » dans la pharmacopée ayurvédique, est utilisée depuis plus de deux mille ans en médecine indienne et chinoise pour les problèmes osseux, articulaires et respiratoires.
Le tabashir se présente sous forme de concrétions blanches ou bleutées, translucides, que l’on trouve à l’intérieur des entre-nœuds du bambou, particulièrement dans les chaumes âgés. Sa silice se présente majoritairement sous forme amorphe hydratée, ce qui lui confère une biodisponibilité supérieure à celle de la silice cristalline (quartz). L’acide orthosilicique libéré par dissolution du tabashir dans l’eau est directement absorbable au niveau intestinal.
En phytothérapie moderne, l’exsudat de bambou est commercialisé sous forme de gélules de poudre (200 à 600 mg par jour, titré à 70 % de silice minimum) ou intégré dans des formules reminéralisantes associant prêle, ortie et bambou. C’est la source de choix lorsqu’on cherche un apport massif en silicium dans un volume réduit — là où la décoction de prêle nécessite un litre de liquide, une gélule de tabashir concentre l’équivalent en silice dans 300 mg de poudre.
La complémentarité entre la prêle et le bambou est intéressante. La prêle apporte du silicium accompagné de flavonoïdes, de potassium et de saponines aux propriétés reminéralisantes propres ; le bambou apporte un silicium extrêmement concentré mais avec un profil en cofacteurs plus limité. L’association des deux, fréquente dans les formules commerciales et les prescriptions naturopathiques, couvre à la fois le besoin en silicium pur et le besoin en cofacteurs phytochimiques.
La poudre de jeunes pousses de bambou, utilisée en cuisine asiatique, contient nettement moins de silice que le tabashir (environ 1 à 2 %), mais apporte des fibres alimentaires, du potassium et des composés phénoliques. Elle ne constitue pas un substitut au tabashir pour un objectif de reminéralisation osseuse.
L’huile essentielle de bambou n’existe pas au sens strict (le bambou n’est pas une plante aromatique), et les produits vendus sous ce nom sont généralement des huiles parfumées de synthèse sans intérêt thérapeutique. Seul l’exsudat solide (tabashir) possède une activité documentée sur le métabolisme du silicium.
IX. La vitamine K₂ : fixer le calcium au bon endroit
La vitamine K existe sous plusieurs formes dont les rôles biologiques diffèrent fondamentalement. La vitamine K₁ (phylloquinone), synthétisée par les végétaux verts, est le cofacteur de la coagulation sanguine — son nom vient de l’allemand Koagulationsvitamin. La vitamine K₂ (ménaquinone), produite par fermentation bactérienne, est le cofacteur de la minéralisation osseuse et de la protection vasculaire. Ne pas confondre ces deux formes est essentiel pour la santé osseuse.
La vitamine K₂ active par carboxylation deux protéines majeures du métabolisme calcique. L’ostéocalcine, sécrétée par les ostéoblastes, ne peut capturer le calcium circulant et le diriger vers la matrice osseuse que si elle est carboxylée par la vitamine K₂ — sous sa forme non carboxylée (ucOC, undercarboxylated osteocalcin), elle est biologiquement inactive. La Matrix Gla Protein (MGP), présente dans les parois vasculaires et les cartilages, ne peut inhiber la calcification des artères que si elle est elle aussi carboxylée par la vitamine K₂. Ainsi, la vitamine K₂ oriente le calcium vers l’os (où il est nécessaire) et l’éloigne des artères (où il est dangereux). Une carence en K₂ produit le pire scénario : des os déminéralisés ET des artères calcifiées.
La vitamine K₂ se décline en plusieurs sous-types, désignés par le nombre d’unités isoprène de leur chaîne latérale : MK-4, MK-7, MK-8, MK-9, etc. Les deux formes les plus étudiées sont la MK-4 (ménaquinone-4), à demi-vie courte (quelques heures), et la MK-7 (ménaquinone-7), à demi-vie longue (environ 72 heures). La MK-7 est la forme de choix pour la supplémentation car elle maintient des taux sanguins stables sur 24 heures avec une seule prise quotidienne.
Sources alimentaires de vitamine K₂ :
Le nattō japonais — graines de soja fermentées par Bacillus subtilis var. natto — est de loin la source alimentaire la plus riche en vitamine K₂ sous forme MK-7 : environ 1 000 µg pour 100 g. C’est un aliment traditionnel du petit-déjeuner au Japon, et il est remarquable que les régions japonaises où la consommation de nattō est la plus élevée (Tōhoku, Kantō) présentent les taux de fracture du col du fémur les plus bas du pays — corrélation documentée dans plusieurs études épidémiologiques publiées entre 2001 et 2012.
Les fromages à pâte dure affinés (gouda vieux, emmental, comté) contiennent 50 à 80 µg de MK-8 et MK-9 pour 100 g, produites par les bactéries de l’affinage. La choucroute crue artisanale contient de la MK-7 (environ 5 µg/100 g). Le miso, le tempeh et d’autres aliments fermentés contiennent des quantités variables de K₂ selon les souches bactériennes utilisées.
La conversion endogène de K₁ en MK-4 par les cellules humaines existe mais semble insuffisante pour couvrir les besoins osseux, notamment chez les personnes âgées. Un apport direct en K₂ est donc préférable.
La posologie étudiée pour la protection osseuse est de 45 µg à 200 µg de MK-7 par jour, ou de 45 mg de MK-4 par jour (dose pharmacologique utilisée au Japon dans le traitement de l’ostéoporose). Pour une approche alimentaire, une portion quotidienne de 40 à 50 g de nattō (environ 500 µg de MK-7) couvre largement les besoins.
Interaction majeure : la vitamine K₂ est contre-indiquée chez les personnes sous anticoagulants antivitamines K (AVK : warfarine, acénocoumarol, fluindione) car elle réduit l’effet anticoagulant et expose au risque thrombotique. Les patients sous AVK doivent maintenir un apport en vitamine K stable et ne jamais modifier leur alimentation en K₁ ou K₂ sans contrôle de l’INR. Les anticoagulants oraux directs (AOD : apixaban, rivaroxaban, dabigatran) ne sont pas affectés par la vitamine K.
X. Le magnésium végétal et la solidité osseuse
Environ 60 % du magnésium corporel total est stocké dans le squelette, où il s’incorpore à la surface des cristaux d’hydroxyapatite et influence leur taille, leur stabilité et leur solubilité. Un déficit en magnésium altère directement la qualité du cristal osseux : les cristaux deviennent plus gros, plus rigides et paradoxalement plus fragiles — comme un verre épais qui résiste moins aux chocs qu’un verre fin et souple.
Le magnésium intervient dans le métabolisme osseux par au moins quatre mécanismes distincts. Il est le cofacteur indispensable de la 1α-hydroxylase rénale, enzyme qui convertit la 25-OH-vitamine D (calcidiol, forme circulante inactive) en 1,25-(OH)₂-vitamine D (calcitriol, forme active). Sans magnésium suffisant, la vitamine D reste sous sa forme inactive et ne peut stimuler l’absorption intestinale du calcium — ce qui explique pourquoi certains patients supplémentés en vitamine D ne normalisent leur calcémie qu’après correction d’un déficit magnésien concomitant. Le magnésium régule également la sécrétion de la parathormone (PTH) par les glandes parathyroïdes : une hypomagnésémie sévère bloque la sécrétion de PTH, tandis qu’un déficit modéré chronique stimule excessivement la PTH, accélérant la résorption osseuse. Il participe à la synthèse du collagène (cofacteur de la lysyl oxydase) et module l’activité des ostéoblastes et des ostéoclastes via le système RANK/RANKL/OPG.
Le déficit en magnésium est extrêmement fréquent après cinquante ans. Les enquêtes nutritionnelles montrent que 70 à 80 % des adultes occidentaux n’atteignent pas l’apport recommandé de 400 à 420 mg/jour pour l’homme et 310 à 320 mg/jour pour la femme. L’appauvrissement des sols en magnésium (agriculture intensive), le raffinage des céréales (le son concentre le magnésium), la consommation d’eau osmosée ou adoucie, le stress chronique (qui augmente l’excrétion rénale de magnésium via le cortisol) et certains médicaments (diurétiques thiazidiques, IPP) aggravent cette carence silencieuse.
Sources végétales majeures de magnésium :
Le sarrasin (Fagopyrum esculentum, Polygonacées — ce n’est pas une graminée) : 231 mg de magnésium pour 100 g de graines entières. La galette de sarrasin bretonne (blé noir) est une source traditionnelle excellente. Le sarrasin contient également de la rutine (flavonoïde qui renforce les capillaires) et du D-chiro-inositol (sensibilisateur à l’insuline).
Les graines de courge (Cucurbita pepo) : 550 mg de magnésium pour 100 g de graines décortiquées — l’une des sources végétales les plus concentrées. Une poignée de 30 g (165 mg de magnésium) couvre plus de 40 % de l’apport recommandé.
Le cacao cru (Theobroma cacao) : 500 mg de magnésium pour 100 g de poudre de cacao non sucrée. Le chocolat noir à 70 % et plus en contient environ 200 mg/100 g — ce qui en fait un « supplément » particulièrement agréable.
Les amandes émondées : 270 mg de magnésium pour 100 g. Le magnésium de l’amande est bien absorbé car il est lié à des acides organiques (citrate, malate) plutôt qu’à l’acide phytique, à condition d’avoir retiré la peau.
L’ortie séchée, déjà citée : 285 mg de magnésium pour 100 g de feuilles sèches, dans un complexe minéral hautement synergique avec le calcium et le silicium.
Les eaux minérales magnésiennes (Hépar : 119 mg/L ; Contrex : 84 mg/L ; Rozana : 160 mg/L) constituent un apport complémentaire intéressant, d’autant que le magnésium dissous dans l’eau est sous forme ionique directement absorbable.
XI. Le bore : oligo-élément méconnu
Le bore est un métalloïde dont le rôle dans le métabolisme osseux n’a été reconnu que tardivement, à partir des travaux de Forrest Nielsen au Grand Forks Human Nutrition Research Center (USDA) dans les années 1980-1990. Ses expériences de déplétion/réplétion en bore chez des femmes ménopausées ont montré qu’un apport de 3 mg de bore par jour — après une période de carence — réduit de 40 % l’excrétion urinaire du calcium et du magnésium, augmente les taux sanguins de 17β-œstradiol et de testostérone, et élève la concentration sérique de 25-OH-vitamine D. Ces effets convergent tous vers une protection osseuse.
Le mécanisme d’action du bore sur l’os est encore incomplètement élucidé, mais plusieurs pistes sont documentées. Le bore forme des complexes avec les hydroxyles des sucres et des acides aminés, modulant l’activité de certaines enzymes du métabolisme stéroïdien — ce qui expliquerait son effet sur les taux d’œstrogènes et de testostérone. Il inhibe la 24-hydroxylase, enzyme qui inactive le calcitriol (forme active de la vitamine D), prolongeant ainsi sa durée d’action. Il semble également interagir directement avec la matrice osseuse en se substituant partiellement au silicium dans certaines liaisons croisées du collagène.
Les besoins quotidiens en bore sont estimés à 1 à 3 mg par jour. Les principales sources alimentaires sont les fruits secs (pruneaux : 2 à 3 mg/100 g ; raisins secs : 2,5 mg/100 g), les fruits à coque (amandes émondées : 2,8 mg/100 g ; noisettes : 2,7 mg/100 g), les légumineuses (haricots rouges : 1,4 mg/100 g), le miel, le vin rouge et les fruits frais (pommes, poires, raisin). L’ortie, le pissenlit et la luzerne sont également des sources notables de bore dans la pharmacopée végétale.
Une alimentation riche en fruits, légumes et légumineuses couvre naturellement les besoins en bore sans nécessité de supplémentation isolée. En revanche, les régimes pauvres en végétaux (riches en produits animaux et en aliments ultra-transformés) sont souvent déficitaires en bore — un facteur de risque supplémentaire d’ostéoporose rarement identifié en consultation médicale conventionnelle.
La toxicité du bore est faible aux doses alimentaires, mais une supplémentation supérieure à 20 mg par jour peut provoquer des nausées, des vomissements et des diarrhées. La dose maximale tolérée a été fixée à 20 mg/jour par l’Autorité européenne de sécurité des aliments (EFSA).
XII. Vitamine D et plantes : un tandem indispensable
La vitamine D₃ (cholécalciférol) est la clé de voûte de l’absorption intestinale du calcium et de la régulation du métabolisme phosphocalcique. Sans vitamine D suffisante, l’intestin n’absorbe que 10 à 15 % du calcium alimentaire (contre 30 à 40 % en situation de réplétion) et la parathormone compense en puisant dans les réserves osseuses — aggravant l’ostéoporose. Après cinquante ans, le risque de carence en vitamine D augmente considérablement : synthèse cutanée réduite, temps passé à l’intérieur, utilisation de crèmes solaires, et parfois malabsorption digestive.
La vitamine D n’est pas à proprement parler une vitamine mais une pro-hormone, puisqu’elle est synthétisée par l’organisme lui-même sous l’effet des rayons UVB (longueur d’onde 290-315 nm) sur le 7-déhydrocholestérol de l’épiderme. La source principale reste donc l’exposition solaire : 15 à 30 minutes de soleil sur les avant-bras et le visage, sans crème solaire, entre avril et octobre, entre 11 h et 15 h, suffisent à produire 10 000 à 20 000 UI de vitamine D₃ chez un adulte à la peau claire. Au-delà du 47ᵉ parallèle nord (soit la France au nord de Lyon, la Belgique, la Suisse, le Québec), la synthèse cutanée est quasi nulle de novembre à mars en raison de l’angle d’incidence insuffisant des UVB.
Les sources alimentaires de vitamine D₃ sont presque exclusivement animales (poissons gras, foie de morue, jaune d’œuf). Les champignons constituent la seule source végétale significative de vitamine D, mais sous forme de D₂ (ergocalciférol) : les champignons sauvages exposés au soleil — chanterelles, shiitake séchés au soleil, morilles — contiennent 10 à 30 µg de D₂ pour 100 g de poids sec. Les champignons de couche cultivés en obscurité en contiennent très peu (0,1 µg/100 g), mais leur teneur peut être multipliée par cent en les exposant simplement au soleil pendant 30 à 60 minutes, face renversée (lamelles vers le haut), avant consommation.
Le lichen boréal (Cladonia rangiferina) et le lichen d’Islande (Cetraria islandica) produisent naturellement de la vitamine D₃ (cholécalciférol) — fait remarquable car la D₃ est habituellement d’origine animale. Les compléments de vitamine D₃ « végane » extraite de lichen sont aujourd’hui largement disponibles et constituent une alternative éthique à l’huile de foie de poisson.
Le rôle des plantes dans le métabolisme de la vitamine D ne se limite pas à l’apport direct. Comme mentionné à la section X, le magnésium végétal est indispensable à la conversion de la vitamine D en sa forme active. Les polyphénols du thé vert stimulent l’expression du récepteur de la vitamine D (VDR) dans les cellules intestinales, amplifiant la réponse calcique. Les acides gras oméga-3 du lin et de la cameline améliorent la fluidité membranaire, facilitant l’action intracellulaire du calcitriol. Ainsi, une alimentation riche en plantes magnésiennes, en polyphénols et en oméga-3 potentialise l’effet de chaque nanogramme de vitamine D circulante — stratégie particulièrement pertinente pour les personnes chez qui la supplémentation en vitamine D ne normalise pas la densité osseuse.
Le statut en vitamine D se mesure par le dosage sanguin de la 25-OH-vitamine D (calcidiol). Les valeurs souhaitables pour la santé osseuse sont de 30 à 60 ng/mL (75 à 150 nmol/L). En dessous de 20 ng/mL, on parle de carence ; entre 20 et 30 ng/mL, d’insuffisance. Une supplémentation hivernale de 1 000 à 2 000 UI par jour (ou 50 000 UI par mois) est recommandée chez la plupart des adultes de plus de cinquante ans vivant en zone tempérée — à ajuster selon le dosage sanguin.
XIII. Les phyto-œstrogènes et la densité osseuse
Les phyto-œstrogènes sont des composés polyphénoliques d’origine végétale dont la structure moléculaire mime partiellement celle du 17β-œstradiol, leur permettant de se lier aux récepteurs aux œstrogènes (ER) et d’exercer une activité œstrogénique faible — de 100 à 10 000 fois inférieure à celle de l’hormone endogène. Cette activité modulatrice, loin d’être un défaut, est un avantage : les phyto-œstrogènes agissent comme des SERM (modulateurs sélectifs des récepteurs aux œstrogènes) naturels, exerçant un effet agoniste dans les tissus osseux (où ils stimulent les ostéoblastes via ERβ) et un effet neutre ou antagoniste dans les tissus mammaire et utérin (où ERα prédomine).
Trois familles principales de phyto-œstrogènes intéressent la santé osseuse :
Les isoflavones (génistéine, daidzéine, formononétine, biochanine A) sont les plus étudiées. On les trouve principalement dans le soja (Glycine max) et le trèfle rouge (Trifolium pratense). La génistéine a fait l’objet de plusieurs essais cliniques randomisés chez des femmes ménopausées : à la dose de 54 mg/jour pendant deux à trois ans, elle réduit significativement la perte osseuse au rachis lombaire et au col du fémur par rapport au placebo, avec une amplitude d’effet comparable à celle des faibles doses d’œstrogènes. Son mécanisme implique la stimulation de la production d’OPG par les ostéoblastes, l’inhibition directe des ostéoclastes (via la tyrosine kinase), et l’augmentation de l’expression des gènes du collagène de type I.
Les lignanes (sécoisolaricirésinol, matairésinol, pinorésinol) sont convertis par le microbiote intestinal en entérolactone et entérodiol, composés à activité œstrogénique faible. On les trouve dans les graines de lin (Linum usitatissimum) — la source la plus riche (environ 300 mg/100 g), loin devant le sésame (39 mg/100 g) et les céréales complètes. Les données sur leur effet osseux sont moins robustes que pour les isoflavones, mais une corrélation positive entre les taux urinaires d’entérolactone et la densité osseuse a été rapportée dans plusieurs études observationnelles.
Les coumestanes (coumestrol) se trouvent dans la luzerne (Medicago sativa) et les germes de trèfle. Le coumestrol a une affinité pour les récepteurs aux œstrogènes plus élevée que les isoflavones, mais les données cliniques sont limitées. La luzerne est davantage utilisée en phytothérapie pour sa richesse minérale globale (calcium, magnésium, bore, vitamine K₁) que pour ses coumestanes spécifiquement.
Le trèfle rouge (Trifolium pratense) mérite une mention particulière. Ses sommités fleuries contiennent les quatre isoflavones majeures — formononétine, biochanine A (précurseurs), génistéine et daidzéine (métabolites actifs) — dans un rapport qui favorise la conversion en formes actives. Plusieurs essais cliniques ont montré qu’un extrait standardisé de trèfle rouge (40 à 80 mg d’isoflavones/jour) réduit significativement les marqueurs de résorption osseuse (CTx, NTx) chez les femmes ménopausées, avec une bonne tolérance et sans stimulation endométriale ni mammaire aux doses étudiées.
En tisane, le trèfle rouge s’utilise à raison de 3 à 4 cuillères à café de sommités fleuries séchées par tasse, en départ à froid, montée lente au frémissement, infusion couverte de 10 minutes. Deux à trois tasses par jour en cures de deux mois avec une pause de deux semaines. Le goût est doux, légèrement floral, agréable même sans sucre.
Précaution importante : les phyto-œstrogènes sont contre-indiqués en cas d’antécédent personnel de cancer hormonodépendant (sein, endomètre, ovaire) ou de traitement par tamoxifène ou inhibiteur de l’aromatase. Bien que les données épidémiologiques (populations asiatiques à forte consommation de soja) ne montrent pas d’augmentation du risque mammaire, le principe de précaution s’applique chez les femmes à risque individuel élevé. Un avis médical est indispensable dans ce contexte.
XIV. Plantes anti-inflammatoires et protection ostéo-articulaire
L’inflammation chronique de bas grade — mesurable par une élévation de la CRP ultrasensible, de l’IL-6 et du TNF-α — est un facteur majeur de perte osseuse souvent sous-estimé. Ces cytokines pro-inflammatoires stimulent directement la production de RANKL et la différenciation des ostéoclastes, accélérant la résorption osseuse indépendamment du statut hormonal. Le terme « inflamm-aging » (inflammation liée au vieillissement) désigne cet état inflammatoire subclinique qui accompagne le vieillissement et contribue à l’ostéoporose autant qu’à l’athérosclérose, au diabète de type 2 et à la neurodégénérescence.
Plusieurs plantes anti-inflammatoires documentées protègent indirectement le squelette en modulant cette inflammation systémique :
Le curcuma (Curcuma longa, Zingibéracées) : la curcumine, son principal polyphénol, inhibe le NF-κB (facteur de transcription central de l’inflammation) et réduit l’expression de RANKL dans les cellules stromales de la moelle osseuse. Des études in vitro et animales montrent que la curcumine inhibe la différenciation et l’activité des ostéoclastes tout en stimulant la minéralisation par les ostéoblastes. Sa biodisponibilité orale est faible mais considérablement améliorée par l’association avec la pipérine du poivre noir (Piper nigrum) — multiplication par 20 de l’absorption — ou par des formulations lipidiques (curcumine + huile). La posologie en phytothérapie est de 1 à 3 g de poudre de curcuma par jour, avec une pincée de poivre noir et un corps gras.
Le gingembre (Zingiber officinale, Zingibéracées) : les gingérols et shogaols inhibent la cyclo-oxygénase 2 (COX-2) et la 5-lipoxygénase (5-LOX), réduisant la production de prostaglandines et de leucotriènes pro-inflammatoires. Le gingembre frais râpé (5 à 10 g par jour) ou en décoction constitue un anti-inflammatoire doux adapté à l’usage quotidien prolongé, sans les effets gastro-intestinaux des AINS de synthèse.
Le cassis (Ribes nigrum, Grossulariacées) : les feuilles de cassis contiennent des proanthocyanidines, des flavonoïdes et des acides gras essentiels qui exercent une action anti-inflammatoire comparable à celle d’un corticoïde faible — d’où le surnom de « cortisone végétale » parfois employé en naturopathie. Le bourgeon de cassis en macérat glycériné (gemmothérapie) est particulièrement prisé pour les douleurs articulaires inflammatoires. En tisane, les feuilles de cassis se préparent en départ à froid, montée au frémissement, infusion 10 minutes : 2 à 3 tasses par jour.
La reine-des-prés (Filipendula ulmaria, Rosacées) : ses sommités fleuries contiennent des dérivés salicylés (salicylaldéhyde, spiréine, monotropitine) qui sont les ancêtres naturels de l’aspirine. À la différence de l’acide acétylsalicylique de synthèse, les salicylés de la reine-des-prés sont gastroprotecteurs (la plante contient des mucilages et des tanins qui protègent la muqueuse gastrique). Tisane : 2 à 3 cuillères à café de sommités fleuries séchées par tasse, départ à froid, montée au frémissement — ne pas faire bouillir, ce qui détruirait les salicylés volatils. Contre-indiquée en cas d’allergie à l’aspirine.
L’harpagophytum (Harpagophytum procumbens, Pédaliacées) : la « griffe du diable » d’Afrique australe contient des iridoïdes (harpagoside, harpagide, procumbide) qui inhibent la synthèse des prostaglandines E₂, des leucotriènes B₄ et du TNF-α. Plusieurs essais cliniques ont montré son efficacité dans l’arthrose de la hanche et du genou, avec une réduction significative de la douleur et de la raideur articulaire. La posologie efficace est de 50 à 100 mg d’harpagoside par jour, soit environ 2 à 4 g de racine secondaire séchée en décoction. L’harpagophytum est contre-indiqué en cas d’ulcère gastroduodénal actif et doit être utilisé avec prudence en cas de traitement anticoagulant.
XV. Acides gras oméga-3 végétaux et métabolisme osseux
Le rapport entre acides gras oméga-6 et oméga-3 dans l’alimentation influence directement le niveau d’inflammation systémique et, par conséquent, le remodelage osseux. L’alimentation occidentale moderne présente un rapport oméga-6/oméga-3 de 15 à 20:1, alors que le rapport optimal pour la santé osseuse et cardiovasculaire se situe entre 1:1 et 4:1. Ce déséquilibre favorise la production de prostaglandines et de leucotriènes pro-inflammatoires à partir de l’acide arachidonique (oméga-6), stimulant chroniquement les ostéoclastes via le RANKL.
Les acides gras oméga-3 — acide alpha-linolénique (ALA, 18:3), acide eicosapentaénoïque (EPA, 20:5) et acide docosahexaénoïque (DHA, 22:6) — exercent un effet protecteur sur l’os par plusieurs mécanismes : inhibition de la production de PGE₂ pro-résortive, réduction de l’expression de RANKL, stimulation de l’absorption intestinale du calcium, et diminution de la calciurie. L’étude de Framingham (cohorte ostéoporose) a montré que les sujets ayant le rapport EPA+DHA/acide arachidonique le plus élevé présentent une densité osseuse fémorale significativement supérieure.
Sources végétales d’oméga-3 (ALA) :
Les graines de lin (Linum usitatissimum) : 22 g d’ALA pour 100 g de graines — la source végétale la plus concentrée. Les graines doivent être fraîchement moulues (moulin à café) pour libérer les oméga-3 de leur enveloppe mucilageuse ; entières, elles traversent le tube digestif sans être digérées. L’huile de lin, extrêmement fragile (oxydation rapide), doit être conservée au réfrigérateur, consommée dans le mois suivant l’ouverture, et jamais chauffée. Posologie : 1 à 2 cuillères à soupe de graines moulues par jour, ou 1 cuillère à café d’huile.
Les graines de chia (Salvia hispanica) : 17,5 g d’ALA pour 100 g. Contrairement au lin, le chia n’a pas besoin d’être moulu grâce à son enveloppe gélatineuse qui se dissout dans l’eau. Trempées 15 minutes dans un liquide (eau, lait végétal, jus), les graines de chia forment un gel riche en mucilages qui facilite le transit et l’absorption des minéraux.
Les noix (Juglans regia) : 9 g d’ALA pour 100 g de cerneaux. Une poignée quotidienne de 30 g (6-7 noix) apporte environ 2,7 g d’ALA, couvrant largement l’apport recommandé de 1,6 g/jour.
L’huile de cameline (Camelina sativa) : 38 % d’ALA — la plus haute teneur parmi les huiles alimentaires, supérieure même à l’huile de lin. Sa teneur en vitamine E (tocophérols) lui confère une meilleure stabilité oxydative que l’huile de lin, permettant un usage en assaisonnement sans les contraintes de conservation extrêmes du lin. C’est une redécouverte récente d’une plante oléagineuse cultivée en Europe depuis le Néolithique.
Le pourpier (Portulaca oleracea) : cette « mauvaise herbe » cosmopolite est la seule plante à feuilles qui contient des quantités significatives d’EPA (acide eicosapentaénoïque, 0,01 g/100 g de feuilles fraîches) en plus d’ALA (0,4 g/100 g). Bien que les quantités soient modestes, le pourpier sauvage incorporé régulièrement dans les salades contribue à un meilleur ratio oméga-6/oméga-3.
La conversion de l’ALA végétal en EPA et DHA est faible chez l’humain (5 à 10 % pour l’EPA, moins de 1 % pour le DHA), mais elle est améliorée par un apport suffisant en zinc, magnésium, vitamine B6 et vitamine C — cofacteurs des désaturases et des élongases — et par la réduction de l’apport en oméga-6 (huile de tournesol, de maïs, de soja), car les oméga-6 et les oméga-3 partagent les mêmes enzymes de conversion. Un régime riche en plantes sauvages (ortie, pourpier, pissenlit) et en graines de lin/chia, avec peu d’huiles raffinées d’oméga-6, optimise naturellement ce rapport.
XVI. Modes de préparation : tisanes, poudres, vinaigres
Le choix du mode de préparation conditionne directement la quantité de minéraux et de principes actifs effectivement extraits et assimilés. Pour les plantes reminéralisantes, la forme galénique n’est pas un détail — c’est un facteur déterminant d’efficacité.
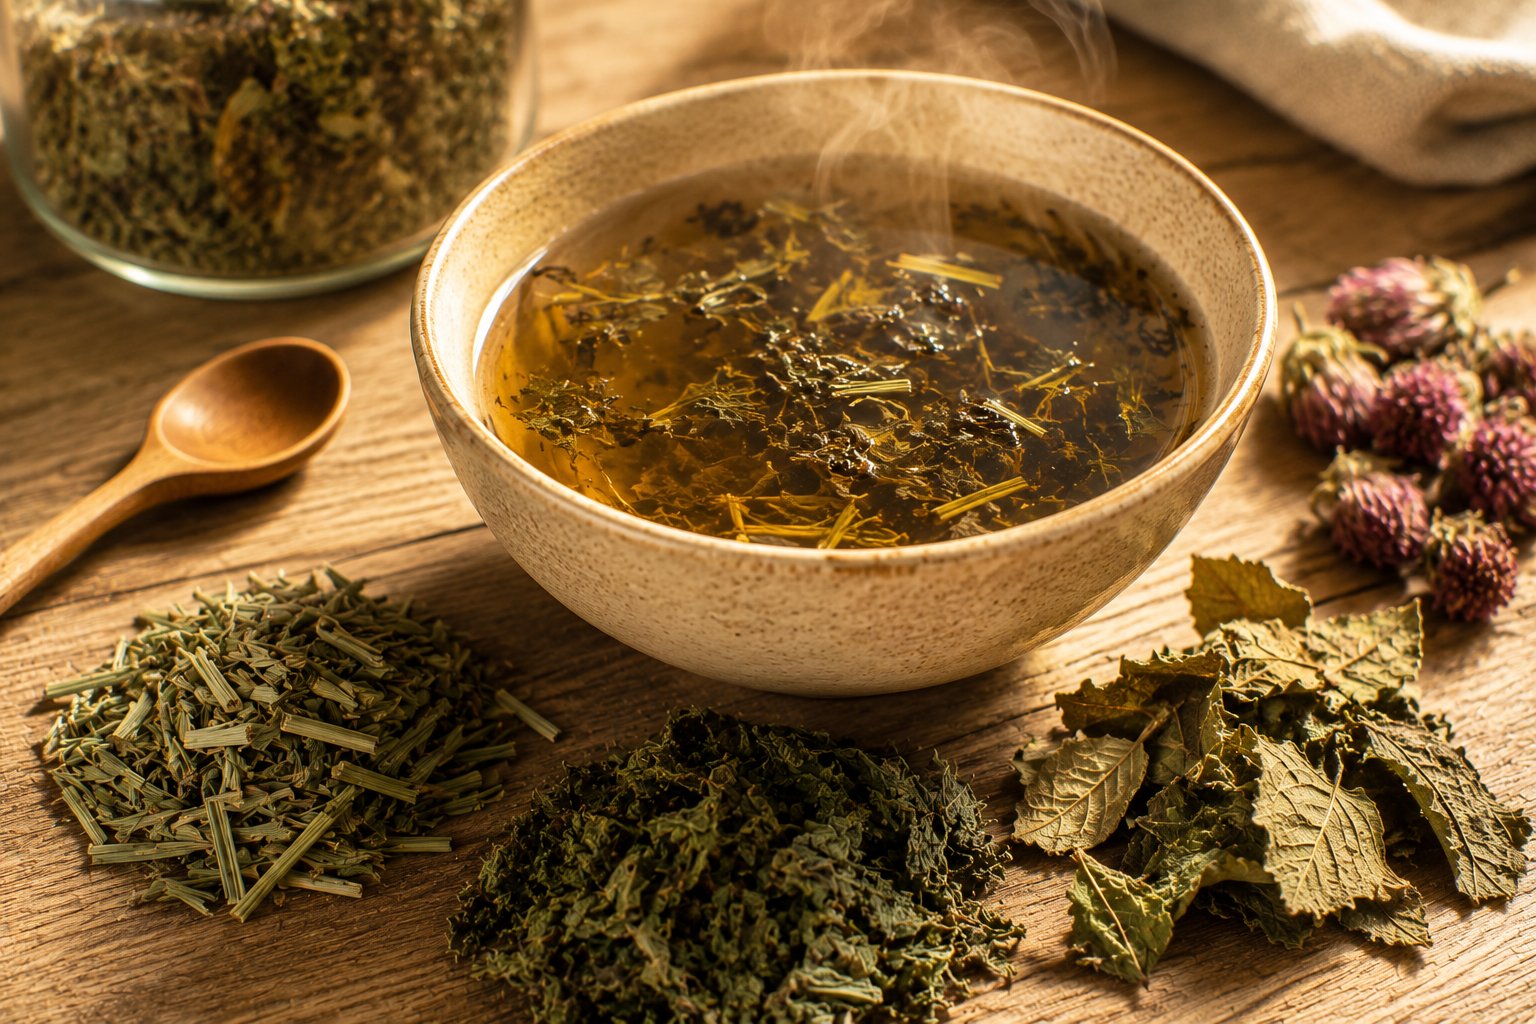
La décoction (pour les parties dures et la silice) : la décoction est le mode d’extraction de choix pour la prêle, les écorces de saule, les racines d’harpagophytum et toute partie dure ou ligneuse. Principe : placer la plante dans l’eau froide, porter lentement à ébullition, maintenir un frémissement doux pendant 10 à 20 minutes selon la dureté du matériel végétal, puis laisser infuser hors du feu encore 10 minutes. La cuisson prolongée solubilise la silice polymérisée en acide orthosilicique assimilable, hydrolyse les parois cellulaires lignocellulosiques et libère les minéraux de leur matrice fibreuse. Filtrer et boire dans la journée (les décoctions ne se conservent pas plus de 24 heures).
La tisane par départ à froid (pour les feuilles, fleurs et sommités) : placer les plantes dans l’eau froide, monter lentement jusqu’au frémissement (jamais d’ébullition vive, qui détruit les vitamines thermosensibles et volatilise les composés aromatiques), couper le feu et laisser infuser couvert pendant 10 à 15 minutes. Ce mode préserve la vitamine C de l’ortie, les salicylés de la reine-des-prés et les huiles essentielles des Lamiacées, tout en extrayant efficacement les minéraux grâce au temps de contact prolongé avec l’eau chaude.
Tisane reminéralisante composite — formule de référence :
- Prêle des champs (tige stérile) : 30 %
- Ortie (feuille) : 30 %
- Feuille de cassis : 15 %
- Trèfle rouge (sommité fleurie) : 15 %
- Prêle en poudre (pour renforcer la silice) : 10 %
Pour un litre : 4 cuillères à soupe du mélange dans un litre d’eau froide. Monter lentement au frémissement, maintenir 3 minutes (la prêle bénéficie de cette courte cuisson), couper le feu, laisser infuser couvert 15 minutes, filtrer. Boire dans la journée, tiède ou froid. Cure de 3 semaines, pause d’une semaine, pendant 3 à 6 mois.
Les poudres de plantes : le broyage fin des plantes séchées au moulin à café ou au broyeur donne des poudres qui concentrent l’intégralité du profil minéral et des principes actifs de la plante (contrairement aux tisanes qui n’extraient qu’une fraction hydrosoluble). La poudre d’ortie (1 à 3 cuillères à café/jour), la poudre de prêle (1 à 2 cuillères à café/jour) et la poudre de lithothamne (algue calcaire : 1 cuillère à café/jour) se mélangent facilement dans un smoothie, un yaourt, une compote ou une soupe. C’est la forme la plus pratique pour un apport quotidien régulier, notamment pour les personnes qui n’ont pas le temps ou le goût de préparer des tisanes.
Le vinaigre d’extraction minérale : le vinaigre de cidre non pasteurisé, acide (pH 2,5 à 3,5), est un excellent solvant des sels minéraux végétaux. Remplir un bocal en verre de plantes sèches (ortie, prêle, pissenlit, feuilles de framboisier, trèfle rouge — seules ou en mélange), couvrir de vinaigre de cidre biologique, fermer hermétiquement et macérer 4 à 6 semaines en agitant tous les deux à trois jours. Filtrer et conserver au frais. Le vinaigre résultant est riche en calcium, magnésium, fer, silicium et bore sous forme de sels d’acétate hautement biodisponibles. Utilisation : 1 à 2 cuillères à soupe par jour en vinaigrette, dans un verre d’eau tiède le matin (avec une cuillère de miel), ou en marinade. Ce vinaigre minéral est l’une des préparations les plus efficaces et les plus anciennes de la pharmacopée populaire pour la reminéralisation.
Le bouillon d’os végétal : une variante moins connue consiste à préparer un « bouillon reminéralisant » en faisant mijoter pendant 30 minutes à feu doux un mélange de légumes riches en minéraux (chou frisé, brocoli, poireau, céleri branche) avec des algues (wakame, kombu — source de calcium, iode et magnésium), de la prêle séchée et de l’ortie séchée, dans une eau légèrement acidifiée par un filet de vinaigre de cidre (l’acidité améliore l’extraction minérale). Ce bouillon se boit en tasse ou sert de base pour les soupes. La cuisson prolongée avec le vinaigre maximise la solubilisation des minéraux.
XVII. Programme journalier reminéralisant
Voici un programme type de reminéralisation osseuse par les plantes, conçu pour une femme ménopausée ou un homme de plus de soixante ans présentant une ostéopénie documentée par ostéodensitométrie (T-score entre -1 et -2,5). Ce programme ne remplace pas un suivi médical et doit être adapté aux particularités individuelles (traitements en cours, pathologies associées, allergies).
Au réveil :
- Un grand verre d’eau tiède avec 1 cuillère à soupe de vinaigre d’ortie-prêle (préparé selon la section XVI) et 1 cuillère à café de miel de bruyère (riche en bore).
- Exposition solaire de 15 minutes si la saison le permet (bras et visage découverts, sans crème solaire).
Petit-déjeuner :
- Porridge de sarrasin concassé (2 cuillères à soupe) cuit dans du lait d’amande enrichi en calcium, parsemé de 1 cuillère à soupe de graines de lin fraîchement moulues, 1 cuillère à café de graines de sésame complet, et quelques figues sèches coupées.
- Ou : tartine de pain au levain complet avec du tahini (purée de sésame) et de la confiture de cassis.
- 1 tasse de tisane reminéralisante (prêle-ortie-cassis-trèfle rouge).
En milieu de matinée :
- 1 tasse de décoction de prêle (préparée le matin pour la journée).
- Une poignée d’amandes émondées (20-25 g) et 3-4 noix.
Déjeuner :
- Salade de chou frisé massé (froissé avec un filet d’huile d’olive pour attendrir les fibres), vinaigrette au vinaigre d’ortie, parsemée de graines de courge et de sésame.
- Plat principal incluant des Brassicacées cuites (brocoli vapeur, chou chinois sauté) et/ou des légumineuses trempées et cuites (lentilles, pois chiches).
- Assaisonner avec du curcuma + poivre noir + huile de cameline (crue, ajoutée après cuisson).
Goûter :
- 1 tasse de tisane reminéralisante.
- 2 carrés de chocolat noir 85 % (magnésium + polyphénols).
- 3-4 pruneaux (bore + potassium alcalinisant).
Dîner :
- Soupe d’ortie printanière (en saison) ou bouillon reminéralisant végétal (hors saison).
- Plat léger : galette de sarrasin garnie de légumes, ou poisson sauvage (sardines, maquereaux — source de vitamine D₃ et d’EPA/DHA).
- 40 à 50 g de nattō (vitamine K₂ MK-7) — s’initier progressivement à son goût et sa texture particuliers.
Au coucher :
- 1 cuillère à café de poudre d’ortie dans un verre de lait d’avoine tiède (le calcium se fixe pendant la nuit, car la résorption osseuse est maximale entre 2 h et 6 h du matin).
- Si supplémentation : vitamine D₃ (1 000 à 2 000 UI) + vitamine K₂ MK-7 (100 µg) — à prendre avec un corps gras (vitamines liposolubles).
Activité physique quotidienne : la stimulation mécanique est indispensable à la fixation du calcium sur l’os (loi de Wolff : l’os se renforce dans les directions où il est sollicité). Trente minutes de marche rapide, de jardinage, de montée d’escaliers ou de gymnastique douce (yoga, tai-chi, qi gong) suffisent à activer les ostéocytes mécanosensibles. Les exercices en charge (debout, portant son propre poids) sont nettement plus efficaces que la natation ou le vélo pour stimuler la formation osseuse. Les exercices de résistance (haltères légers, élastiques, poids du corps) stimulent directement les ostéoblastes au niveau des insertions musculaires.
Durée de la cure : le remodelage osseux est un processus lent. Un cycle complet de remodelage (résorption + formation) dure environ 4 à 6 mois. Il faut donc maintenir le programme pendant au moins 6 mois avant d’espérer un effet mesurable sur l’ostéodensitométrie, et idéalement 12 à 24 mois pour une amélioration significative. Les tisanes se prennent en cures de 3 semaines avec 1 semaine de pause ; les poudres et le vinaigre peuvent être pris en continu. L’alimentation reminéralisante, elle, n’a pas besoin de « pause » — c’est un mode de vie, pas un traitement ponctuel.
XVIII. Contre-indications et interactions médicamenteuses
La reminéralisation osseuse par les plantes est une démarche douce et progressive, mais elle n’est pas dénuée de risques, en particulier chez les personnes polymédicamentées ou atteintes de certaines pathologies. Les interactions suivantes doivent être connues et respectées.
Anticoagulants antivitamines K (AVK) : warfarine, acénocoumarol, fluindione. L’ortie, la luzerne, le trèfle rouge et toutes les plantes riches en vitamine K₁ peuvent réduire l’effet anticoagulant et exposer au risque de thrombose. Si un traitement AVK est en cours, l’apport en vitamine K doit rester stable d’un jour à l’autre — toute modification significative (introduction d’une tisane d’ortie quotidienne, par exemple) nécessite un contrôle de l’INR. La supplémentation en vitamine K₂ est formellement contre-indiquée sous AVK. Les anticoagulants oraux directs (AOD) ne sont pas affectés par la vitamine K.
Lithium : la prêle, diurétique, peut augmenter la concentration plasmatique du lithium en réduisant son excrétion rénale, exposant au risque de surdosage (tremblements, confusion, arythmie). Les plantes diurétiques sont déconseillées en cas de traitement par lithium sans surveillance de la lithémie.
Diurétiques thiazidiques : ces médicaments (hydrochlorothiazide, indapamide) réduisent la calciurie et augmentent la calcémie. L’association avec des plantes fortement calciques (ortie, lithothamne) et une supplémentation en vitamine D peut théoriquement conduire à une hypercalcémie — bien que le risque soit faible avec les doses alimentaires habituelles. Une surveillance de la calcémie est prudente en début de cure.
Inhibiteurs de la pompe à protons (IPP) : oméprazole, lansoprazole, pantoprazole, ésoméprazole, rabéprazole. Ces médicaments, parmi les plus prescrits au monde, réduisent considérablement l’absorption du calcium (en supprimant l’acidité gastrique nécessaire à l’ionisation des sels de calcium), du magnésium et du fer. L’usage prolongé d’IPP (plus de 2 ans) est un facteur de risque indépendant d’ostéoporose. Les vinaigres d’extraction minérale sont particulièrement pertinents chez ces patients, car les minéraux sont déjà sous forme ionisée dans le milieu acide du vinaigre et ne dépendent pas de l’acidité gastrique pour être absorbés.
Biphosphonates : alendronate, risédronate, zolédronate. Ces médicaments anti-résorptifs se lient aux cristaux d’hydroxyapatite et inhibent les ostéoclastes. Leur absorption orale est très faible (1 à 3 %) et réduite par le calcium alimentaire — il faut les prendre à jeun, 30 minutes avant tout aliment ou boisson contenant du calcium. Les tisanes reminéralisantes et les poudres de plantes calciques doivent être prises au minimum 2 heures après le biphosphonate pour ne pas interférer avec son absorption.
Cancers hormonodépendants : les phyto-œstrogènes (trèfle rouge, soja, luzerne, houblon) sont contre-indiqués en cas d’antécédent personnel de cancer du sein, de l’endomètre ou de l’ovaire à récepteurs hormonaux positifs (RE+ et/ou RP+). Par extension, ils sont déconseillés en cas de traitement par tamoxifène, raloxifène ou inhibiteur de l’aromatase (anastrozole, létrozole, exémestane). Dans ce contexte, la reminéralisation reposera sur les plantes non œstrogéniques : prêle, ortie, bambou, curcuma, gingembre.
Insuffisance rénale : les reins sont la voie d’excrétion majeure du calcium, du magnésium, du potassium et du silicium. En cas d’insuffisance rénale chronique (DFG inférieur à 30 mL/min), l’accumulation de ces minéraux peut devenir dangereuse (hyperkaliémie, hypermagnésémie, hypercalcémie). Les plantes reminéralisantes sont déconseillées en insuffisance rénale sévère sans suivi biologique rapproché. La prêle est formellement contre-indiquée en insuffisance rénale en raison de son effet diurétique et de sa richesse en silicium et en potassium.
Calculs rénaux : les antécédents de lithiase rénale calcique (oxalate ou phosphate de calcium) imposent la prudence avec toute supplémentation calcique, y compris végétale. Paradoxalement, le calcium alimentaire (pris au cours du repas) réduit le risque de lithiase en se liant aux oxalates dans l’intestin et en empêchant leur absorption, tandis que le calcium pris entre les repas (en gélules) augmente la calciurie et le risque de calculs. Les tisanes reminéralisantes doivent donc être prises de préférence au cours ou juste après les repas chez les personnes à risque lithiasique.
Grossesse et allaitement : bien que les besoins en calcium et en magnésium augmentent pendant la grossesse et l’allaitement, l’utilisation de certaines plantes (prêle, trèfle rouge, luzerne) est déconseillée par principe de précaution en l’absence de données suffisantes sur leur innocuité chez la femme enceinte. L’ortie en tisane à doses modérées (1 à 2 tasses/jour) est traditionnellement considérée comme sûre au deuxième et troisième trimestre.
En résumé : avant d’entreprendre un programme de reminéralisation par les plantes, il est essentiel de faire le point avec son médecin sur les traitements en cours, de réaliser un bilan biologique de base (calcémie, phosphatémie, magnésémie, 25-OH-vitamine D, créatinine, INR si traitement AVK) et de planifier un contrôle ostéodensitométrique de référence. La phytothérapie n’est pas incompatible avec les traitements médicamenteux de l’ostéoporose — elle les complète et les potentialise — mais elle exige la même rigueur et le même suivi.
Bibliographie
- Jugdaohsingh R. et al., « Dietary silicon intake and absorption », American Journal of Clinical Nutrition, 2002, 75(5), p. 887-893.
- Carlisle E. M., « Silicon: a requirement in bone formation independent of vitamin D₁ », Calcified Tissue International, 1981, 33(1), p. 27-34.
- Jugdaohsingh R. et al., « Dietary silicon intake is positively associated with bone mineral density in men and premenopausal women of the Framingham Offspring cohort », Journal of Bone and Mineral Research, 2004, 19(2), p. 297-307.
- Bolland M. J. et al., « Vascular events in healthy older women receiving calcium supplementation: randomised controlled trial », British Medical Journal, 2008, 336, p. 262-266.
- Bolland M. J. et al., « Effect of calcium supplements on risk of myocardial infarction and cardiovascular events: meta-analysis », British Medical Journal, 2010, 341, c3691.
- Weaver C. M. et al., « Calcium bioavailability and its relation to osteoporosis », Proceedings of the Society for Experimental Biology and Medicine, 1992, 200(2), p. 157-160.
- Knapen M. H. J. et al., « Three-year low-dose menaquinone-7 supplementation helps decrease bone loss in healthy postmenopausal women », Osteoporosis International, 2013, 24(9), p. 2499-2507.
- Morabito N. et al., « Effects of genistein and hormone-replacement therapy on bone loss in early postmenopausal women: a randomized double-blind placebo-controlled study », Journal of Bone and Mineral Research, 2002, 17(10), p. 1904-1912.
- Nielsen F. H. et al., « Effect of dietary boron on mineral, estrogen, and testosterone metabolism in postmenopausal women », FASEB Journal, 1987, 1(5), p. 394-397.
- Rizzoli R. et al., « The role of dietary protein and vitamin D in maintaining musculoskeletal health in postmenopausal women », Osteoporosis International, 2014, 25(5), p. 1359-1377.
- Wacker M. et Holick M. F., « Sunlight and vitamin D: a global perspective for health », Dermato-Endocrinology, 2013, 5(1), p. 51-108.
- Muir J. M. et al., « Effect of omega-3 fatty acids on bone metabolism: a systematic review », Nutrients, 2020, 12(10), p. 2965.
- Atkinson C. et al., « Red clover-derived isoflavones and mammographic breast density: a double-blind, randomized, placebo-controlled trial », Breast Cancer Research, 2004, 6(3), R170-R179.
- Spector T. D. et al., « Effect of phytoestrogens on bone turnover in postmenopausal women: a randomized controlled trial », Journal of Clinical Endocrinology and Metabolism, 2003, 88(10), p. 4740-4747.
- Leclerc H., Précis de phytothérapie, Paris, Masson, 1935 ; rééd. 1983, p. 215-228 (chapitre « Reminéralisants végétaux »).
Avertissement — Cet article est publié à titre informatif et éducatif. Il ne constitue en aucun cas un avis médical, un diagnostic ou une prescription. L’ostéoporose est une pathologie qui nécessite un suivi médical, une ostéodensitométrie et parfois un traitement médicamenteux. Les plantes mentionnées peuvent interagir avec des médicaments ou être contre-indiquées dans certaines situations cliniques. Consultez un professionnel de santé qualifié avant de modifier votre alimentation ou d’introduire des plantes médicinales, en particulier si vous êtes sous traitement anticoagulant, hormonal ou pour l’ostéoporose. L’auteur décline toute responsabilité en cas d’usage inapproprié des informations contenues dans cet article.