Les champignons sauvages comestibles sont les grands oubliés de la nutrition moderne. Relégués au rang de condiments ou de curiosités automnales, ils recèlent pourtant un profil nutritionnel exceptionnel : protéines complètes à haute digestibilité, vitamines du groupe B en concentrations remarquables, vitamine D₂ pour peu qu’ils aient vu le soleil, sélénium, germanium, polysaccharides immunostimulants (bêta-glucanes), et une densité calorique dérisoire qui autorise une consommation généreuse. Cet article de fond explore la valeur nutritionnelle méconnue des espèces sauvages que l’on rencontre dans les forêts, les prairies et les lisières d’Europe tempérée — chanterelles, cèpes, morilles, pieds-de-mouton, trompettes-de-la-mort, coulemelles, girolles — et détaille ce que la science moderne confirme de leur intérêt pour la santé : immunité, microbiote, protection hépatique, prévention du déclin cognitif et soutien métabolique. Un guide de cueillette responsable, des modes de conservation et des recettes nutritionnellement optimisées complètent ce panorama d’un aliment-médicament ancestral que nous avons le privilège de trouver gratuitement sous nos pas.
Sommaire
I. Ni plante ni animal : le règne fongique
II. Macronutriments : protéines, fibres, absence de graisses
III. Vitamines du groupe B : un concentré méconnu
IV. Vitamine D₂ et exposition solaire
V. Minéraux et oligo-éléments : sélénium, germanium, potassium
VI. Les bêta-glucanes : immunité et microbiote
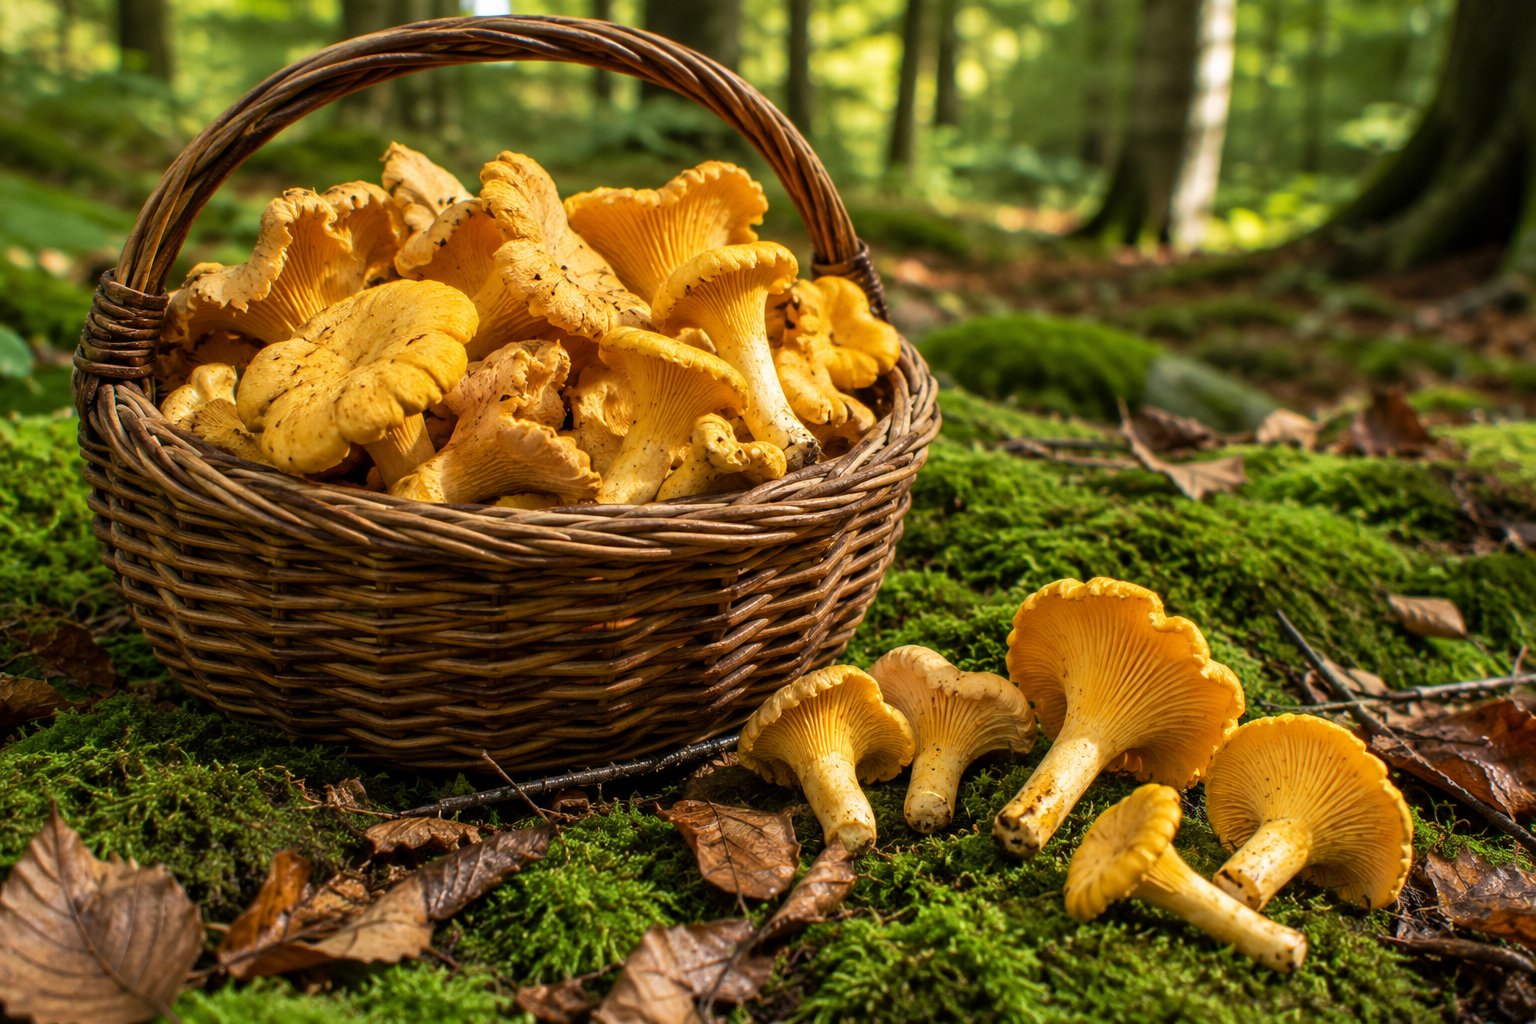
VII. La chanterelle commune, trésor des sous-bois
VIII. Le cèpe de Bordeaux, roi des forêts
IX. La morille, diamant du printemps
X. Trompettes-de-la-mort et pieds-de-mouton
XI. La coulemelle et les grands lépiotes
XII. Champignons et protection hépatique
XIII. Champignons et santé cognitive
XIV. Champignons et régulation métabolique
XV. Cueillette responsable et identification sûre
XVI. Conservation : séchage, congélation, lactofermentation
I. Ni plante ni animal : le règne fongique
Les champignons ne sont pas des plantes. Cette affirmation, qui paraît évidente au mycologue, reste mal intégrée par le grand public et par une partie des professionnels de la nutrition qui classent encore les champignons parmi les « légumes ». En réalité, les champignons constituent un règne biologique à part entière — le règne des Fungi — plus proche des animaux que des végétaux sur l’arbre phylogénétique. Comme les animaux, ils sont hétérotrophes (incapables de photosynthèse), stockent le glycogène (et non l’amidon), et possèdent de la chitine dans leurs parois cellulaires (le même polysaccharide qui forme l’exosquelette des insectes et des crustacés).
Ce que nous appelons communément « champignon » — le carpophore — n’est que l’organe reproducteur éphémère d’un organisme bien plus vaste : le mycélium, réseau de filaments microscopiques (hyphes) qui s’étend sur des surfaces considérables dans le sol, le bois mort ou la litière forestière. Un mycélium de cèpe peut coloniser plusieurs dizaines de mètres carrés de sol forestier ; le plus grand organisme vivant connu est un mycélium d’Armillaria ostoyae (armillaire couleur de miel) dans l’Oregon, qui couvre 9,6 km² et pèse environ 6 000 tonnes. Le carpophore que nous cueillons n’est que la pointe visible d’un iceberg souterrain.
Cette biologie unique confère aux champignons un profil nutritionnel sans équivalent dans le monde végétal. Leur métabolisme hétérotrophe les conduit à synthétiser des molécules que les plantes ne produisent pas : ergostérol (précurseur de la vitamine D₂), ergothionéine (antioxydant intracellulaire unique), lovastatine (statine naturelle de certaines espèces), bêta-glucanes à liaisons β-1,3/1,6 (immunomodulateurs puissants), et une gamme d’enzymes hydrolytiques (cellulases, lignases, protéases) dont certaines ont des applications médicales directes.
Les champignons jouent trois rôles écologiques majeurs dans les écosystèmes forestiers. Les saprophytes (pleurotes, shiitake, agarics) décomposent la matière organique morte et recyclent les nutriments. Les mycorhiziens (cèpes, chanterelles, truffes, amanites) vivent en symbiose avec les racines des arbres, échangeant des minéraux (phosphore, azote, eau) contre des sucres issus de la photosynthèse — on estime que 90 % des plantes vasculaires dépendent de partenaires mycorhiziens pour leur nutrition minérale. Les parasites (armillaires, polypores) attaquent les arbres vivants affaiblis. Comprendre ces rôles éclaire pourquoi les champignons mycorhiziens ne peuvent être cultivés (ils ont besoin de leur arbre partenaire vivant) et doivent être cueillis en forêt — ce qui en fait un aliment sauvage par essence.
Du point de vue nutritionnel, cette position taxonomique unique entre animal et végétal se traduit par un profil hybride : la richesse protéique et la présence de vitamine D rapprochent les champignons du monde animal, tandis que leur teneur en fibres (chitine, bêta-glucanes), leur absence de cholestérol et leur faible densité calorique les rapprochent du monde végétal. C’est cette dualité qui fait leur intérêt exceptionnel pour la santé humaine.
II. Macronutriments : protéines, fibres, absence de graisses
Les champignons sauvages présentent un profil macronutritionnel remarquablement favorable. Sur la base du poids sec (les champignons frais contiennent 85 à 95 % d’eau), la composition moyenne s’établit ainsi :
- Protéines : 20 à 35 % du poids sec, soit 2 à 4 g pour 100 g de champignon frais. Ce chiffre, modeste en apparence, masque une qualité protéique exceptionnelle : les champignons contiennent les neuf acides aminés essentiels, avec un profil souvent comparable à celui de la viande. Le cèpe de Bordeaux (Boletus edulis) contient 30 à 35 % de protéines sur matière sèche, la morille (Morchella esculenta) atteint 25 à 30 %, et même l’humble champignon de Paris (Agaricus bisporus) fournit 24 à 26 %. La digestibilité des protéines fongiques est estimée à 70-80 %, inférieure à celle des protéines animales (95 %) mais supérieure à celle de nombreuses protéines végétales (légumineuses : 65-75 %).
- Glucides : 35 à 50 % du poids sec, mais sous des formes très particulières. Les glucides des champignons sont principalement constitués de polysaccharides non digestibles (chitine, bêta-glucanes, mannanes) qui fonctionnent comme des fibres alimentaires, et de tréhalose (disaccharide de glucose) et de mannitol (polyol) qui apportent une légère saveur sucrée. L’amidon est totalement absent. L’index glycémique des champignons est quasi nul.
- Lipides : 2 à 6 % du poids sec, soit des traces en frais. Les acides gras présents sont majoritairement insaturés : acide linoléique (oméga-6, 55-75 % des acides gras totaux), acide oléique (15-25 %) et acide palmitique (10-15 %). Certaines espèces (chanterelle, cèpe) contiennent de petites quantités d’acide linolénique (oméga-3). Le cholestérol est totalement absent — les champignons contiennent de l’ergostérol, stérol végétal qui n’élève pas la cholestérolémie.
- Fibres alimentaires : 25 à 40 % du poids sec, ce qui fait des champignons l’une des sources les plus concentrées de fibres dans l’alimentation. La chitine (poly-N-acétylglucosamine) constitue la fibre dominante : c’est un polysaccharide structural des parois cellulaires fongiques, indigestible par les enzymes humaines mais partiellement fermentescible par le microbiote colique. Les bêta-glucanes, fibres solubles aux propriétés immunomodulatrices, représentent 3 à 15 % du poids sec selon les espèces.
- Valeur calorique : 20 à 35 kcal pour 100 g de champignon frais — parmi les aliments les plus légers qui existent. Cette densité calorique dérisoire, combinée à une forte densité nutritionnelle (protéines, fibres, vitamines, minéraux), fait des champignons un aliment à rapport nutriments/calories exceptionnellement favorable.
La saveur umami prononcée de nombreux champignons sauvages (cèpes, shiitake, morilles) provient de leur teneur élevée en acide glutamique libre (1 à 2 % du poids sec) et en nucléotides 5′-guanylate (GMP) et 5′-adénylate (AMP). Cette saveur umami naturelle permet de réduire la quantité de sel dans les préparations culinaires tout en maintenant une intensité gustative élevée — un atout pour la santé cardiovasculaire. La poudre de cèpes séchés est l’un des exhausteurs de goût naturels les plus puissants qui existent.
III. Vitamines du groupe B : un concentré méconnu
Les champignons sauvages sont une source exceptionnelle de vitamines du groupe B, souvent sous-estimée car les tables de composition nutritionnelle se réfèrent principalement au champignon de Paris cultivé, nettement moins riche que les espèces sauvages. Le profil vitaminique B des champignons forestiers rivalise avec celui du foie animal — traditionnellement considéré comme la meilleure source alimentaire de vitamines B.
Vitamine B₂ (riboflavine) : les champignons sauvages sont parmi les meilleures sources alimentaires connues. La chanterelle (Cantharellus cibarius) contient 1,2 à 2,0 mg/100 g sec (soit 0,2 à 0,3 mg/100 g frais), le cèpe 1,5 à 2,5 mg/100 g sec, la morille jusqu’à 3 mg/100 g sec. L’apport recommandé est de 1,3 mg/jour chez l’adulte ; 100 g de champignons sauvages séchés couvrent donc 100 à 200 % des besoins. La riboflavine est un cofacteur des flavoprotéines impliquées dans le métabolisme énergétique, la régénération du glutathion (antioxydant majeur) et le métabolisme du fer.
Vitamine B₃ (niacine) : les champignons sauvages en sont remarquablement riches. Le cèpe contient 50 à 80 mg de niacine pour 100 g de poids sec (5 à 10 mg/100 g frais), soit davantage que la plupart des viandes. La chanterelle atteint 40 à 60 mg/100 g sec. L’apport recommandé est de 16 mg/jour ; une portion de 150 g de cèpes frais couvre environ la moitié des besoins. La niacine (sous ses formes NAD et NADP) est le cofacteur de plus de 400 enzymes du métabolisme cellulaire.
Vitamine B₅ (acide pantothénique) : 10 à 20 mg/100 g sec dans la plupart des espèces sauvages, contre 2 mg/100 g sec pour le champignon de Paris. L’acide pantothénique est le précurseur du coenzyme A, molécule centrale du métabolisme des graisses, des glucides et des protéines.
Vitamine B₉ (folates) : les champignons sauvages contiennent des quantités significatives de folates naturels (5-méthyltétrahydrofolate), avec des valeurs allant de 30 à 100 µg/100 g sec selon les espèces. La morille et le shiitake sont parmi les plus riches. Les folates sont essentiels à la synthèse de l’ADN et à la méthylation — des processus critiques pour la prévention du déclin cognitif et la santé cardiovasculaire.
Vitamine B₁₂ (cobalamine) : question controversée. Certaines études ont détecté des traces de vitamine B₁₂ ou d’analogues dans des champignons sauvages (chanterelle, trompette-de-la-mort, shiitake), mais il n’est pas établi que ces formes soient biologiquement actives chez l’humain. La prudence s’impose : les champignons ne doivent pas être considérés comme une source fiable de B₁₂ pour les végétaliens. Les traces détectées proviennent probablement de bactéries associées au mycélium dans le sol plutôt que d’une synthèse fongique proprement dite.
La chaleur de cuisson détruit partiellement les vitamines B₂ et B₉ (perte de 20 à 40 % selon la durée et la température), tandis que la B₃ et la B₅ sont relativement thermostables. Le séchage préserve remarquablement les vitamines B grâce à l’activité de l’eau très basse qui stabilise les molécules — les champignons séchés conservent 80 à 90 % de leur teneur initiale en vitamines B même après un an de stockage en conditions sèches et sombres.
IV. Vitamine D₂ et exposition solaire
Les champignons sont les seuls aliments du règne non-animal capables de produire de la vitamine D en quantités nutritionnellement significatives. Leur ergostérol (provitamine D₂), abondant dans les membranes cellulaires fongiques, est converti en vitamine D₂ (ergocalciférol) sous l’action des rayons ultraviolets B — exactement comme le 7-déhydrocholestérol de notre peau est converti en vitamine D₃ par le soleil.
La teneur en vitamine D₂ des champignons dépend directement de leur exposition au soleil. Les champignons sauvages, qui poussent en forêt sous un couvert variable, contiennent généralement 1 à 30 µg de vitamine D₂ pour 100 g de poids frais, selon l’espèce et le degré d’ensoleillement de leur habitat. La chanterelle commune, qui affectionne les clairières lumineuses, est particulièrement riche : 5 à 15 µg/100 g frais, soit 200 à 600 UI — une quantité qui couvre 50 à 150 % de l’apport journalier recommandé (400 à 800 UI). La morille printanière, exposée au soleil dans les prairies et les vergers, atteint des valeurs comparables. Les espèces de sous-bois ombragé (trompette-de-la-mort, pied-de-mouton) en contiennent naturellement moins, mais restent supérieures aux champignons cultivés en obscurité.
L’astuce de l’exposition post-récolte : il est possible de multiplier considérablement la teneur en vitamine D₂ de n’importe quel champignon en l’exposant au soleil après la cueillette. L’ergostérol présent dans les cellules fongiques reste photoréactif même après la mort du champignon. Exposer des champignons frais (ou même séchés) au soleil direct pendant 30 à 60 minutes, lamelles ou pores tournés vers le haut (surface maximale exposée aux UV), peut multiplier leur teneur en vitamine D₂ par 10 à 100. Des champignons de Paris, pratiquement dépourvus de D₂ à la sortie des caves (0,1 µg/100 g), peuvent atteindre 10 à 40 µg/100 g après une heure d’exposition au soleil d’été. Cette conversion est stable : la vitamine D₂ produite se conserve pendant le séchage et le stockage.
La vitamine D₂ des champignons est-elle aussi efficace que la vitamine D₃ animale ? La question fait débat. La D₂ et la D₃ sont toutes deux hydroxylées en 25-OH-vitamine D dans le foie, mais la D₂ a une affinité légèrement moindre pour la protéine de transport (DBP) et une demi-vie plasmatique plus courte. À doses égales, la D₂ élèverait le taux de 25-OH-vitamine D d’environ 30 % de moins que la D₃. Cependant, dans le contexte d’un apport alimentaire régulier (et non d’une dose unique), cette différence est largement compensée par la constance de l’apport. Des études récentes montrent que la consommation régulière de champignons exposés au soleil maintient des taux de 25-OH-vitamine D comparables à ceux obtenus avec une supplémentation en D₃.
V. Minéraux et oligo-éléments : sélénium, germanium, potassium
Les champignons sont des bioaccumulateurs remarquables de minéraux et d’oligo-éléments, qu’ils concentrent à partir du substrat (sol, bois mort) grâce à leur réseau mycélien étendu et à leur métabolisme actif de chélation. Cette capacité est une arme à double tranchant : elle les enrichit en éléments bénéfiques (sélénium, germanium, potassium, zinc, cuivre) mais aussi potentiellement en métaux lourds (cadmium, mercure, plomb) si le sol est contaminé — raison pour laquelle le lieu de cueillette est un déterminant majeur de la qualité nutritionnelle.
Sélénium : les champignons sauvages sont les meilleures sources alimentaires terrestres de sélénium en Europe, où les sols sont généralement pauvres en cet oligo-élément (contrairement à l’Amérique du Nord). Le cèpe de Bordeaux contient 20 à 100 µg de sélénium pour 100 g de poids sec (2 à 15 µg/100 g frais) selon la richesse du sol. La chanterelle en contient 5 à 30 µg/100 g sec. Le sélénium est le cofacteur des glutathion-peroxydases (antioxydants intracellulaires majeurs), des désiodases (enzymes de conversion des hormones thyroïdiennes) et des thiorédoxine-réductases (protection de l’ADN). L’apport recommandé est de 55 à 70 µg/jour ; une carence subclinique est fréquente en Europe occidentale et contribue à l’hypothyroïdie, à l’immunodéficience et au stress oxydatif chronique.
Germanium organique : certains champignons médicinaux (reishi, shiitake, maïtaké) et quelques espèces sauvages européennes accumulent du germanium sous forme organique (bis-carboxyéthyl germanium sesquioxyde, Ge-132). Le germanium organique est un immunomodulateur documenté qui stimule la production d’interféron gamma et l’activité des cellules NK (Natural Killer). Les concentrations dans les champignons sauvages européens sont faibles (0,1 à 2 mg/100 g sec) mais contribuent à l’effet immunostimulant global de la consommation régulière de champignons forestiers.
Potassium : les champignons sauvages contiennent 300 à 500 mg de potassium pour 100 g frais — soit davantage que la banane (358 mg/100 g). Le potassium est un minéral alcalinisant qui réduit la calciurie (favorisant la rétention osseuse du calcium), abaisse la tension artérielle et protège contre les accidents vasculaires cérébraux. La richesse des champignons en potassium, combinée à leur très faible teneur en sodium (5 à 15 mg/100 g), leur confère un rapport Na/K extrêmement favorable.
Zinc : 3 à 8 mg/100 g sec dans les champignons sauvages (0,5 à 1,2 mg/100 g frais). Le zinc est indispensable à l’immunité adaptative, à la cicatrisation, à la synthèse du collagène et à la fonction enzymatique de plus de 300 métalloenzymes.
Cuivre : 2 à 10 mg/100 g sec, concentrations parfois très élevées dans certaines espèces (bolet bai, chanterelle). Le cuivre est le cofacteur de la superoxyde dismutase (SOD), de la céruléoplasmine (métabolisme du fer) et de la lysyl-oxydase (réticulation du collagène et de l’élastine).
Fer : 5 à 15 mg/100 g sec dans les champignons sauvages, principalement sous forme non héminique. La biodisponibilité est améliorée par la vitamine C (ajouter du jus de citron ou du persil aux préparations de champignons) et par la cuisson qui déstructure les parois cellulaires chitineuses emprisonnant le fer.
VI. Les bêta-glucanes : immunité et microbiote
Les bêta-glucanes fongiques sont des polysaccharides structuraux de la paroi cellulaire des champignons, composés de chaînes de D-glucose liées en β-1,3 avec des ramifications latérales en β-1,6. Cette structure tridimensionnelle spécifique — différente des bêta-glucanes de l’avoine (β-1,3/1,4) — est reconnue par les récepteurs de l’immunité innée (dectine-1, CR3, TLR2) présents à la surface des macrophages, des cellules dendritiques et des cellules NK. Cette reconnaissance déclenche une cascade d’activation immunitaire qui potentialise les défenses antivirales, antibactériennes et antitumorales sans provoquer d’inflammation excessive — un effet qualifié d’immunomodulation plutôt que d’immunostimulation.
Les bêta-glucanes fongiques activent les macrophages (augmentation de la phagocytose, production d’IL-1 et de TNF-α ciblé), stimulent la maturation des cellules dendritiques (présentation antigénique améliorée), augmentent l’activité cytotoxique des cellules NK de 40 à 300 % selon les études, et favorisent la production d’interféron gamma et d’immunoglobulines A sécrétoires (IgA, défense des muqueuses). Cet effet est documenté par des dizaines d’essais cliniques, principalement réalisés au Japon avec le lentinane (bêta-glucane du shiitake), le schizophyllane (bêta-glucane du schizophylle commun) et le maitaké D-fraction.
Les espèces sauvages européennes contiennent des bêta-glucanes en quantités significatives bien que moins étudiées que les espèces médicinales asiatiques. La chanterelle contient 3 à 6 % de bêta-glucanes sur poids sec, le cèpe 4 à 8 %, le pied-de-mouton (Hydnum repandum) 5 à 10 %, et la trompette-de-la-mort (Craterellus cornucopioides) 6 à 12 %. La cuisson libère partiellement les bêta-glucanes de la matrice chitineuse des parois cellulaires, les rendant plus accessibles à l’absorption intestinale et à la reconnaissance immunitaire au niveau des plaques de Peyer (tissu lymphoïde intestinal).
Au niveau du microbiote intestinal, les bêta-glucanes fongiques non absorbés dans l’intestin grêle atteignent le côlon où ils sont partiellement fermentés par des bactéries bénéfiques (Bifidobacterium, Lactobacillus, Bacteroides). Cette fermentation produit des acides gras à chaîne courte (butyrate, propionate, acétate) qui nourrissent les colonocytes, renforcent la barrière intestinale, réduisent l’inflammation colique et améliorent l’absorption des minéraux (calcium, magnésium). Les champignons sauvages exercent donc un effet prébiotique documenté, favorable à la diversité et à la stabilité du microbiote.
La consommation régulière de champignons (3 à 5 fois par semaine, au minimum 100 à 150 g par repas) est associée dans les études épidémiologiques asiatiques à une réduction significative du risque d’infections respiratoires, à une meilleure réponse vaccinale chez les personnes âgées, et à une réduction de 17 % du risque de cancer tous types confondus (méta-analyse de 2021, 17 études observationnelles, 19 500 cas de cancer). Ces données observationnelles sont cohérentes avec les mécanismes immunomodulateurs des bêta-glucanes décrits ci-dessus.
VII. La chanterelle commune, trésor des sous-bois
La chanterelle commune (Cantharellus cibarius Fr., Cantharellacées) est le champignon sauvage le plus cueilli en Europe. Son chapeau en entonnoir, de 3 à 10 cm de diamètre, jaune d’œuf à jaune orangé, à marge ondulée et irrégulière, ses plis fourchus (et non de vraies lamelles) décurrents sur un pied plein de même couleur, et son odeur caractéristique d’abricot en font un champignon facilement identifiable, même pour le débutant. Elle pousse de juin à novembre dans les forêts de feuillus et de conifères, en symbiose mycorhizienne avec les chênes, les hêtres, les bouleaux et les épicéas, sur sols acides à neutres, souvent en groupes dans la mousse.
Profil nutritionnel remarquable : la chanterelle se distingue par sa teneur exceptionnelle en bêta-carotène (1 500 à 5 000 µg/100 g frais — la seule espèce européenne qui en contient autant, d’où sa couleur jaune-orangé), en vitamine D₂ (5 à 15 µg/100 g frais dans les stations ensoleillées), en riboflavine (0,2 à 0,3 mg/100 g frais), en potassium (500 mg/100 g frais), en fer (3 à 5 mg/100 g sec) et en bêta-glucanes (5 à 6 % du poids sec). Sa teneur en bêta-carotène — précurseur de la vitamine A — est unique dans le monde fongique et en fait un aliment de choix pour la santé oculaire et cutanée.
La chanterelle contient également de l’ergothionéine, un acide aminé antioxydant unique que l’organisme humain ne synthétise pas et qu’il absorbe via un transporteur spécifique (OCTN1). L’ergothionéine s’accumule préférentiellement dans les tissus soumis au stress oxydatif (globules rouges, cristallin, moelle osseuse, foie, reins) et protège l’ADN mitochondrial contre les dommages radicalaires. Des taux sanguins bas d’ergothionéine sont associés dans les études longitudinales à un risque accru de déclin cognitif, de maladie de Parkinson et de mortalité cardiovasculaire.
La chanterelle résiste remarquablement aux parasites et aux moisissures grâce à des composés antimicrobiens naturels, ce qui explique qu’elle soit rarement véreuse (contrairement aux cèpes) et qu’elle se conserve mieux que la plupart des autres champignons sauvages. Cette résistance est liée à sa teneur en acide citramaléique et en composés phénoliques antifongiques.
Préparation optimale : la chanterelle gagne à être cuite à feu vif dans un peu de beurre ou d’huile d’olive pour évaporer son eau (elle en contient 90 %), ce qui concentre ses saveurs et ses nutriments. Ne pas la laver sous l’eau courante (elle l’absorbe comme une éponge) : la brosser ou la frotter avec un linge humide. La cuisson à la poêle pendant 8 à 12 minutes à feu moyen-vif libère les nutriments des parois chitineuses et détruit le champignon parasite Hypomyces lateritius, parfois présent à la surface. La chanterelle se sèche mal (elle devient coriace) mais se congèle correctement après une brève sautée préalable.
VIII. Le cèpe de Bordeaux, roi des forêts
Le cèpe de Bordeaux (Boletus edulis Bull., Bolétacées) est unanimement considéré comme le roi des champignons sauvages européens, tant pour ses qualités gustatives que pour sa valeur nutritionnelle. Son chapeau hémisphérique puis convexe, de 7 à 25 cm de diamètre, brun-noisette à brun foncé, sa chair blanche et ferme qui ne bleuit pas à la coupe, ses tubes blancs puis jaune-verdâtre (et non des lamelles), et son pied massif en forme de massue orné d’un réseau blanc caractéristique, en font un champignon majestueux des forêts tempérées. Il pousse de juillet à novembre sous les chênes, les hêtres, les châtaigniers et les épicéas, en symbiose mycorhizienne étroite.
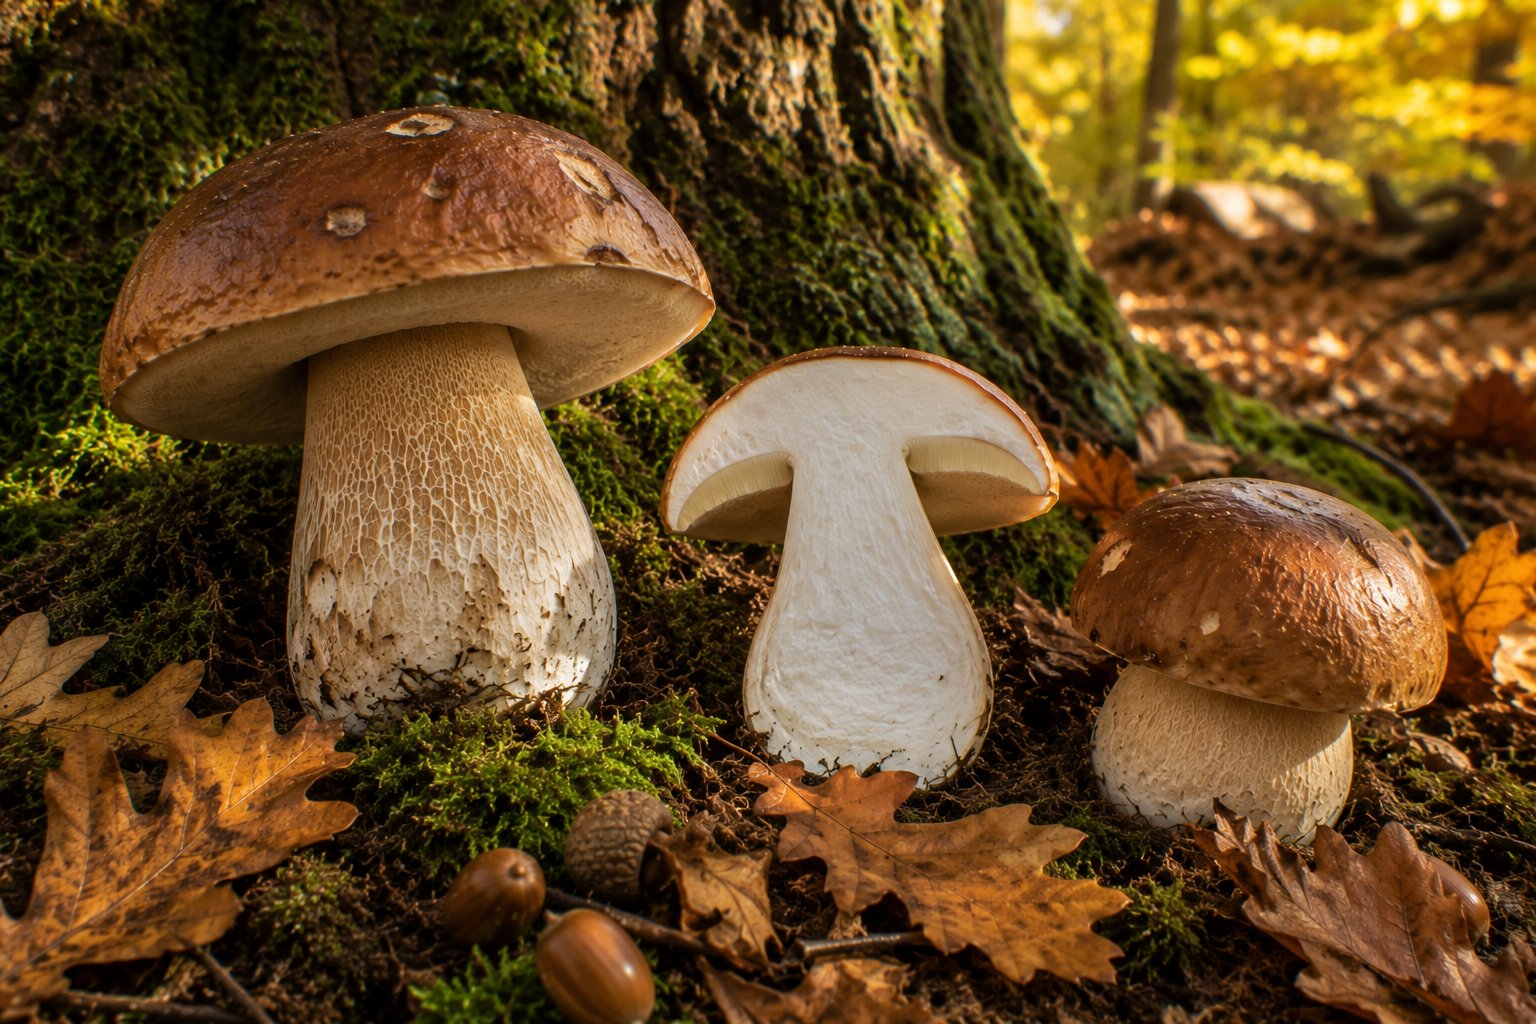
Profil nutritionnel d’exception : le cèpe détient le record de teneur protéique parmi les champignons sauvages européens courants : 30 à 35 % de protéines sur poids sec, avec un profil en acides aminés essentiels quasi complet (seule la méthionine est légèrement limitante). Sa teneur en niacine (vitamine B₃) atteint 50 à 80 mg/100 g sec — comparable à celle du foie de veau. Il est riche en sélénium (20 à 100 µg/100 g sec selon les sols), en ergothionéine (2 à 5 mg/100 g frais), en potassium (400 à 500 mg/100 g frais) et en bêta-glucanes (5 à 8 % du poids sec).
Le cèpe contient une concentration remarquable d’acides aminés libres, en particulier d’acide glutamique (1,5 à 2 g/100 g sec) et de 5′-guanylate (GMP), ce qui explique sa saveur umami intense et en fait un exhausteur de goût naturel puissant. La poudre de cèpes séchés — obtenue en broyant des cèpes déshydratés au moulin à café — est un condiment nutritionnel de premier ordre : une cuillère à café (3 g) apporte environ 1 g de protéines, 200 µg de riboflavine, 2 mg de niacine et un arôme forestier profond à n’importe quel plat (risotto, sauce, soupe, omelette).
Le séchage est le mode de conservation idéal du cèpe. Coupé en tranches de 3 à 5 mm d’épaisseur, séché au déshydrateur (40-50 °C pendant 6 à 8 heures) ou au soleil en été (exposition aux UV qui augmente simultanément la teneur en vitamine D₂), le cèpe séché concentre tous ses nutriments par un facteur 10 (puisque 90 % de son poids est de l’eau). Il se conserve un à deux ans dans un bocal hermétique en verre à l’abri de la lumière. Avant utilisation, le faire tremper 30 minutes dans de l’eau tiède — l’eau de trempage, riche en saveur umami et en nutriments solubles (vitamines B, potassium), doit être utilisée comme bouillon et jamais jetée.
La chair du cèpe est malheureusement très appréciée des larves de diptères (mouches du genre Mycetophila), qui pondent dans les tubes. Les cèpes véreux — reconnaissables à la chair jaunâtre parsemée de petits tunnels bruns — ont une valeur nutritionnelle légèrement réduite mais restent comestibles ; cependant, les spécimens fortement parasités (chair molle, brunâtre, odeur aigrelette) doivent être écartés. Cueillir les cèpes jeunes et fermes (chapeau encore convexe, tubes blancs) garantit la meilleure qualité gustative et nutritionnelle.
IX. La morille, diamant du printemps
La morille (Morchella esculenta (L.) Pers. et espèces apparentées, Morchellacées) est le champignon printanier par excellence des forêts tempérées, apparaissant de mars à mai dans les vergers, les frênaies, les peupleraies et les terrains remués. Son chapeau alvéolé en forme de ruche ou d’éponge, de couleur crème à brun-jaune, creusé d’alvéoles irrégulières bordées de côtes, et son pied creux blanc-crème, en font un champignon absolument unique, impossible à confondre avec une autre espèce comestible — à condition de ne pas la confondre avec le gyromitre (Gyromitra esculenta), toxique, dont le chapeau est cérébriforme (en forme de cerveau) et non alvéolé.
Profil nutritionnel : la morille est riche en protéines (25 à 30 % du poids sec), en fibres (28 à 32 % du poids sec), en potassium (400 mg/100 g frais), en fer (12 mg/100 g sec), en zinc (8 mg/100 g sec) et en vitamine D₂ (5 à 15 µg/100 g frais grâce à son habitat ouvert et ensoleillé). Sa teneur en folates est parmi les plus élevées du règne fongique (80 à 100 µg/100 g sec). Elle contient également des polysaccharides immunostimulants (galactomannanes et bêta-glucanes) dont l’activité anti-tumorale a été documentée in vitro.
Précaution impérative : la morille est toxique crue. Elle contient de l’hydrazine (monométhylhydrazine dans le cas du gyromitre, et probablement des traces de composés analogues dans la morille vraie) et des hémolysines thermolabiles. La cuisson complète (minimum 15 à 20 minutes à cœur) détruit ces toxines. Ne jamais consommer de morille crue, al dente ou insuffisamment cuite — les intoxications aux morilles « mal cuites » se manifestent par des troubles digestifs sévères et parfois neurologiques. Le séchage complet (suivi d’une réhydratation et d’une cuisson) est également sûr.
Le séchage sublime la morille : il concentre son arôme complexe (notes de sous-bois, de noisette grillée et de miel) et la rend disponible toute l’année. Les morilles séchées sont un ingrédient gastronomique de haute valeur, se négociant entre 300 et 800 euros le kilogramme — ce qui en fait l’un des aliments les plus chers au monde, juste derrière la truffe et le safran. Leur valeur nutritionnelle séchée est exceptionnelle : 100 g de morilles sèches apportent 25 g de protéines, 30 g de fibres, 120 mg de fer, 800 µg de folates et des quantités significatives de toutes les vitamines B.
X. Trompettes-de-la-mort et pieds-de-mouton
La trompette-de-la-mort (Craterellus cornucopioides (L.) Pers., Cantharellacées) est un champignon d’apparence modeste — en forme d’entonnoir noir à gris-brun, de 3 à 8 cm de haut, à chair fine et élastique, sans lamelles ni plis distincts sur sa face externe lisse et grise — mais dont la valeur nutritionnelle et gastronomique est inversement proportionnelle à son aspect lugubre. Son nom populaire est trompeur : c’est l’un des champignons sauvages les plus sûrs (aucun sosie toxique crédible) et les plus savoureux, avec un parfum délicat de truffe noire qui s’intensifie au séchage.
Profil nutritionnel de la trompette-de-la-mort : elle se distingue par une teneur exceptionnelle en bêta-glucanes (6 à 12 % du poids sec — la plus élevée parmi les espèces sauvages européennes courantes), une richesse remarquable en fer (15 à 25 mg/100 g sec) et en zinc (6 à 10 mg/100 g sec), et une teneur significative en ergothionéine et en polysaccharides immunostimulants. Sa chair fine sèche rapidement à l’air libre (même sans déshydrateur) et, réduite en poudre, constitue un condiment noir parfumé extraordinaire — la « truffe du pauvre » — qui enrichit nutritionnellement et gustativement sauces, risottos et omelettes.
Le pied-de-mouton (Hydnum repandum L., Hydnacées) est reconnaissable à sa face inférieure hérissée d’aiguillons pendants (hydnes) crème à ocre clair — et non de lamelles ou de tubes. Son chapeau convexe puis aplani, de 5 à 15 cm, crème à ocre-orangé, irrégulier, et son pied excentré trapu, en font un champignon sans confusion possible une fois qu’on connaît le critère des aiguillons. Il pousse d’août à novembre dans les forêts de feuillus et de conifères, souvent en groupes dans la mousse.
Profil nutritionnel du pied-de-mouton : protéines 22 à 28 % du poids sec, bêta-glucanes 5 à 10 %, potassium 450 mg/100 g frais, sélénium 5 à 15 µg/100 g sec, vitamine D₂ variable selon l’ensoleillement. Sa chair ferme et croquante (rappelant la noix fraîche quand il est jeune) contient des composés amers (répanduline) qui diminuent avec la cuisson prolongée — les jeunes spécimens sont les meilleurs car exempts d’amertume.
Ces deux espèces ont en commun d’être parmi les champignons sauvages les plus sûrs pour le cueilleur débutant : ni la trompette-de-la-mort ni le pied-de-mouton ne possèdent de sosie toxique dangereux. Elles sont également parmi les plus abondantes en forêt tempérée, poussant souvent en colonies denses de dizaines voire de centaines d’individus. Pour une initiation à la cueillette de champignons sauvages à visée nutritionnelle, ce sont les deux espèces idéales par lesquelles commencer.
XI. La coulemelle et les grands lépiotes
La coulemelle ou lépiote élevée (Macrolepiota procera (Scop.) Singer, Agaricacées) est le plus grand champignon à lamelles des prairies et lisières européennes. Son chapeau, d’abord ovoïde puis étalé en parasol, peut atteindre 25 à 35 cm de diamètre chez les spécimens adultes, avec une surface brun clair couverte de mèches concentriques plus foncées sur un fond crème, et un mamelon central proéminent. Son pied élancé (20 à 40 cm de haut), chiné de zigzags bruns sur fond crème, porte un anneau double coulissant caractéristique. Elle pousse de juillet à novembre dans les prairies, les clairières, les bords de chemins et les lisières de forêts, souvent en cercles ou en lignes.
Profil nutritionnel : la coulemelle contient 20 à 25 % de protéines sur poids sec, avec une digestibilité particulièrement élevée (75-85 %) grâce à la finesse de ses parois cellulaires. Sa teneur en fibres atteint 30 à 35 % du poids sec (principalement chitine et bêta-glucanes). Elle est riche en potassium (500 mg/100 g frais), en phosphore (120 mg/100 g frais) et en vitamines B₂ et B₃. Son chapeau, finement charnu, se prête à la cuisson comme une escalope végétale — pané et doré à la poêle, il offre une texture croustillante à l’extérieur et fondante à l’intérieur, avec une saveur de noisette subtile.
Précaution critique : la confusion entre la coulemelle et les petites lépiotes toxiques (genre Lepiota sensu stricto : L. brunneoincarnata, L. helveola, L. josserandii) peut être mortelle. Ces petites lépiotes, qui ne dépassent jamais 10 à 12 cm de chapeau, contiennent des amatoxines (les mêmes poisons que l’amanite phalloïde) et provoquent une hépatite fulminante souvent fatale. La règle de sécurité absolue est simple : ne jamais ramasser une lépiote dont le chapeau mesure moins de 12 cm de diamètre. Au-delà de cette taille, aucune espèce toxique n’existe en Europe. Cette règle empirique, enseignée dans toutes les sociétés mycologiques, élimine tout risque de confusion fatale.
Le pied de la coulemelle est coriace et fibreux — il ne se mange pas tel quel mais, séché et réduit en poudre, il constitue un excellent exhausteur de goût riche en fibres et en minéraux. Le chapeau, en revanche, est délicieux préparé en « escalope de coulemelle » : retirer le pied, enduire le chapeau d’un mélange œuf battu + chapelure (ou farine de pois chiche pour une version sans gluten), et dorer à la poêle dans de l’huile d’olive pendant 3 à 4 minutes de chaque côté. La cuisson doit être complète (ne jamais consommer cru) car la coulemelle contient des composés hémolytiques thermolabiles.
XII. Champignons et protection hépatique
Le foie est l’organe central du métabolisme, de la détoxification et de la synthèse protéique. Son exposition constante aux xénobiotiques (polluants, médicaments, alcool, additifs alimentaires) le soumet à un stress oxydatif chronique qui accélère son vieillissement. Plusieurs champignons, tant sauvages que cultivés, exercent une protection hépatique documentée par des mécanismes complémentaires.
Le chardon-Marie n’est pas un champignon — mais il mérite d’être mentionné ici car la silymarine qu’il contient est souvent associée aux champignons hépatoprotecteurs dans les formules naturopathiques. La véritable hépatoprotection fongique repose sur d’autres molécules.
L’ergothionéine, présente dans tous les champignons sauvages mais particulièrement concentrée dans les cèpes (2 à 5 mg/100 g frais), les pleurotes (2 à 3 mg/100 g frais) et les shiitake (1 à 3 mg/100 g frais), s’accumule préférentiellement dans le foie via le transporteur OCTN1. Elle protège les hépatocytes contre le stress oxydatif induit par le paracétamol, l’éthanol et les métaux lourds, en neutralisant les espèces réactives de l’oxygène et en maintenant les réserves de glutathion réduit (GSH). Des études animales montrent que la supplémentation en ergothionéine réduit significativement les marqueurs de fibrose hépatique (TGF-β, collagène de type I) et les transaminases (ALAT, ASAT) dans des modèles de stéatose non alcoolique.
Les triterpènes du reishi (Ganoderma lucidum) — acides ganodériques — exercent une protection hépatique puissante par inhibition de la bêta-glucuronidase (enzyme qui réactive les toxines conjuguées par le foie), stimulation de la régénération hépatocytaire et modulation de la fibrose via l’inhibition des cellules stellaires hépatiques. Le reishi n’est pas un champignon de cueillette (il est ligneux et immangeable cru) mais il se trouve à l’état sauvage sur les souches de chênes et de châtaigniers en Europe et se consomme en décoction prolongée (2 heures à feu doux) ou en extrait standardisé.
Les polysaccharides du shiitake et du maïtaké protègent le foie par stimulation de l’immunité innée hépatique (cellules de Kupffer, cellules NK résidentes) et par amélioration du flux biliaire. Bien que ces espèces soient d’origine asiatique, elles se cultivent facilement sur bûches de chêne en Europe tempérée et constituent un complément accessible aux champignons sauvages.
La consommation régulière de champignons sauvages variés (3 à 5 fois par semaine) contribue à un apport soutenu en ergothionéine, en glutathion, en sélénium et en polysaccharides immunomodulateurs — un cocktail hépatoprotecteur naturel particulièrement pertinent pour les personnes exposées à des charges toxiques chroniques (médicaments hépatotoxiques, environnement pollué, consommation modérée d’alcool).
XIII. Champignons et santé cognitive
Le lien entre consommation de champignons et santé cognitive est l’un des domaines les plus prometteurs de la recherche mycologique actuelle. Plusieurs études épidémiologiques de grande envergure ont mis en évidence une association significative entre la fréquence de consommation de champignons et la réduction du risque de déclin cognitif léger (MCI, Mild Cognitive Impairment) — le stade précurseur de la démence.
L’étude de Singapour (Diet and Healthy Aging Study, 2019, 663 participants de plus de 60 ans suivis pendant 6 ans) a montré que les personnes consommant des champignons deux fois ou plus par semaine présentent un risque de MCI réduit de 57 % par rapport à celles en consommant moins d’une fois par semaine — après ajustement pour l’âge, le sexe, l’éducation, le tabagisme, l’alcool, l’activité physique et les comorbidités. Cette réduction de risque, considérable, est attribuée par les auteurs à l’ergothionéine et aux autres composés neuroprotecteurs des champignons.
L’ergothionéine et le cerveau : cet acide aminé soufré, que l’organisme ne synthétise pas et ne peut obtenir que de l’alimentation (principalement les champignons), traverse la barrière hémato-encéphalique via le transporteur OCTN1 et s’accumule dans les neurones et les cellules gliales. Il protège les mitochondries neuronales contre le stress oxydatif (principal mécanisme de la neurodégénérescence), maintient les réserves de glutathion cérébral, et inhibe la formation de plaques amyloïdes in vitro. Des taux plasmatiques bas d’ergothionéine sont associés de manière prospective à un risque accru de maladie de Parkinson et de déclin cognitif — suggérant que l’ergothionéine est un biomarqueur et potentiellement un facteur protecteur modifiable.
L’héricénone et l’érinacine sont deux familles de composés uniques au champignon crinière-de-lion (Hericium erinaceus), un champignon sauvage européen (rare) qui pousse sur les troncs de feuillus blessés (hêtre, chêne, noyer). Ces molécules stimulent la synthèse du Nerve Growth Factor (NGF) — facteur de croissance indispensable à la survie, la différenciation et la régénération des neurones cholinergiques, dont la dégénérescence est la signature de la maladie d’Alzheimer. Plusieurs essais cliniques japonais ont montré qu’un extrait d’Hericium erinaceus (3 g/jour pendant 16 semaines) améliore significativement les scores cognitifs chez des personnes âgées présentant un MCI, avec une régression après l’arrêt — suggérant un effet neurotrophique direct plutôt qu’un simple antioxydant.
Hericium erinaceus peut être cultivé sur substrat de sciure de feuillus et est disponible en France sous forme de compléments alimentaires (extraits standardisés en héricénones) ou de mycélium sur grain. À l’état sauvage, il est reconnaissable à ses longs aiguillons blancs pendants formant une masse compacte rappelant une crinière de lion ou un pompon — un champignon spectaculaire, protégé dans certaines régions, qu’il ne faut cueillir que si l’on est absolument certain de l’identification.
Au-delà de ces composés spécifiques, la consommation régulière de champignons sauvages variés contribue à la santé cognitive par l’apport cumulé de vitamines B (en particulier B₃, B₅, B₉ — toutes impliquées dans le métabolisme des neurotransmetteurs et la méthylation de l’ADN), de sélénium (cofacteur des sélénoprotéines neuroprotectrices), de potassium (régulation de l’excitabilité neuronale) et de bêta-glucanes (dont l’effet anti-inflammatoire systémique réduit la neuroinflammation chronique de bas grade associée au vieillissement cérébral).
XIV. Champignons et régulation métabolique
Les champignons exercent des effets favorables sur plusieurs paramètres du syndrome métabolique — glycémie, lipidémie, poids corporel, tension artérielle — par des mécanismes multiples qui en font un aliment fonctionnel de premier ordre pour les personnes à risque cardiovasculaire et diabétique.
Régulation glycémique : les champignons ont un index glycémique quasi nul (IG estimé à 10-15) et une charge glycémique négligeable, en raison de l’absence d’amidon et de la prédominance de fibres non digestibles (chitine, bêta-glucanes). Mais leur effet sur la glycémie va au-delà de cette simple neutralité : les bêta-glucanes fongiques ralentissent la vidange gastrique et forment un gel visqueux dans l’intestin qui ralentit l’absorption du glucose des autres aliments du repas. Les polysaccharides du maïtaké (Grifola frondosa) contiennent une fraction alpha-glucane (fraction SX) qui augmente la sensibilité à l’insuline des récepteurs périphériques — un effet documenté chez des patients diabétiques de type 2 dans un essai clinique ouvert.
Régulation lipidique : plusieurs espèces de champignons contiennent de la lovastatine — la première statine découverte, isolée originellement d’Aspergillus terreus mais présente en petites quantités dans les pleurotes (Pleurotus ostreatus : 50 à 250 mg/kg de poids sec) et certaines autres espèces cultivées. Aux doses alimentaires, l’effet hypocholestérolémiant est modeste mais mesurable : une consommation quotidienne de 100 à 150 g de pleurotes pendant 4 semaines réduit le cholestérol LDL de 5 à 10 % dans les études cliniques. Les bêta-glucanes fongiques réduisent également l’absorption intestinale du cholestérol par un mécanisme similaire à celui des fibres solubles de l’avoine.
Gestion du poids : la substitution de la viande par des champignons dans les repas (stratégie « mushroom for meat ») est une approche validée pour la réduction calorique sans sacrifice gustatif. Les champignons apportent la même sensation de satiété que la viande (grâce à leurs protéines, leurs fibres et leur texture) pour une fraction des calories (30 kcal/100 g contre 250 kcal/100 g pour la viande hachée). Un essai clinique randomisé (Johns Hopkins, 2013) a montré que le remplacement de la viande par des champignons dans un repas quotidien pendant un an entraîne une perte de poids significative (- 3,5 kg en moyenne), une réduction du tour de taille et une amélioration du bilan lipidique, sans sensation de privation.
Tension artérielle : le rapport potassium/sodium extrêmement élevé des champignons (30:1 à 50:1, contre 1:3 dans l’alimentation occidentale moyenne) contribue à la régulation tensionnelle. Les peptides inhibiteurs de l’enzyme de conversion de l’angiotensine (IECA), identifiés dans plusieurs espèces fongiques (pleurote, shiitake, champignon de Paris), exercent un effet antihypertenseur modeste mais additif à celui du potassium.
XV. Cueillette responsable et identification sûre
La cueillette de champignons sauvages est un privilège et une responsabilité. C’est un geste ancestral qui reconnecte l’humain à son écosystème forestier, mais qui exige un apprentissage rigoureux de l’identification et une éthique de prélèvement respectueuse du milieu.
Règles fondamentales d’identification :
La première règle, absolue et non négociable, est de ne jamais consommer un champignon dont l’identification n’est pas certaine à 100 %. Le doute, aussi minime soit-il, doit conduire à laisser le champignon sur place. Aucune valeur nutritionnelle ne justifie un risque d’intoxication — certaines espèces (amanite phalloïde, petites lépiotes, cortinaires) sont mortelles à très faible dose et aucun traitement curatif n’existe.
La deuxième règle est de ne jamais se fier à un seul critère d’identification. L’identification mycologique repose sur un faisceau de caractères concordants : forme du chapeau, type d’hyménium (lamelles, tubes, aiguillons, plis), couleur de la sporée, couleur et consistance de la chair, réaction à la coupe (bleuissement, rougissement, jaunissement), odeur, habitat, période de l’année, et association avec un arbre spécifique. Un seul de ces critères peut être trompeur ; leur convergence est fiable.
La troisième règle est d’apprendre sur le terrain, avec un mycologue expérimenté ou dans le cadre d’une société mycologique locale, et non uniquement dans les livres ou sur internet. Les photographies sont trompeuses (variations de couleur selon l’éclairage et l’âge du spécimen), et les descriptions textuelles ne remplacent pas l’expérience sensorielle directe (toucher de la chair, odeur, aspect des lamelles à la loupe).
Espèces mortelles à connaître impérativement :
- Amanite phalloïde (Amanita phalloides) : chapeau vert-olive à vert-jaune, lamelles blanches, anneau membraneux, volve en sac à la base du pied. Contient des amatoxines (α-amanitine) qui détruisent le foie en 48-72 heures. Responsable de 90 % des décès par intoxication aux champignons en Europe.
- Amanite printanière (Amanita verna) et amanite vireuse (Amanita virosa) : entièrement blanches, avec anneau et volve. Mêmes amatoxines que la phalloïde. Confusion possible avec le rosé des prés (Agaricus campestris) chez les débutants — le rosé a des lamelles ROSES puis BRUNES, jamais blanches.
- Cortinaire couleur de rocou (Cortinarius orellanus) : chapeau brun-orangé, lamelles orangées, cortine (voile arachnéen) brunâtre. Contient de l’orellanine, toxine rénale à action retardée (3 à 17 jours) provoquant une insuffisance rénale irréversible.
- Petites lépiotes (Lepiota spp.) : chapeau inférieur à 10-12 cm, écailles brunes sur fond clair. Amatoxines. Ne jamais ramasser de lépiote mesurant moins de 12 cm de chapeau.
Éthique de cueillette :
- Ne prélever que ce que l’on va consommer — pas de cueillette spéculative ou de stockage excessif.
- Laisser les spécimens trop jeunes (identification difficile) et trop vieux (sporulation en cours, rôle écologique de recyclage).
- Couper les champignons au couteau à la base du pied plutôt que de les arracher (préserve le mycélium et la volve utile à l’identification).
- Utiliser un panier en osier ou un filet (pas de sac plastique : les champignons s’y écrasent et fermentent).
- Respecter les réglementations locales (quantités autorisées, espèces protégées, propriétés privées).
- Ne pas cueillir en bord de route (pollution aux métaux lourds), sur d’anciennes décharges, près d’usines ou sur des terrains traités aux pesticides.
XVI. Conservation : séchage, congélation, lactofermentation
La saison des champignons est brève — quelques semaines en automne pour la plupart des espèces — mais leur valeur nutritionnelle peut être préservée toute l’année grâce à des méthodes de conservation appropriées. Le choix de la méthode dépend de l’espèce et de l’usage prévu.
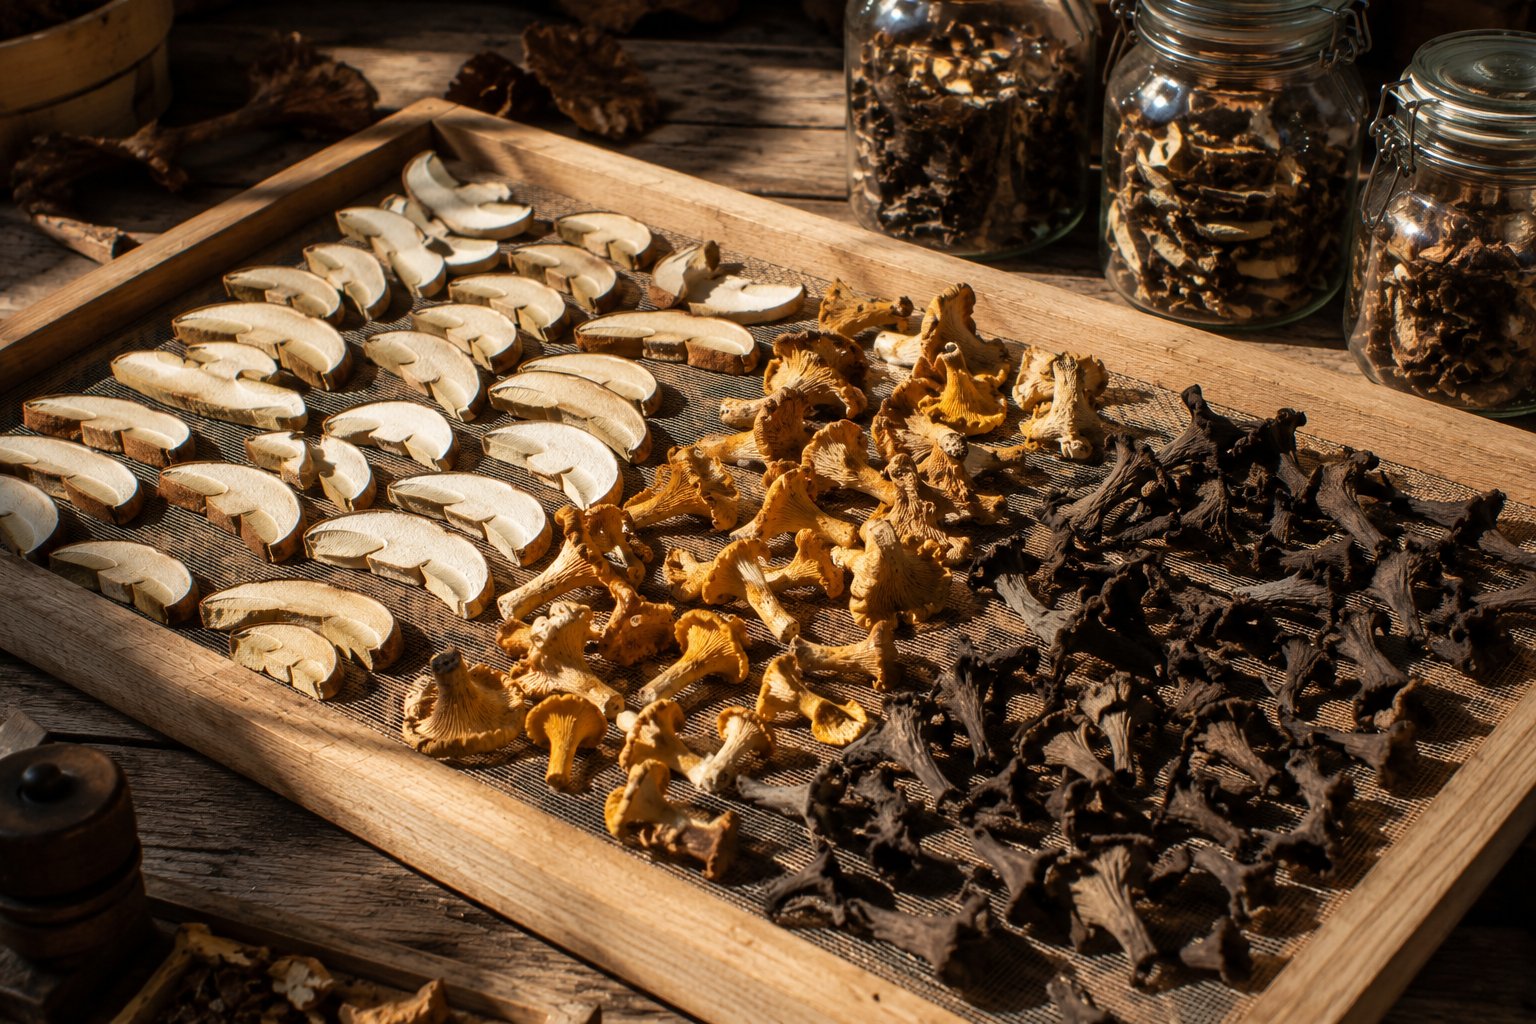
Le séchage : méthode reine. Le séchage est la méthode de conservation la plus ancienne, la plus simple et la plus favorable sur le plan nutritionnel pour la majorité des champignons sauvages. En éliminant 90 % de l’eau, il concentre par un facteur 10 les protéines, les minéraux, les vitamines B (stables à la chaleur modérée), les bêta-glucanes et les composés aromatiques. Le séchage augmente paradoxalement la biodisponibilité de certains nutriments en fragilisant les parois cellulaires chitineuses qui emprisonnent les molécules intracellulaires.
Méthode : couper les champignons en tranches de 3 à 5 mm (les petits spécimens — chanterelles, trompettes — peuvent être séchés entiers). Sécher au déshydrateur à 40-50 °C pendant 6 à 12 heures, ou au four à 50 °C porte entrouverte pendant 4 à 6 heures, ou au soleil direct en été (avantage : conversion simultanée de l’ergostérol en vitamine D₂). Les champignons sont suffisamment secs quand ils cassent net sans se plier. Stocker en bocaux hermétiques en verre, à l’abri de la lumière, avec un sachet de silice si nécessaire. Durée de conservation : 1 à 2 ans sans perte significative de qualité.
Espèces qui se sèchent particulièrement bien : cèpes (excellent), morilles (sublime), trompettes-de-la-mort (superbe, concentre l’arôme de truffe), shiitake, pieds-de-mouton. Espèces qui se sèchent mal : chanterelles (deviennent coriaces et perdent en saveur), agarics (deviennent insipides), coprins (trop fragiles).
La congélation. La congélation préserve l’intégralité du profil nutritionnel mais altère la texture (les cristaux de glace percent les membranes cellulaires, rendant les champignons décongelés mous et aqueux). Deux approches :
- Congélation après sautée : faire revenir les champignons 5 à 8 minutes à feu vif dans un peu d’huile pour évaporer l’excès d’eau, refroidir rapidement, puis congeler en portions dans des sacs hermétiques. Durée : 6 à 12 mois. C’est la méthode de choix pour les chanterelles, les girolles et les champignons de Paris.
- Congélation crue : possible pour les champignons fermes (cèpes jeunes, pieds-de-mouton), coupés en tranches et étalés sur une plaque avant conditionnement en sac. Utiliser directement congelés en cuisson, sans décongeler.
La lactofermentation. Méthode ancestrale d’Europe de l’Est (Russie, Pologne, pays baltes), la lactofermentation des champignons les conserve tout en les enrichissant en probiotiques (Lactobacillus), en vitamines B₁₂ (produite par les bactéries lactiques), en acides organiques et en enzymes digestives. Méthode : cuire les champignons 10 minutes dans l’eau salée (pour éliminer les toxines thermolabiles éventuelles), égoutter, placer en bocaux avec 2 à 3 % de sel (20 à 30 g par litre), des aromates (ail, aneth, laurier, grains de poivre), et couvrir de saumure (eau + 3 % de sel). Laisser fermenter 5 à 7 jours à température ambiante puis conserver au frais. Les champignons lactofermentés se conservent plusieurs mois au réfrigérateur et constituent un condiment probiotique remarquable.
La poudre de champignons : les champignons séchés, broyés au moulin à café ou au blender puissant, donnent une poudre concentrée en nutriments qui se conserve un à deux ans en bocal hermétique. C’est la forme la plus pratique pour un apport quotidien : 1 à 2 cuillères à café dans une soupe, un risotto, une sauce, une omelette ou un smoothie apportent l’équivalent nutritionnel de 10 à 20 g de champignons frais. Un mélange de poudres (cèpe + trompette + shiitake) constitue un exhausteur de goût umami naturel et un complément nutritionnel multifonctionnel de premier ordre.
XVII. Modes de cuisson et optimisation nutritionnelle
La cuisson des champignons n’est pas seulement une question de goût — c’est un déterminant majeur de leur biodisponibilité nutritionnelle. Les parois cellulaires des champignons sont constituées de chitine (contrairement à la cellulose des plantes), un polymère extrêmement résistant aux enzymes digestives humaines. Sans cuisson, une grande partie des nutriments intracellulaires — protéines, vitamines, minéraux — reste emprisonnée dans cette cage chitineuse et traverse le tube digestif sans être absorbée. La cuisson déstructure la chitine, libère les nutriments et améliore la digestibilité protéique de 40-60 % (champignon cru) à 70-85 % (champignon cuit).
La sautée à feu vif (5-10 minutes) : méthode classique et polyvalente. L’huile d’olive ou le beurre véhiculent les composés liposolubles (ergostérol, ergothionéine, bêta-carotène de la chanterelle) et la chaleur élevée provoque la réaction de Maillard qui développe les arômes. Ne pas surcharger la poêle (les champignons doivent rôtir, pas bouillir dans leur eau). Saler en fin de cuisson pour limiter l’exsudation. Cette méthode préserve bien les vitamines B (perte de 15-25 %) et maximise les arômes.
La cuisson au bouillon ou à la soupe (10-20 minutes) : les vitamines B et les minéraux hydrosolubles passent dans le liquide de cuisson — il faut donc consommer le bouillon pour bénéficier de l’intégralité du profil nutritionnel. C’est la méthode idéale pour extraire les bêta-glucanes (solubles dans l’eau chaude) et les polysaccharides immunostimulants. Un bouillon de champignons sauvages séchés, mijoté 20 minutes, est une boisson immunostimulante et reminéralisante remarquable.
La cuisson au four (grillé, rôti, 15-25 minutes à 180°C) : excellente pour les gros spécimens (chapeau de coulemelle, portobello, chapeau de cèpe entier). La chaleur sèche du four caramélise les sucres de surface et intensifie la saveur umami. Les pertes vitaminiques sont modérées (20-30 % des vitamines B, conservation totale des minéraux).
Le micro-ondes (2-4 minutes) : méthode peu orthodoxe mais nutritionnellement intéressante. Une étude espagnole (2017, International Journal of Food Sciences and Nutrition) a comparé quatre méthodes de cuisson des champignons et conclu que le micro-ondes préserve le mieux les antioxydants (ergothionéine, polyphénols) et les bêta-glucanes, suivi par le grillage, la friture et l’ébullition (la pire méthode pour les antioxydants).
Ne jamais manger cru : au-delà de la question de biodisponibilité, de nombreux champignons contiennent des composés toxiques thermolabiles (agaristatine du champignon de Paris, hémolysines de l’amanite rougissante, hydrazines de la morille) qui sont détruits par une cuisson complète de minimum 15 minutes. La mode des champignons crus en salade est nutritionnellement sous-optimale et potentiellement risquée.
Associations favorisant l’absorption :
- Champignons + vitamine C (jus de citron, persil, poivron) : améliore l’absorption du fer non héminique.
- Champignons + corps gras (huile d’olive, beurre) : véhicule les composés liposolubles (vitamine D₂, ergostérol, bêta-carotène).
- Champignons + alliacées (ail, oignon, échalote) : la quercétine de l’oignon et l’allicine de l’ail potentialisent les effets immunostimulants des bêta-glucanes fongiques.
- Poudre de champignons séchés + bouillon chaud : extraction optimale des bêta-glucanes solubles sans perte par filtration.
XVIII. Risques, confusions et intoxications
La cueillette de champignons sauvages comporte des risques réels qu’il serait irresponsable de minimiser dans un article promouvant leur valeur nutritionnelle. Les centres antipoison français enregistrent environ 1 000 à 1 500 cas d’intoxication par champignons chaque année, dont 2 à 5 cas mortels. La grande majorité des intoxications résultent d’erreurs d’identification par des cueilleurs inexpérimentés ou trop confiants.
Les syndromes d’intoxication :
Syndrome phalloïdien (mortel) : provoqué par les amatoxines de l’amanite phalloïde, de l’amanite vireuse, de l’amanite printanière et des petites lépiotes. Latence longue (6 à 24 heures après l’ingestion), puis diarrhées cholériformes profuses, déshydratation sévère, rémission trompeuse au 2ᵉ-3ᵉ jour, suivie d’une hépatite fulminante (cytolyse massive, ictère, encéphalopathie hépatique) entre le 3ᵉ et le 5ᵉ jour. Sans transplantation hépatique, la mortalité est de 10 à 30 %. Dose létale : 0,1 mg/kg d’α-amanitine, soit 30 à 50 g de champignon frais chez l’adulte (un seul chapeau d’amanite phalloïde peut tuer).
Syndrome orellanien (potentiellement mortel) : provoqué par l’orellanine des cortinaires (C. orellanus, C. speciosissimus). Latence très longue (3 à 17 jours), puis insuffisance rénale aiguë souvent irréversible nécessitant la dialyse à vie ou la transplantation rénale. L’insidieuse latence de ce syndrome le rend particulièrement dangereux : quand les symptômes apparaissent, le patient a souvent oublié avoir mangé des champignons deux semaines auparavant.
Syndrome gyromitrien : provoqué par la gyromitrine (convertie en monométhylhydrazine) du gyromitre (Gyromitra esculenta). Latence de 6 à 12 heures, troubles digestifs, hépatite toxique, hémolyse. Le gyromitre est encore consommé en Scandinavie après une double cuisson à l’eau avec rejet des eaux de cuisson — pratique risquée et déconseillée.
Syndrome résinoïdien (bénin) : le plus fréquent (80 % des intoxications). Provoqué par de nombreuses espèces à toxines gastro-intestinales irritantes. Latence courte (30 minutes à 3 heures), diarrhées, vomissements, douleurs abdominales, résolution spontanée en 24-48 heures. Pas de risque vital chez l’adulte sain mais potentiellement dangereux chez le jeune enfant ou la personne âgée déshydratée.
Bioaccumulation de métaux lourds : les champignons sont des hyperaccumulateurs de cadmium, de mercure et de plomb présents dans le sol. Les espèces sauvages cueillies sur des sols contaminés (anciennes mines, bords de routes à fort trafic, zones industrielles, anciens vergers traités à l’arséniate de plomb) peuvent contenir des concentrations de métaux lourds dépassant les normes alimentaires. Il est impératif de ne cueillir que dans des zones non polluées : forêts profondes, prairies de montagne, zones protégées éloignées de toute source de contamination. En cas de doute sur le sol, limiter la consommation à une à deux fois par semaine pour réduire l’accumulation.
Conduite à tenir en cas de suspicion d’intoxication :
- Appeler immédiatement le centre antipoison (01 40 05 48 48 à Paris, ou le 15 pour le SAMU).
- Conserver tous les restes de champignons (crus, cuits, même les épluchures) pour identification par un mycologue.
- Noter l’heure exacte du repas et l’heure de début des symptômes (une latence supérieure à 6 heures oriente vers un syndrome phalloïdien ou orellanien et constitue une urgence vitale).
- Ne pas faire vomir (risque d’inhalation), ne pas donner de lait (n’a aucun effet protecteur contrairement à la croyance populaire).
- En cas de latence longue (supérieure à 6 heures) : hospitalisation urgente même si les symptômes paraissent modérés — l’hépatite phalloïdienne débute insidieusement.
En résumé : les champignons sauvages sont un aliment extraordinaire — mais uniquement pour celui qui maîtrise leur identification. L’apprentissage auprès d’un mycologue, la progression prudente espèce par espèce (commencer par les 5-6 espèces sans confusion possible : chanterelle, trompette-de-la-mort, pied-de-mouton, cèpe, coulemelle géante, coprin chevelu), et le doute systématique face à l’inconnu sont les garants d’une cueillette sûre et gratifiante, saison après saison.
Bibliographie
- Kalač P., « A review of chemical composition and nutritional value of wild-growing and cultivated mushrooms », Journal of the Science of Food and Agriculture, 2013, 93(2), p. 209-218.
- Cardwell G. et al., « A review of mushrooms as a potential source of dietary vitamin D », Nutrients, 2018, 10(10), p. 1498.
- Roupas P. et al., « Mushrooms and agaritine: a mini-review », Journal of Functional Foods, 2012, 4(4), p. 687-709.
- Feng L. et al., « The association between mushroom consumption and mild cognitive impairment: a community-based cross-sectional study in Singapore », Journal of Alzheimer’s Disease, 2019, 68(1), p. 197-203.
- Halliwell B. et al., « Ergothioneine — a diet-derived antioxidant with therapeutic potential », FEBS Letters, 2018, 592(20), p. 3357-3366.
- Mori K. et al., « Improving effects of the mushroom Yamabushitake (Hericium erinaceus) on mild cognitive impairment: a double-blind placebo-controlled clinical trial », Phytotherapy Research, 2009, 23(3), p. 367-372.
- Vetvicka V. et Vetvickova J., « Immune-enhancing effects of maitake (Grifola frondosa) and shiitake (Lentinula edodes) extracts », Annals of Translational Medicine, 2014, 2(2), p. 14.
- Ba D. M. et al., « Higher mushroom consumption is associated with lower risk of cancer: a systematic review and meta-analysis of observational studies », Advances in Nutrition, 2021, 12(5), p. 1691-1704.
- Cheung P. C. K., « Mini-review on edible mushrooms as source of dietary fiber: preparation and health benefits », Food Science and Human Wellness, 2013, 2(3-4), p. 162-166.
- Roncero-Ramos I. et Delgado-Andrade C., « The beneficial role of edible mushrooms in human health », Current Opinion in Food Science, 2017, 14, p. 122-128.
- Mattila P. et al., « Contents of vitamins, mineral elements, and some phenolic compounds in cultivated mushrooms », Journal of Agricultural and Food Chemistry, 2001, 49(5), p. 2343-2348.
- Valverde M. E. et al., « Edible mushrooms: improving human health and promoting quality life », International Journal of Microbiology, 2015, 2015, p. 376387.
- Falandysz J. et Borovička J., « Macro and trace mineral constituents and radionuclides in mushrooms: health benefits and risks », Applied Microbiology and Biotechnology, 2013, 97(2), p. 477-501.
- Rokuya I. et Tubaki K., Fungi of Japan, Tokyo, Yama-Kei Publishers, 2011 (nutrition et mycochimie des espèces comestibles).
- Boa E., Champignons comestibles sauvages : vue d’ensemble de leurs utilisations et de leur importance pour les populations, Rome, FAO, 2006 (Produits forestiers non ligneux n° 17).
Avertissement — Cet article est publié à titre informatif et éducatif. Il ne constitue en aucun cas un guide d’identification des champignons et ne saurait remplacer l’apprentissage auprès d’un mycologue qualifié. La consommation de champignons sauvages mal identifiés peut entraîner des intoxications graves, voire mortelles. Ne cueillez et ne consommez que les espèces que vous identifiez avec une certitude absolue. En cas de doute, consultez un pharmacien ou une société mycologique. En cas de symptômes après consommation de champignons, appelez immédiatement le centre antipoison ou le 15 (SAMU). L’auteur décline toute responsabilité en cas d’intoxication résultant d’une cueillette imprudente.