Chaque année, l’humanité rejette dans l’atmosphère environ 40 milliards de tonnes de CO₂ d’origine fossile. Chaque année, les sols de la planète en absorbent une partie — mais de moins en moins, parce que nous avons passé dix mille ans à détruire leur capacité de stockage par le labour, le drainage des zones humides et la déforestation. Les sols agricoles du monde ont perdu, en moyenne, 50 à 70 % de leur carbone organique depuis leur mise en culture (Lal, 2004, Science). Ce carbone perdu n’a pas disparu — il est dans l’atmosphère, sous forme de CO₂, où il contribue au réchauffement climatique.
Le jardin-forêt est l’exact inverse de ce processus. C’est un système qui reconstruit le stock de carbone du sol — activement, durablement, et à un rythme que peu d’autres pratiques agricoles peuvent égaler. Comprendre comment et pourquoi, c’est comprendre le cycle du carbone dans sa dimension la plus concrète : celle du sol sous nos pieds.
Cet article compare les capacités de stockage de carbone de quatre systèmes : la forêt naturelle, le jardin-forêt, la prairie permanente et la culture annuelle. Il examine les trois mécanismes fondamentaux du stockage de carbone dans le sol — la glomaline, l’humus stable et le biochar — et s’appuie sur les données chiffrées de la recherche agronomique, notamment celles de l’INRAE (Institut National de Recherche pour l’Agriculture, l’Alimentation et l’Environnement).
❧ Le carbone dans le sol — un stock colossal et méconnu
Le sol est le plus grand réservoir de carbone de la biosphère terrestre. Les 30 premiers centimètres de sol de la planète contiennent environ 680 à 700 gigatonnes de carbone organique (GtC). Si l’on descend à un mètre de profondeur, le chiffre monte à 1 500 GtC — et à deux mètres, à plus de 2 400 GtC (Batjes, 2014 ; Jackson et al., 2017). Pour mettre ces chiffres en perspective : l’atmosphère contient environ 870 GtC (sous forme de CO₂), et la totalité de la végétation terrestre environ 450 GtC. Le sol contient donc deux à trois fois plus de carbone que l’atmosphère et la végétation réunies.
Ce carbone du sol n’est pas un bloc inerte. C’est un réservoir dynamique, alimenté en permanence par les apports de matière organique (litière, racines mortes, exsudats racinaires) et vidé en permanence par la minéralisation microbienne (les bactéries et les champignons du sol « respirent » le carbone organique et rejettent du CO₂). Le stock de carbone du sol est le résultat de l’équilibre entre ces deux flux : entrées (photosynthèse → biomasse → sol) et sorties (minéralisation → CO₂ atmosphérique).
Quand les entrées dépassent les sorties, le sol stocke du carbone — il est un puits. Quand les sorties dépassent les entrées (labour, érosion, drainage), le sol libère du carbone — il est une source. L’enjeu du stockage de carbone dans les sols agricoles est de faire basculer les sols-sources en sols-puits. C’est précisément ce que fait un jardin-forêt.
❧ Comparaison des systèmes — qui stocke quoi
Les données qui suivent proviennent principalement des travaux de l’INRAE (notamment les programmes GISSOL et l’initiative « 4 pour 1000 »), du Global Soil Organic Carbon Map de la FAO, et de synthèses publiées dans Global Change Biology et Agriculture, Ecosystems & Environment. Les chiffres sont donnés en tonnes de carbone organique par hectare (tC/ha) dans les 30 premiers centimètres de sol, sauf mention contraire.
La forêt naturelle tempérée — la référence
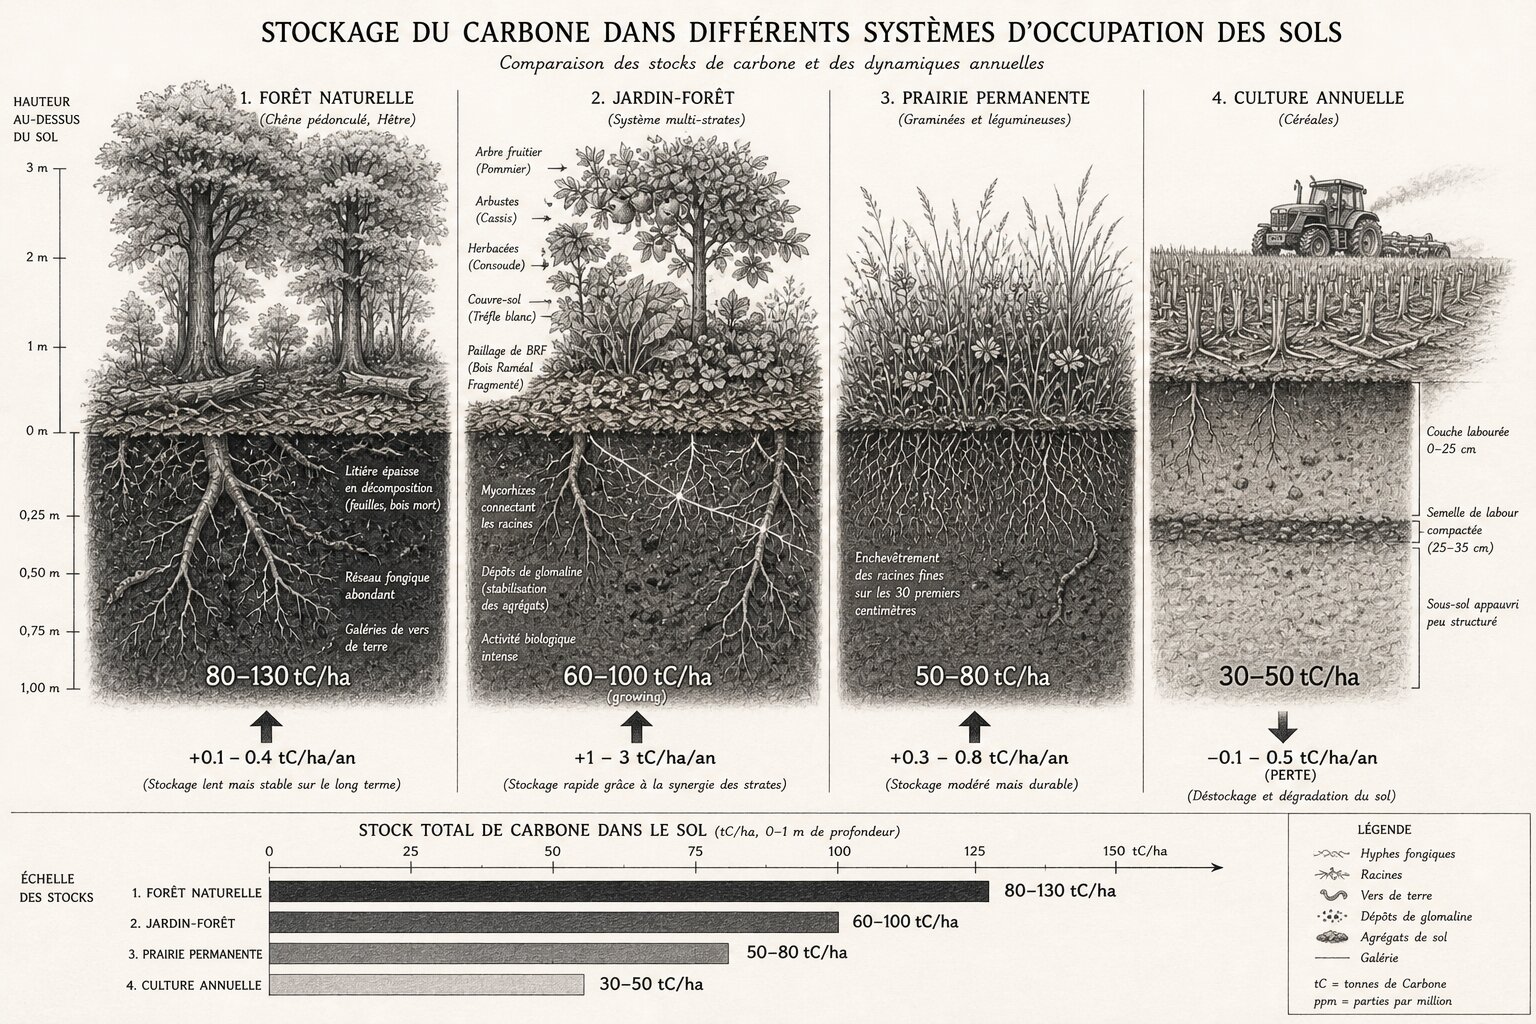
Une forêt tempérée feuillue mature (chênaie, hêtraie, forêt mixte) stocke dans son sol entre 80 et 130 tC/ha dans les 30 premiers centimètres (Arrouays et al., 2001, INRA ; Jandl et al., 2007). Si l’on ajoute le carbone de la biomasse aérienne (troncs, branches) et souterraine (racines), le stockage total atteint 150 à 250 tC/ha.
Ce stock est le résultat de siècles d’accumulation continue. Les apports annuels de litière (3 à 6 tC/ha/an sous forme de feuilles, brindilles, racines mortes) sont partiellement minéralisés par la biologie du sol, mais une fraction (10 à 30 %) est transformée en humus stable qui s’accumule lentement. Le taux de stockage net dans le sol d’une forêt mature est faible — 0,1 à 0,4 tC/ha/an — parce que le système est proche de l’équilibre. Mais cet équilibre est atteint à un niveau de stock très élevé.
Le sol forestier doit sa richesse en carbone à trois facteurs convergents : (1) l’absence de perturbation mécanique (pas de labour → le réseau fongique et les agrégats sont intacts), (2) l’apport continu de lignine (le composé organique le plus résistant à la minéralisation), et (3) l’activité des champignons ectomycorhiziens, qui transfèrent une partie du carbone photosynthétique directement dans le sol via leurs hyphes et leurs exsudats.
Le jardin-forêt — la dynamique la plus favorable
Un jardin-forêt en climat tempéré, installé sur un ancien sol agricole, présente la dynamique de stockage la plus rapide de tous les systèmes terrestres, parce qu’il combine les apports de carbone d’une forêt avec le point de départ bas d’un sol cultivé.
Le taux de stockage net de carbone dans le sol d’un jardin-forêt en phase de maturation (années 3 à 20) est estimé à 1 à 3 tC/ha/an — soit 5 à 10 fois plus qu’une forêt mature, et 2 à 5 fois plus qu’une prairie permanente. Ce chiffre, qui peut paraître spectaculaire, s’explique par la convergence de plusieurs mécanismes :
Biomasse aérienne élevée et diversifiée. Un jardin-forêt de 10 ans, avec ses arbres fruitiers, ses arbustes, ses vivaces herbacées et ses couvre-sol, produit une biomasse aérienne totale de 8 à 15 tonnes de matière sèche par hectare et par an (Crawford, 2010 ; Toensmeier, 2016). Cette biomasse, par la chute des feuilles, les tailles, le « chop and drop » de la consoude et le renouvellement des racines fines, alimente le sol en carbone de manière continue et diversifiée.
Sol non perturbé. L’absence de labour préserve le réseau fongique, les agrégats et l’humus existant. Le carbone qui entre dans le sol y reste — il n’est pas exposé à l’oxygène par le retournement de la terre, qui est le principal facteur de déstockage dans les systèmes agricoles.
Lignine abondante. Le BRF, les tailles de bois, les feuilles coriaces des arbres forestiers apportent de la lignine en quantité — le précurseur de l’humus stable. Contrairement aux résidus de cultures annuelles (cellulose facilement minéralisée), la lignine produit des composés humiques à longue durée de vie dans le sol.
Mycorhizes actives. Les champignons mycorhiziens transfèrent 10 à 30 % du carbone photosynthétique de l’arbre directement dans le sol, via leurs hyphes, leurs exsudats et surtout la glomaline — une glycoprotéine extraordinairement stable que nous décrirons en détail.
En valeur absolue, un jardin-forêt installé depuis 15 à 20 ans sur un ancien sol cultivé peut atteindre un stock de 60 à 100 tC/ha dans les 30 premiers centimètres — soit un niveau comparable à celui d’une jeune forêt naturelle. Toensmeier (2016) a compilé des données de systèmes agroforestiers multi-strates dans le monde entier et estime que les jardins-forêts tempérés matures peuvent stocker 100 à 200 tC/ha en biomasse + sol — avec un potentiel de séquestration cumulée de 15 à 40 tC/ha sur les 20 premières années.
La prairie permanente — un bon stockeur, mais limité
Une prairie permanente (non labourée, non retournée, fauchée ou pâturée) est un système reconnu pour sa capacité de stockage de carbone. Le réseau racinaire dense des graminées, qui se renouvelle chaque année, injecte du carbone dans les 30 premiers centimètres de sol de manière régulière. Le stock typique est de 50 à 80 tC/ha dans les 30 premiers centimètres (Soussana et al., 2004, INRA ; Arrouays et al., 2001).
Le taux de stockage net est de 0,3 à 0,8 tC/ha/an en prairie tempérée — significatif, mais inférieur à celui d’un jardin-forêt en phase de croissance. La raison : la prairie ne produit pas de lignine (les graminées contiennent principalement de la cellulose), elle n’héberge pas de champignons ectomycorhiziens, et son apport de biomasse est essentiellement racinaire et superficiel. L’humus produit par une prairie est un humus de type mull bactérien — fertile et actif, mais moins stable à long terme que l’humus forestier d’origine fongique.
La prairie a cependant un avantage majeur : elle est extrêmement résistante au déstockage. Le carbone stocké dans les agrégats racinaires des graminées est protégé physiquement par la densité du réseau racinaire. Retourner une prairie (la convertir en culture annuelle par labour) libère 20 à 40 % de son carbone en 5 à 10 ans — c’est la raison pour laquelle la conversion des prairies permanentes en cultures est considérée comme l’une des sources majeures d’émissions de CO₂ agricoles (Soussana et al., 2004).
La culture annuelle — le gouffre à carbone
Un sol de grande culture (blé, maïs, colza, betterave) en rotation conventionnelle contient typiquement 30 à 50 tC/ha dans les 30 premiers centimètres — soit 30 à 60 % de moins qu’un sol forestier ou prairial. Et ce stock continue souvent de diminuer : le taux de perte annuelle de carbone dans les sols de grande culture français est estimé à 0,1 à 0,5 tC/ha/an par l’INRAE (programme GISSOL, données du Réseau de Mesures de la Qualité des Sols).
Les raisons de cette hémorragie sont bien identifiées :
Le labour. En retournant le sol sur 20 à 30 cm, le labour expose les agrégats organiques à l’oxygène et aux bactéries aérobies. La matière organique protégée au sein des agrégats est brutalement minéralisée — transformée en CO₂ en quelques semaines. Un seul passage de charrue libère l’équivalent de 0,5 à 2 tonnes de CO₂ par hectare (Balesdent et al., 2000, INRA).
L’exportation de biomasse. En culture annuelle, la quasi-totalité de la biomasse aérienne (grain, paille) est exportée du champ. Seules les racines et les chaumes restent au sol — un apport de carbone insuffisant pour compenser les pertes par minéralisation.
L’absence de lignine. Les résidus de cultures annuelles (paille, racines de blé, fanes de pomme de terre) sont composés principalement de cellulose et d’hémicellulose — des composés rapidement minéralisés par les bactéries. Ils ne produisent quasiment pas d’humus stable. Le sol reçoit du carbone « jetable » au lieu du carbone « durable » que fournit la lignine.
La destruction du réseau fongique. Le labour, les fongicides et les engrais azotés de synthèse (qui favorisent les bactéries au détriment des champignons) éliminent les champignons du sol — les seuls organismes capables de transformer la lignine en humus stable et de produire de la glomaline. Sans champignons, le sol perd sa capacité à stabiliser le carbone.
Tableau comparatif
Forêt naturelle tempérée : stock sol 80-130 tC/ha ; stock total 150-250 tC/ha ; flux net +0,1 à +0,4 tC/ha/an (équilibre).
Jardin-forêt (phase active) : stock sol 60-100 tC/ha après 15-20 ans ; stock total 100-200 tC/ha ; flux net +1 à +3 tC/ha/an.
Prairie permanente : stock sol 50-80 tC/ha ; stock total 55-90 tC/ha ; flux net +0,3 à +0,8 tC/ha/an.
Culture annuelle : stock sol 30-50 tC/ha ; stock total 32-55 tC/ha ; flux net −0,1 à −0,5 tC/ha/an (perte).
❧ La glomaline — la colle invisible du carbone
La glomaline est l’une des découvertes les plus importantes de la science du sol des trente dernières années, et pourtant elle reste largement inconnue du grand public et même de nombreux agronomes.
Cette glycoprotéine a été découverte en 1996 par Sara Wright, chercheuse à l’USDA (United States Department of Agriculture), qui travaillait sur les champignons mycorhiziens arbusculaires (MA). Wright cherchait à comprendre pourquoi les sols riches en mycorhizes avaient une structure en agrégats plus stable que les sols pauvres en mycorhizes. Elle a isolé une protéine insoluble, collante et extraordinairement résistante à la dégradation, produite par les hyphes des champignons MA — et l’a nommée glomaline, d’après le genre Glomus (aujourd’hui reclassé en Rhizophagus) qui regroupe les champignons MA les plus courants.
Qu’est-ce que la glomaline ?
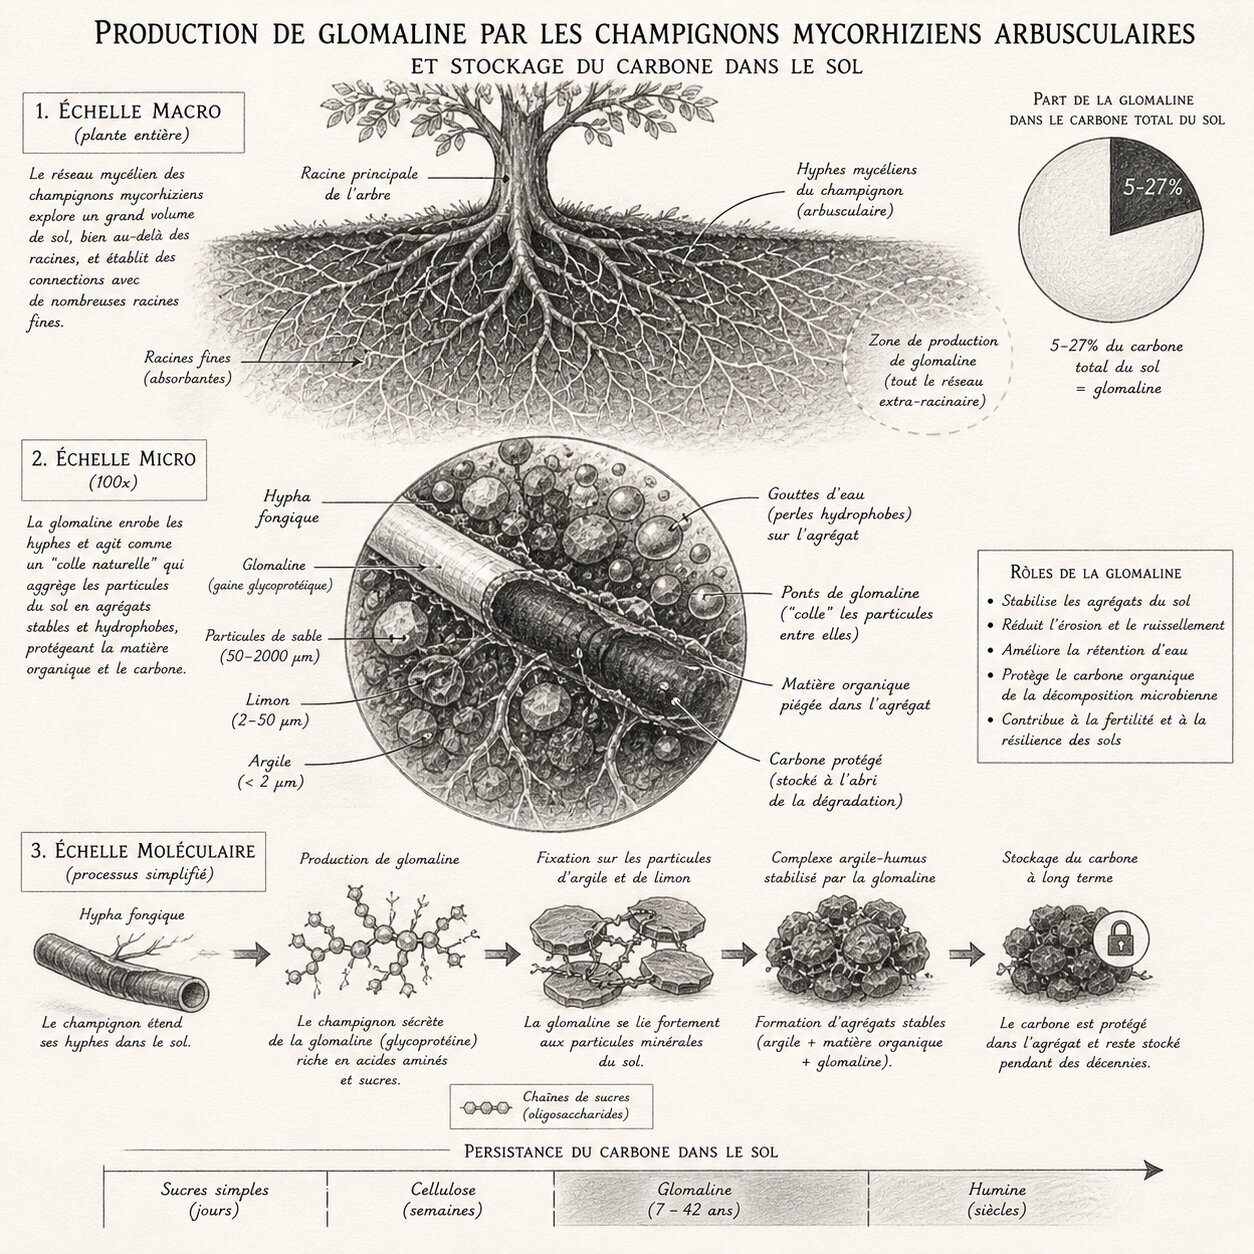
La glomaline est une glycoprotéine (protéine liée à des chaînes de sucres) produite par les hyphes des champignons mycorhiziens arbusculaires et déposée sur leurs parois cellulaires. Quand les hyphes meurent et se décomposent, la glomaline est libérée dans le sol sous forme de résidu protéique extrêmement hydrophobe (elle repousse l’eau) et récalcitrant (elle résiste à la dégradation microbienne).
La glomaline agit comme une colle biologique : elle lie les particules de sol (argiles, limons, sables fins) en agrégats stables qui résistent à la dispersion par l’eau. Ces agrégats sont la base de la structure du sol — porosité, aération, infiltration, résistance à l’érosion. Un sol riche en glomaline est un sol qui « tient » — qui ne se compacte pas sous la pluie, ne croûte pas en surface, ne s’effondre pas quand on le trempe.
Glomaline et stockage de carbone
La glomaline contient environ 30 à 40 % de carbone en masse. Sa durée de vie dans le sol est estimée entre 7 et 42 ans (Rillig et al., 2001 ; Wright & Upadhyaya, 1996) — considérablement plus longue que la plupart des composés organiques du sol (les sucres simples sont minéralisés en jours, la cellulose en semaines à mois). La glomaline constitue 5 à 27 % du carbone organique total dans les sols étudiés par Wright — une proportion stupéfiante, qui signifie qu’un quart du carbone de certains sols est sous forme de glomaline.
Dans un sol forestier ou de jardin-forêt, riche en mycorhizes arbusculaires (les fruitiers, les légumineuses, les herbacées et la plupart des couvre-sol forment des MA), la production de glomaline est continue et abondante. Chaque mètre de réseau mycorhizien produit de la glomaline sur ses parois ; chaque cycle de vie des hyphes (quelques semaines à quelques mois) libère cette glomaline dans le sol. Sur une année, un sol riche en MA peut accumuler 0,1 à 0,5 tC/ha sous forme de glomaline — une contribution significative au stockage total de carbone.
Ce qui rend la glomaline particulièrement précieuse, c’est qu’elle stocke le carbone sous une forme doublement protégée : chimiquement (la protéine est intrinsèquement résistante à la dégradation) et physiquement (en liant les agrégats, elle emprisonne d’autres composés organiques à l’intérieur d’agrégats que les bactéries ne peuvent pas pénétrer). La glomaline est à la fois un stock de carbone et un protecteur d’autres stocks de carbone — un double bénéfice.
Ce qui détruit la glomaline
Les mêmes pratiques qui détruisent les mycorhizes détruisent la glomaline : le labour (destruction mécanique des agrégats et des hyphes), les fongicides (mort des champignons MA), les engrais phosphatés solubles (inhibition de la colonisation mycorhizienne). Un sol labouré et traité aux fongicides peut perdre 50 à 80 % de sa glomaline en quelques années — et avec elle, sa structure, sa stabilité et sa capacité de stockage du carbone.
Dans un jardin-forêt — sol non travaillé, pas de fongicides, pas d’engrais chimiques — la glomaline s’accumule naturellement et continûment. C’est l’un des mécanismes les plus puissants par lesquels le jardin-forêt stocke le carbone de manière durable.
❧ L’humus stable — le carbone des siècles
L’humus est un terme général qui désigne la matière organique du sol transformée par l’activité biologique au point de ne plus être reconnaissable comme matière végétale ou animale. C’est un mélange complexe de composés organiques — acides humiques, acides fulviques, humine — dont la composition exacte varie selon le sol, le climat et la végétation.
Les trois fractions de l’humus
Les acides fulviques sont les plus petites molécules humiques (masse moléculaire de 1 000 à 10 000 Da). Ils sont solubles à tous les pH, jaune clair, et relativement mobiles dans le sol. Leur durée de vie est de quelques années à quelques décennies. Ils constituent la fraction « labile » de l’humus — disponible pour les micro-organismes et les plantes.
Les acides humiques sont des molécules plus grosses (10 000 à 100 000 Da), brun foncé à noir, insolubles en milieu acide. Ils se lient fortement aux argiles et aux oxydes métalliques du sol pour former les complexes argilo-humiques — le fondement de la CEC (capacité d’échange cationique) du sol. Leur durée de vie est de plusieurs décennies à plusieurs siècles. Ils constituent la fraction « stable » de l’humus.
L’humine est la fraction la plus résistante, intimement liée à la fraction minérale du sol. Elle est insoluble dans tous les solvants et sa durée de vie peut atteindre plusieurs milliers d’années. Les datations au carbone-14 de l’humine de sols forestiers anciens donnent des âges de 1 000 à 5 000 ans — ce carbone a été fixé par photosynthèse du temps des Gaulois ou des Romains.
Comment le jardin-forêt produit de l’humus stable
La production d’humus stable est fondamentalement liée à la dégradation fongique de la lignine — le mécanisme décrit dans notre article sur le BRF. Les produits de dégradation de la lignine (composés phénoliques oxydés) se polymérisent spontanément et se lient aux argiles pour former les acides humiques et l’humine. Plus il y a de lignine dans les apports organiques, plus la proportion d’humus stable est élevée.
Le jardin-forêt, avec ses apports abondants de BRF, de feuilles coriaces, de branchettes et d’écorces, fournit au sol un flux de lignine continu que les champignons basidiomycètes transforment en humus stable. C’est le mécanisme principal de stockage de carbone à long terme — le carbone emprisonné dans les acides humiques et l’humine y restera pour des siècles, voire des millénaires, tant que le sol n’est pas retourné.
L’INRAE a montré (programme GISSOL ; Barré et al., 2017) que la stabilité du carbone organique dans les sols français est fortement corrélée à la teneur en argiles (les argiles protègent physiquement les composés humiques) et à l’absence de travail du sol. Les sols de forêts et de prairies permanentes stockent du carbone sous forme stable ; les sols labourés le libèrent. La conclusion est sans appel : le premier acte de stockage du carbone est de cesser de retourner le sol.
❧ Le biochar — le carbone des millénaires
Le biochar est du charbon de bois produit intentionnellement par pyrolyse (chauffage du bois en absence ou déficit d’oxygène, à 300-700 °C). Ce n’est pas un concept nouveau — c’est une redécouverte. Les Terra Preta d’Amazonie, des sols noirs extraordinairement fertiles créés par les civilisations précolombiennes il y a 500 à 2 500 ans, contiennent des quantités massives de charbon de bois mélangé à de la matière organique et des tessons de poterie. Ces sols, malgré le climat tropical qui minéralise rapidement toute matière organique, ont conservé leur fertilité pendant des millénaires — grâce au charbon.
Pourquoi le biochar stocke le carbone
La pyrolyse transforme la structure chimique du carbone organique du bois. Les liaisons C-H et C-O du bois (cellulose, lignine) sont remplacées par des liaisons C=C aromatiques — des cycles de benzène condensés en feuillets de graphène, semblables à ceux du graphite. Ces structures aromatiques sont extrêmement résistantes à l’attaque microbienne — les bactéries et les champignons du sol ne possèdent pas les enzymes nécessaires pour casser les doubles liaisons C=C des cycles aromatiques condensés.
Résultat : le biochar a une durée de vie dans le sol de 100 à 10 000 ans, selon les conditions (Lehmann et al., 2015). C’est la forme de carbone organique la plus stable que l’on puisse introduire dans un sol. Un kilogramme de biochar enfoui dans le sol aujourd’hui y sera encore dans mille ans — et le carbone qu’il contient ne retournera pas dans l’atmosphère.
Les bénéfices agronomiques du biochar
Le biochar n’est pas seulement un puits de carbone — c’est aussi un amendement agronomique remarquable. Sa structure poreuse (surface spécifique de 200 à 500 m²/g — comparable au charbon actif) lui confère plusieurs propriétés :
Rétention d’eau. Les micropores du biochar absorbent et retiennent l’eau comme une éponge. Un sol amendé au biochar peut retenir 20 à 30 % d’eau supplémentaire par rapport à un sol non amendé (Laird et al., 2010).
Rétention de nutriments. La surface du biochar, chargée négativement (après quelques mois de vieillissement dans le sol), retient les cations nutritifs (Ca²⁺, Mg²⁺, K⁺, NH₄⁺) par échange ionique, augmentant la CEC du sol. Les nutriments sont moins lessivés et plus disponibles pour les plantes.
Habitat microbien. Les pores du biochar constituent un habitat protégé pour les bactéries et les champignons bénéfiques du sol. Les hyphes mycorhiziens colonisent activement les pores du biochar, qui leur offrent un refuge contre les prédateurs (nématodes, protozoaires) et contre la dessiccation.
Correction du pH. Le biochar est généralement alcalin (pH 8-10). Dans les sols acides (pH < 6), son apport remonte le pH de manière durable — contrairement au chaulage, qui doit être renouvelé tous les 3 à 5 ans.
Le biochar dans le jardin-forêt
Le biochar s’intègre naturellement dans la logique du jardin-forêt. Les branches trop grosses pour le BRF (diamètre > 7 cm), les troncs d’arbres morts, le bois de taille sèche — tout ce bois qui ne peut pas être broyé en BRF peut être transformé en biochar par pyrolyse artisanale.
La méthode la plus simple est le Kon-Tiki (du nom du radeau de Thor Heyerdahl) — un foyer conique en métal dans lequel on brûle le bois par couches successives, chaque nouvelle couche étouffant les braises de la précédente et limitant l’apport d’oxygène. Le résultat est un charbon léger, poreux, qu’on éteint à l’eau et qu’on mélange au compost ou au sol. Des modèles artisanaux peuvent être construits à partir d’un simple fût métallique de 200 litres.
Quantité recommandée : 1 à 5 kg de biochar par mètre carré, mélangé aux 10 premiers centimètres de sol ou incorporé au compost. L’apport est unique et définitif — le biochar ne se dégrade pas et n’a pas besoin d’être renouvelé.
Précaution importante : le biochar frais est « vide » — il n’a pas encore été colonisé par les micro-organismes et ses sites d’échange ne sont pas encore chargés en nutriments. Épandu pur sur un sol, il peut temporairement adsorber les nutriments disponibles et provoquer une baisse de fertilité — comme une éponge sèche qui absorbe tout ce qui passe. Il est donc recommandé de charger le biochar avant l’épandage, en le mélangeant à du compost mûr, du purin d’ortie ou du purin de consoude pendant 2 à 4 semaines. Le biochar « chargé » est immédiatement bénéfique pour le sol.
❧ L’initiative « 4 pour 1000 » — le sol comme solution climatique
L’initiative « 4 pour 1000 » a été lancée lors de la COP21 à Paris en 2015 par Stéphane Le Foll, alors ministre français de l’Agriculture. Son principe est simple et percutant : si les sols agricoles de la planète augmentaient leur stock de carbone organique de 0,4 % par an (4 pour mille), cette augmentation suffirait à compenser l’intégralité des émissions annuelles de CO₂ d’origine fossile de l’humanité.
Le calcul est le suivant : les sols contiennent environ 1 500 GtC sur un mètre de profondeur. Un taux d’accroissement annuel de 0,4 % représente 6 GtC/an — soit environ 22 Gt de CO₂, ce qui correspondait approximativement aux émissions fossiles mondiales de 2015. Le chiffre est symbolique et volontairement simplifié (tous les sols ne peuvent pas stocker au même rythme, et les émissions ont augmenté depuis 2015), mais il illustre un point fondamental : le sol a la capacité physique d’absorber des quantités considérables de carbone, à condition qu’on le gère correctement.
Les pratiques promues par « 4 pour 1000 » incluent : l’agroforesterie, le semis direct (sans labour), les couverts végétaux permanents, le compostage, le retour des résidus au sol, la restauration des prairies dégradées — et, explicitement, les systèmes agroforestiers multi-strates, c’est-à-dire les jardins-forêts.
Le programme INRAE « CarboSMS » (Carbone des Sols et atténuation du changement climatique dans les systèmes Méditerranéens et Semi-arides) a montré que les systèmes agroforestiers méditerranéens stockent 2 à 4 fois plus de carbone dans le sol que les cultures annuelles adjacentes sur le même type de sol (Cardinael et al., 2015 ; Pellerin et al., 2019). Ces résultats sont directement transposables aux jardins-forêts tempérés.
❧ Les mécanismes du stockage — synthèse
Le stockage de carbone dans le sol d’un jardin-forêt repose sur cinq mécanismes complémentaires, qui opèrent à des échelles de temps différentes :
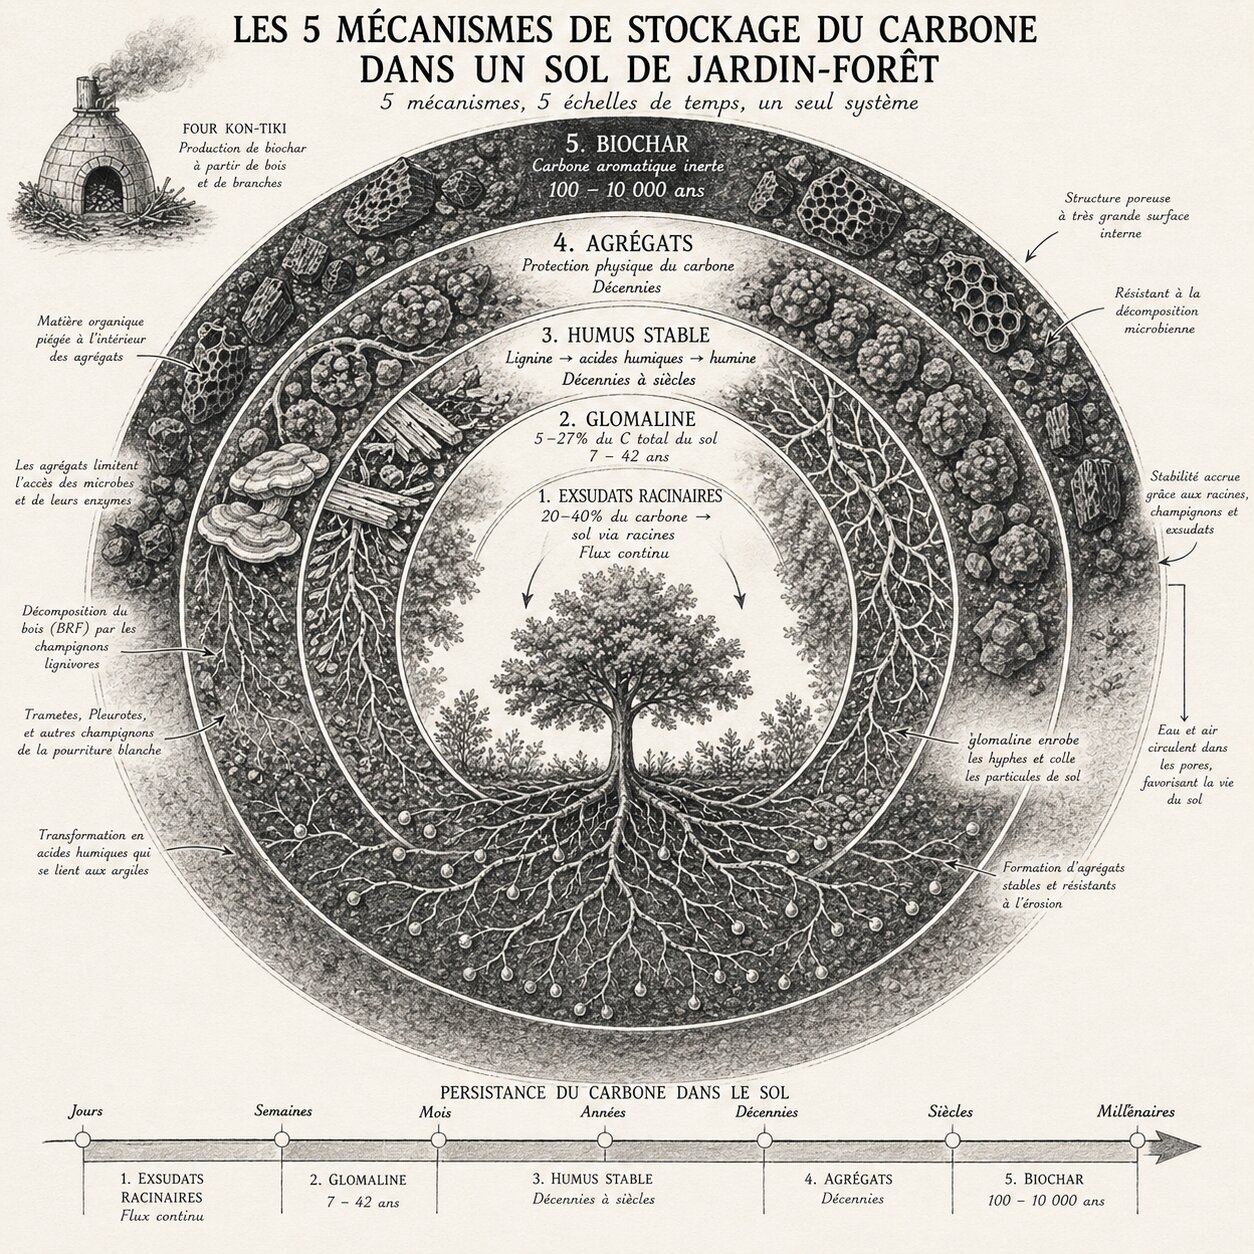
1. La glomaline mycorhizienne (durée de vie : 7-42 ans). Produite en continu par les champignons MA associés aux fruitiers, aux légumineuses et aux herbacées. Stocke 5-27 % du carbone total du sol. Stabilise les agrégats et protège d’autres formes de carbone. Détruite par le labour et les fongicides.
2. L’humification de la lignine (durée de vie : décennies à siècles). La dégradation fongique du BRF, des feuilles et du bois mort produit des acides humiques et de l’humine qui se lient aux argiles. C’est le mécanisme dominant dans les sols forestiers. Nécessite un apport continu de lignine et un réseau fongique intact.
3. La protection physique dans les agrégats (durée de vie : décennies). Le carbone organique emprisonné à l’intérieur d’agrégats stables est inaccessible aux micro-organismes — il est « séquestré » mécaniquement. Les agrégats sont stabilisés par la glomaline, par les hyphes fongiques et par les exsudats racinaires. Le labour détruit les agrégats et libère le carbone protégé.
4. Le transfert racinaire et les exsudats (renouvellement continu). Les plantes transfèrent 20 à 40 % de leur carbone photosynthétique dans le sol via les racines mortes, les exsudats racinaires (sucres, acides organiques, acides aminés) et les partenaires mycorhiziens. Ce flux est continu tant que des plantes vivantes sont présentes — et dans un jardin-forêt avec son couvert permanent, il ne s’arrête jamais.
5. Le biochar (durée de vie : siècles à millénaires). La forme la plus stable de carbone organique dans le sol. Apport unique et définitif. Stocke le carbone et améliore les propriétés agronomiques du sol.
❧ Ce que vous pouvez faire — les gestes concrets
Le stockage de carbone n’est pas un concept abstrait réservé aux chercheurs de l’INRAE. C’est quelque chose qui se passe dans votre sol, chaque jour, dès lors que vous mettez en œuvre quelques pratiques simples :
Ne jamais retourner le sol. C’est la règle n°1, absolue et non négociable. Le moindre coup de bêche détruit des agrégats qui ont mis des mois à se former et libère du carbone qui avait été stocké. Dans un jardin-forêt, il n’y a aucune raison de retourner le sol — la litière, le BRF et l’activité biologique assurent naturellement l’aération et la fertilité.
Maintenir un couvert végétal permanent. Un sol nu est un sol qui perd du carbone — par érosion, par minéralisation microbienne accélérée (le sol nu se réchauffe davantage), et par absence d’apports racinaires. Le trèfle blanc, le fraisier, la bugle rampante — n’importe quel couvre-sol vaut mieux qu’un sol nu.
Apporter du BRF. C’est le geste le plus efficace pour augmenter le stock de carbone stable du sol. 3 à 5 cm de BRF de feuillus, épandus en automne, déclenchent la chaîne lignine → champignons → humus stable qui est le cœur du stockage forestier du carbone.
Favoriser les mycorhizes. Pas de fongicides, pas d’engrais phosphatés solubles, pas de sol nu. Planter des espèces mycorhizogènes (trèfle, luzerne, consoude, arbres fruitiers). Chaque mètre de réseau mycorhizien produit de la glomaline et stocke du carbone.
Produire du biochar. Les grosses branches, les troncs morts, le bois inutilisable en BRF — tout peut devenir du biochar. C’est le stockage ultime : carbone immobilisé pour des siècles.
Planter des arbres. Chaque arbre est une pompe à carbone qui extrait le CO₂ de l’atmosphère et l’injecte dans le sol via ses racines, ses feuilles mortes, son bois mort et ses partenaires mycorhiziens. Un seul pommier haute-tige séquestre 10 à 20 kg de carbone par an dans sa biomasse et dans le sol. Dix arbres sur 1 000 m² de jardin-forêt, c’est 100 à 200 kg de carbone séquestré par an — chaque année, pendant des décennies.
Le jardin-forêt n’est pas seulement un système de production alimentaire. C’est un acte de restauration écologique — un geste concret, mesurable, vérifiable par la science, qui contribue à résoudre la plus grande crise environnementale de notre époque. Et il commence par un geste très simple : ne plus retourner la terre, et laisser les champignons faire le reste.
❧ Bibliographie
Arrouays, D. et al. (2001). Carbon stocks in soils of France and their main determinants. Global Biogeochemical Cycles, 15(3) : 587-602. — Cartographie des stocks de carbone des sols français, données INRA.
Balesdent, J. et al. (2000). Relationship of soil organic matter dynamics to physical protection and tillage. Soil and Tillage Research, 53 : 215-230. — Effet du labour sur la minéralisation du carbone organique.
Barré, P. et al. (2017). Ideas and perspectives: Can we use the soil carbon saturation deficit to quantitatively assess the potential for further carbon storage? Biogeosciences, 14 : 3557-3602.
Batjes, N.H. (2014). Total carbon and nitrogen in the soils of the world. European Journal of Soil Science, 65 : 10-21.
Cardinael, R. et al. (2015). Impact of alley cropping agroforestry on stocks, forms and spatial distribution of soil organic carbon. Geoderma, 259-260 : 288-299. — Données INRAE sur le stockage de carbone en agroforesterie.
Jackson, R.B. et al. (2017). The ecology of soil carbon: pools, vulnerabilities, and biotic and abiotic controls. Annual Review of Ecology, Evolution, and Systematics, 48 : 419-445.
Lal, R. (2004). Soil carbon sequestration impacts on global climate change and food security. Science, 304 : 1623-1627. — L’article fondateur sur le potentiel de séquestration de carbone par les sols.
Lehmann, J. & Joseph, S. (2015). Biochar for Environmental Management, 2e éd. Routledge, 928 p. — Le traité de référence mondial sur le biochar.
Pellerin, S. et al. (2019). Stocker du carbone dans les sols français — quel potentiel au regard de l’objectif 4 pour 1000 et à quel coût ? Rapport INRA, 114 p. — Synthèse française de référence, commandée par l’ADEME et le ministère de l’Agriculture.
Rillig, M.C. et al. (2001). Large contribution of arbuscular mycorrhizal fungi to soil carbon pools in tropical forest soils. Plant and Soil, 233 : 167-177.
Soussana, J.-F. et al. (2004). Carbon cycling and sequestration opportunities in temperate grasslands. Soil Use and Management, 20 : 219-230. — Données INRA sur le stockage de carbone en prairies.
Toensmeier, E. (2016). The Carbon Farming Solution. Chelsea Green Publishing, 480 p. — Synthèse mondiale sur la séquestration de carbone par les pratiques agricoles, avec des données chiffrées par système.
Wright, S.F. & Upadhyaya, A. (1996). Extraction of an abundant and unusual protein from soil and comparison with hyphal protein of arbuscular mycorrhizal fungi. Soil Science, 161 : 575-586. — L’article de découverte de la glomaline.