Dans un sol cultivé, les nutriments descendent. La pluie les entraîne vers le bas — c’est le lessivage, le fléau silencieux de l’agriculture. Le potassium, le calcium, le magnésium, le bore, le fer, lentement mais inexorablement, migrent vers les horizons profonds du sol, hors de portée des racines superficielles des cultures annuelles. L’agriculteur conventionnel compense en ajoutant des engrais chaque année — un tonneau des Danaïdes chimique.
La forêt, elle, a résolu ce problème depuis des millions d’années. Elle utilise des pompes biologiques : des plantes à racines profondes qui plongent dans les couches du sol où les nutriments se sont accumulés, les absorbent, les concentrent dans leurs tissus aériens, et les restituent en surface par la chute de leurs feuilles. C’est le recyclage vertical des nutriments — un ascenseur minéral permanent, gratuit et autosuffisant.
En permaculture et en agroforesterie, ces plantes portent le nom d’accumulateurs dynamiques. Le terme a été popularisé par Robert Kourik dans son ouvrage Designing and Maintaining Your Edible Landscape Naturally (1986), puis repris par Eric Toensmeier dans le monumental Edible Forest Gardens (2005). Il désigne les plantes qui accumulent dans leurs tissus des concentrations de minéraux significativement supérieures à la moyenne des végétaux — non pas par un mécanisme passif, mais par une absorption active et sélective liée à la profondeur et à l’architecture de leur système racinaire.
Quatre plantes se détachent du lot par l’ampleur de leur accumulation, la facilité de leur culture et la multiplicité de leurs usages au jardin-forêt : la consoude, l’ortie, la prêle et le pissenlit. Ce sont les quatre piliers de la fertilité autonome du jardin-forêt — et c’est à elles que cet article est consacré.
❧ Le mécanisme — comment les racines profondes recyclent les nutriments
Pour comprendre les accumulateurs dynamiques, il faut d’abord comprendre ce qui se passe sous nos pieds quand il pleut.
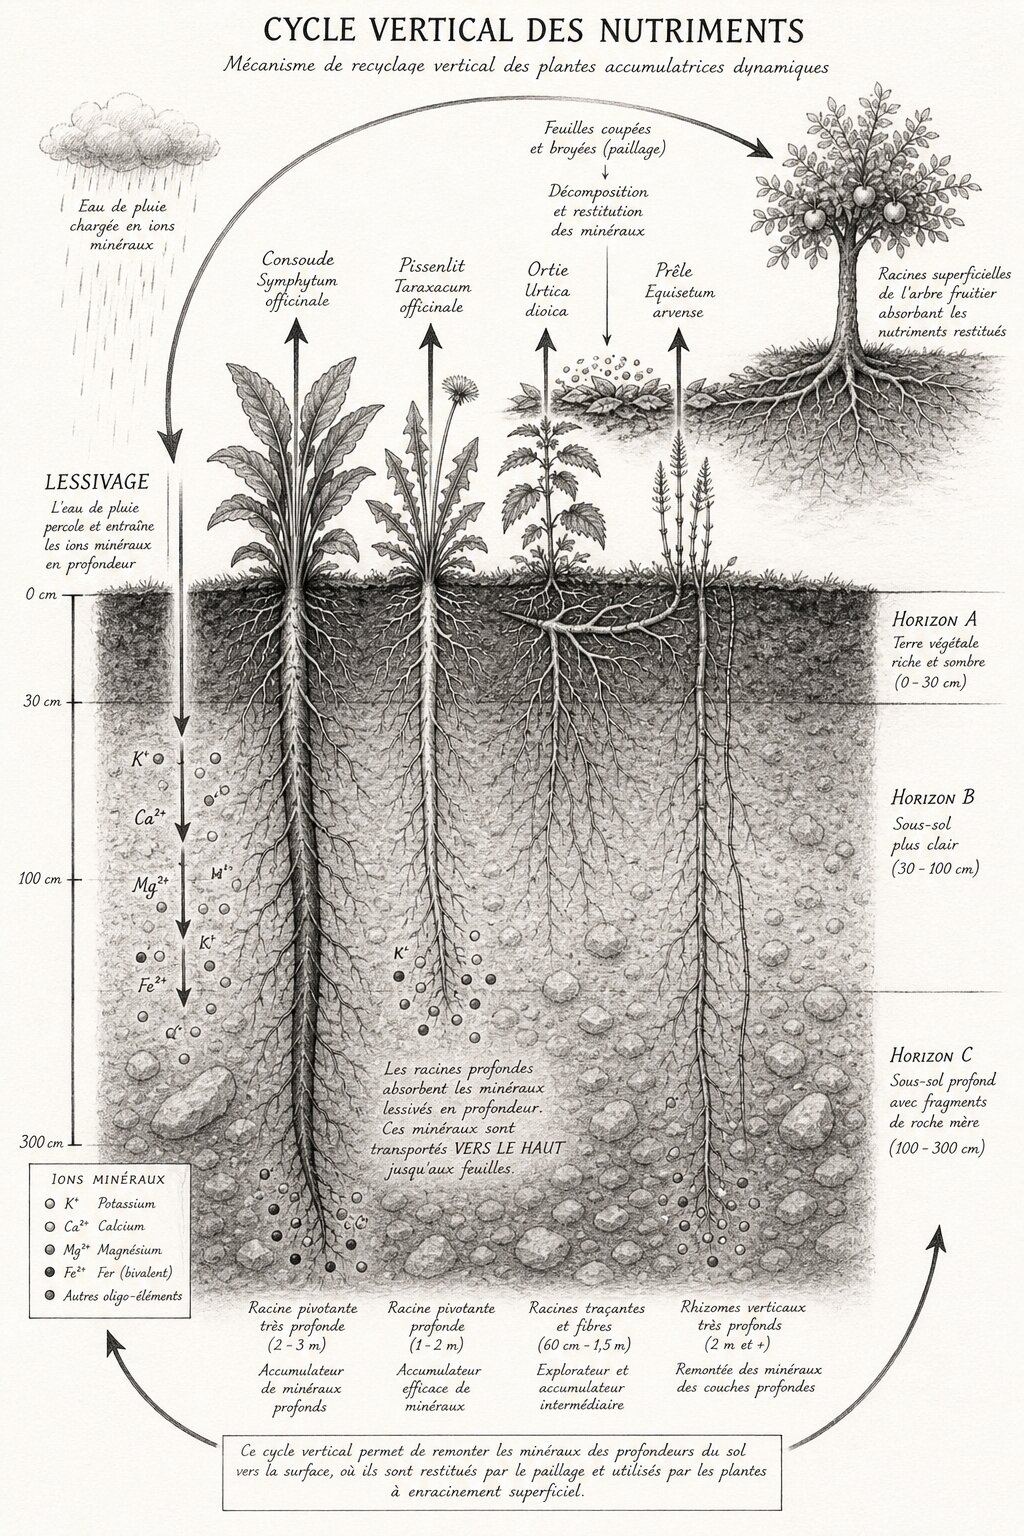
L’eau de pluie qui s’infiltre dans le sol n’est pas pure — elle dissout les ions minéraux présents dans la solution du sol et les entraîne vers le bas par percolation. Ce processus, le lessivage, est d’autant plus intense que le sol est sableux (faible capacité de rétention), acide (les ions H⁺ déplacent les cations nutritifs des sites d’échange) et arrosé (forte pluviométrie ou irrigation excessive). Dans les sols tempérés de l’Europe occidentale, le lessivage annuel peut atteindre 30 à 80 kg de potassium, 50 à 200 kg de calcium et 10 à 30 kg de magnésium par hectare — des quantités considérables, qui expliquent l’appauvrissement progressif des sols cultivés non amendés.
Les nutriments lessivés ne disparaissent pas : ils s’accumulent dans les horizons profonds du sol (au-delà de 50 cm, parfois à 1 ou 2 mètres de profondeur), dans la roche-mère en altération, et dans les nappes perchées. Ils sont là, mais hors de portée des racines des cultures annuelles (blé : 30-60 cm, tomate : 30-50 cm, salade : 15-25 cm).
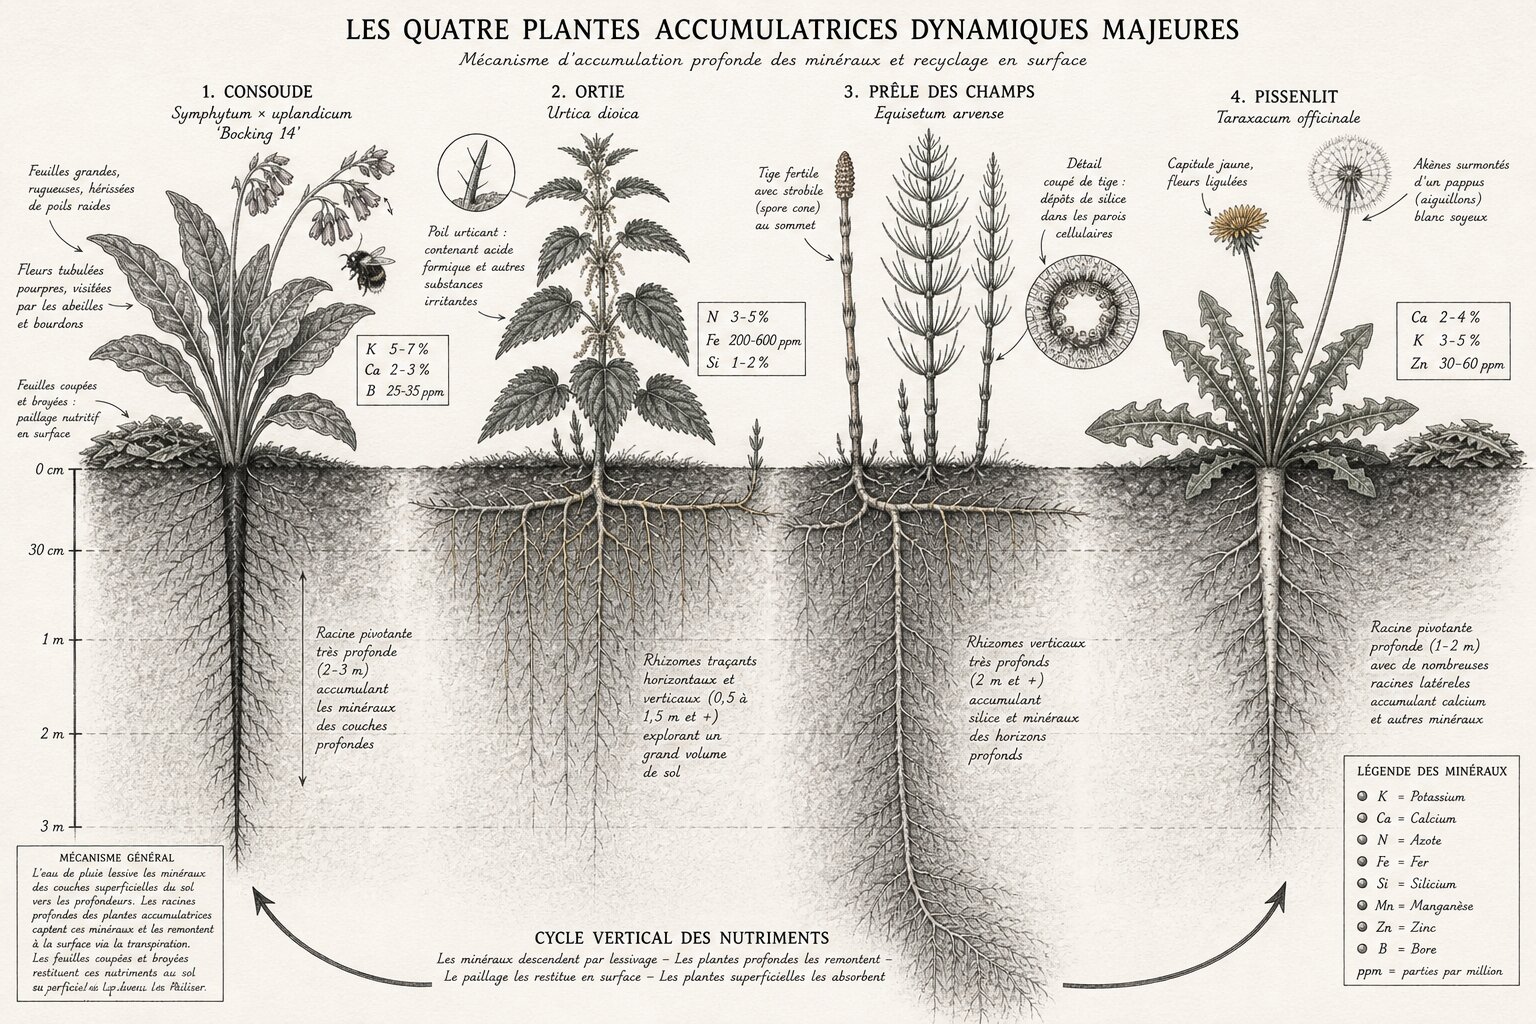
Les accumulateurs dynamiques possèdent des racines pivotantes ou des rhizomes profonds qui atteignent ces horizons inaccessibles. La consoude plonge à 2-3 mètres, le pissenlit à 1-2 mètres, l’ortie à 60 cm-1,5 mètre (mais avec un réseau dense de rhizomes traçants), la prêle à 1,5-2 mètres (et jusqu’à 5 mètres dans certains sols alluviaux — la prêle est l’une des plantes à enracinement le plus profond de la flore européenne).
Ces racines profondes absorbent les ions minéraux dissous dans la solution du sol profond, les transportent via le xylème jusqu’aux tissus aériens (feuilles, tiges), où ils se concentrent. Quand les feuilles tombent — ou quand le jardinier les coupe et les dépose au sol — les minéraux sont restitués en surface, dans la zone racinaire des arbres et des cultures. Le cycle est bouclé : les nutriments lessivés en profondeur sont remontés en surface par les plantes-pompes, puis redistribués aux plantes cultivées.
Ce n’est pas de la magie — c’est de la physiologie végétale appliquée. Les plantes n’inventent pas les minéraux ; elles les déplacent verticalement dans le profil du sol. Et elles le font avec une efficacité que nulle technique humaine ne peut égaler : silencieusement, gratuitement, en se reproduisant toutes seules.
❧ La consoude — le roi des accumulateurs
Botanique et cultivars
La consoude dont nous parlons n’est pas la consoude officinale sauvage (Symphytum officinale L.), mais le cultivar hybride ‘Bocking 14’ de la consoude de Russie (Symphytum × uplandicum Nyman), un croisement entre S. officinale et S. asperum sélectionné dans les années 1950 par Lawrence Hills à la station expérimentale de Bocking, dans l’Essex (Angleterre). Cette distinction est capitale : S. officinale se ressème abondamment et peut devenir envahissante ; ‘Bocking 14’ est stérile (ne produit pas de graines viables) et ne se propage que par division de racines. On le plante où on veut, il y reste.
‘Bocking 14’ forme une touffe vigoureuse de 60 à 90 cm de hauteur, avec de grandes feuilles rugueuses, elliptiques-lancéolées, couvertes de poils raides (d’où le nom anglais comfrey, de con firma, « qui consolide » — en référence à l’usage médiéval pour souder les fractures). Les fleurs, tubulaires, violet-pourpre, sont très visitées par les bourdons. La racine pivotante, noire, charnue, atteint 2 à 3 mètres de profondeur dans les sols meubles.
Composition minérale
C’est ici que la consoude se distingue de toutes les autres plantes. Les analyses foliaires, réalisées par Hills (Henry Doubleday Research Association, 1976), puis confirmées par de nombreuses études universitaires, montrent des concentrations remarquables en matière sèche :
Potassium (K) : 5 à 7 % de la matière sèche. C’est le chiffre le plus spectaculaire. À titre de comparaison, le foin de prairie contient 1,5 à 2 % de K, et le compost de jardin 0,5 à 1,5 %. La consoude concentre le potassium dans ses feuilles à un niveau 3 à 5 fois supérieur à la moyenne des végétaux. Le potassium est essentiel pour la fructification (formation des sucres, régulation osmotique, résistance au gel) — un paillis de consoude au pied des fruitiers est l’équivalent biologique d’un engrais potassique.
Calcium (Ca) : 2 à 3 % de la matière sèche. Comparable à la luzerne, supérieur à la plupart des feuillus.
Phosphore (P) : 0,5 à 0,9 % de la matière sèche. Modeste en valeur absolue, mais élevé pour une plante non légumineuse.
Magnésium (Mg) : 0,5 à 0,8 %. Important pour la photosynthèse (le magnésium est l’atome central de la chlorophylle).
Fer (Fe) : 150 à 250 ppm. Significatif.
Bore (B) : 25 à 35 ppm — un oligo-élément crucial pour la nouaison des fruits (fécondation du pollen) et souvent déficient dans les sols lessivés. La consoude est l’une des rares plantes à accumuler le bore en quantité appréciable.
Rapport C/N : 9 à 12 — très proche du compost mûr (10-15). Cela signifie que les feuilles de consoude, coupées et déposées au sol, se décomposent aussi vite que du compost, sans provoquer de faim d’azote. C’est une propriété unique parmi les plantes à forte biomasse : la paille a un C/N de 80-100, les feuilles mortes de chêne 40-60, le BRF 50-150. La consoude, malgré sa vigueur, produit un paillis qui se minéralise en 2 à 4 semaines.
Utilisation au jardin-forêt
Paillis de chop-and-drop. C’est l’usage principal. On coupe les feuilles de consoude 3 à 5 fois par an (d’avril à octobre, en laissant 4 à 6 semaines entre chaque coupe pour la repousse), et on les dépose directement au pied des arbres et arbustes de la guilde. Un pied de ‘Bocking 14’ bien installé produit 4 à 5 kg de matière fraîche par coupe, soit 15 à 25 kg par an — l’équivalent d’un seau de compost riche en potassium, livré directement sur place. C’est le « compostage in situ » le plus efficace qui existe : pas de transport, pas de retournement, pas de maturation — les feuilles sont coupées, déposées, et en trois semaines elles ont disparu, absorbées par le sol.
Activateur de compost. Ajoutées au tas de compost, les feuilles de consoude accélèrent la décomposition (elles fournissent de l’azote et du potassium aux micro-organismes) et enrichissent le compost final en potassium — le point faible habituel du compost de jardin.
Purin de consoude. Nous en détaillons la fabrication plus loin. Le purin de consoude est un engrais foliaire et un fertilisant du sol riche en potassium, phosphore et bore — idéal pour les tomates, les courges et les fruitiers en période de fructification.
❧ L’ortie — la mal-aimée indispensable
Botanique
La grande ortie (Urtica dioica L.) n’a pas besoin de présentation — tout jardinier la connaît, souvent à ses dépens. Plante vivace de la famille des Urticacées, elle forme des colonies denses par ses rhizomes traçants jaune vif, qui s’étendent horizontalement à 20-40 cm de profondeur sur plusieurs mètres. Sa tige carrée, dressée, atteint 60 à 150 cm et porte des feuilles opposées, cordiformes, à dents aiguës, couvertes de poils urticants contenant de l’histamine, de l’acétylcholine, de la sérotonine et de l’acide formique — un cocktail pharmacologique complexe qui explique la douleur cuisante de la piqûre.
L’ortie est une plante nitrophile — elle pousse préférentiellement sur les sols riches en azote (anciennes fumures, dépôts de matière organique, fossés, bordures de compost). Sa présence spontanée est un bio-indicateur fiable d’un sol riche en azote et en matière organique. Si l’ortie pousse chez vous, votre sol n’est pas pauvre — il est riche, et l’ortie vous le dit.
Composition minérale
L’ortie est l’accumulateur d’azote le plus efficace de la flore tempérée européenne :
Azote (N) : 3 à 5 % de la matière sèche — un chiffre considérable, comparable à la luzerne (3-4 %) et supérieur à la plupart des légumineuses herbacées. Cet azote n’est pas fixé de l’atmosphère (l’ortie n’est pas une légumineuse) — il est absorbé du sol par les racines et les rhizomes, puis concentré dans les feuilles. L’ortie est un « aspirateur à azote » qui extrait l’azote du sol profond et le rend disponible en surface via ses feuilles coupées.
Fer (Fe) : 200 à 600 ppm en matière sèche — l’une des plantes les plus riches en fer de la flore européenne. Ce fer est sous forme organique (chélaté par des acides organiques), donc plus facilement absorbé par le sol et par les plantes que le fer minéral inorganique.
Silicium (Si) : 1 à 2 % de la matière sèche. Inférieur à la prêle, mais significatif. Le silicium renforce les parois cellulaires des plantes voisines et augmente leur résistance aux maladies fongiques.
Calcium (Ca) : 2 à 4 % de la matière sèche.
Magnésium (Mg) : 0,5 à 1 %.
Potassium (K) : 2 à 3 % — moins que la consoude, mais substantiel.
Soufre (S) : 0,3 à 0,5 % — un élément souvent négligé mais essentiel pour la synthèse des acides aminés soufrés (cystéine, méthionine) et des composés de défense (glucosinolates).
Rapport C/N : 8 à 11 — encore plus bas que la consoude. Les feuilles d’ortie se décomposent en 10 à 15 jours au sol. C’est l’un des paillis les plus rapidement minéralisés qui existent — un coup de fouet azoté immédiat pour les plantes voisines.
Utilisation au jardin-forêt
Paillis azoté. Les feuilles d’ortie coupées (avant la floraison, quand la concentration en azote est maximale) et déposées au pied des arbres constituent un apport d’azote rapidement assimilable. C’est le complément parfait du paillis de consoude : la consoude apporte le potassium (fructification), l’ortie apporte l’azote (croissance végétative). Alterner les deux au cours de la saison — consoude en mai et juillet pour la fructification, ortie en juin et août pour la croissance — est une stratégie de fertilisation naturelle complète.
Purin d’ortie. Le plus ancien et le plus documenté des extraits végétaux fermentés. Nous en détaillons la fabrication plus loin.
Indicateur de sol. L’absence d’ortie dans un jardin-forêt installé depuis plusieurs années est un signal d’alarme : le sol est peut-être pauvre en azote ou en matière organique. La présence d’ortie, en revanche, est le signe d’un sol en bonne santé biologique.
❧ La prêle des champs — la gardienne de la silice
Botanique
La prêle des champs (Equisetum arvense L.) est un fossile vivant. Sa lignée remonte au Carbonifère, il y a 350 millions d’années, quand les ancêtres des prêles actuelles — les Calamites — formaient des forêts de 20 mètres de hauteur dans les marécages tropicaux qui allaient devenir nos gisements de charbon. La prêle moderne est un vestige miniature de ces géants : une plante de 30 à 60 cm, sans fleurs, sans graines, se reproduisant par spores (comme les fougères) et par un réseau de rhizomes souterrains d’une profondeur et d’une résistance extraordinaires.
Le système souterrain de la prêle est proprement stupéfiant. Les rhizomes peuvent descendre à 1,5 à 2 mètres de profondeur dans les sols meubles, et jusqu’à 5 mètres dans les sols alluviaux profonds. Des études sur les sols de construction urbaine ont trouvé des rhizomes de prêle perçant des couches de remblai compacté et d’asphalte. C’est pourquoi la prêle est considérée comme une « mauvaise herbe » quasiment impossible à éradiquer dans les jardins conventionnels — mais dans un jardin-forêt, cette ténacité souterraine est un atout.
Composition minérale — la silice au premier plan
La prêle est le champion toutes catégories de l’accumulation de silicium dans le règne végétal :
Silicium (Si) : 5 à 10 % de la matière sèche, sous forme d’acide silicique (H₄SiO₄) et de silice amorphe (SiO₂) déposée dans les parois cellulaires. C’est la concentration la plus élevée de tous les végétaux terrestres. Quand on fait brûler une tige de prêle, il reste un squelette de silice qui conserve la forme de la plante — les herboristes médiévaux l’utilisaient comme papier de verre pour polir les métaux (d’où le nom anglais horsetail — queue de cheval — et l’ancien nom français « herbe à récurer »).
Le silicium n’est pas traditionnellement classé parmi les nutriments essentiels des plantes (il ne fait pas partie des 16 éléments considérés comme indispensables), mais une littérature scientifique croissante démontre son rôle majeur dans la résistance aux maladies fongiques et aux insectes. Le silicium, absorbé par les racines sous forme d’acide silicique et transporté dans le xylème, se dépose dans les parois cellulaires de l’épiderme foliaire, formant une couche physique qui rend les feuilles plus difficiles à pénétrer pour les hyphes fongiques (Botrytis, Erysiphe, Venturia) et pour les stylets des insectes piqueurs-suceurs (pucerons, cicadelles). Des essais contrôlés (Fauteux et al., 2005, FEMS Microbiology Letters) ont montré que le silicium induit également des défenses systémiques chez les plantes — activation de gènes de défense, production de phytoalexines, renforcement de la lignification.
Calcium (Ca) : 1 à 2 % de la matière sèche.
Potassium (K) : 1 à 3 %.
Magnésium (Mg) : 0,3 à 0,8 %.
Manganèse (Mn) : 50 à 150 ppm — un oligo-élément cofacteur de nombreuses enzymes de la photosynthèse.
Utilisation au jardin-forêt
Décoction fongicide. C’est l’usage le plus précieux de la prêle. La décoction (et non le purin — la décoction est préparée par ébullition, pas par fermentation) de prêle est un traitement préventif contre les maladies fongiques (mildiou, oïdium, tavelure, rouille, botrytis) reconnu en agriculture biologique. Le silicium solubilisé par l’ébullition se dépose sur les feuilles des plantes traitées et renforce leur résistance. Ce n’est pas un fongicide curatif (il ne tue pas le champignon une fois installé) — c’est un éliciteur de défenses, une sorte de « vaccin végétal » qui prépare la plante à résister.
Paillis siliceux. Les tiges de prêle, coupées et déposées au sol, se décomposent lentement (C/N de 20-30, présence de silice insoluble) et libèrent progressivement leur silicium dans la zone racinaire. Elles sont moins intéressantes que la consoude ou l’ortie pour un apport rapide de nutriments, mais elles jouent un rôle de fond unique en enrichissant le sol en silicium.
Bio-indicateur de sol. La prêle des champs pousse dans les sols humides, compactés, à tendance hydromorphe. Sa présence massive indique un problème de drainage ou de tassement. Mais sa capacité à percer les sols compactés en fait aussi une plante décompactante — ses rhizomes ouvrent des galeries dans les sols durs, améliorant progressivement la structure.
❧ Le pissenlit — l’humble génie du calcium
Botanique
Le pissenlit (Taraxacum officinale F.H.Wigg., au sens large — le genre Taraxacum comprend en réalité des centaines de microespèces apomictiques) est probablement la plante la plus méprisée et la plus arrachée de la flore européenne. Chaque année, des millions de jardiniers s’acharnent à éliminer cette rosette de feuilles dentées (d’où le nom : dent de lion) et ses capitules jaune d’or qui se transforment en « horloges » duveteuses — les akènes à aigrette dispersés par le vent.
Et chaque année, le pissenlit revient. Parce que sous cette rosette anodine se cache une racine pivotante charnue, d’un diamètre de 1 à 3 cm, qui plonge à 1 à 2 mètres de profondeur. Arracher la rosette ne fait qu’éliminer le sommet de l’iceberg — la racine régénère une nouvelle rosette en quelques semaines. C’est cette racine profonde et indestructible qui fait du pissenlit un accumulateur dynamique de premier ordre.
Composition minérale
Calcium (Ca) : 2 à 4 % de la matière sèche foliaire — l’une des concentrations les plus élevées parmi les plantes herbacées tempérées. Le pissenlit « mine » le calcium des horizons profonds du sol (là où le calcaire se dissout lentement dans les eaux de percolation) et le ramène en surface dans ses feuilles. Dans les sols acides, où le calcium est particulièrement lessivé, le pissenlit est un correcteur naturel du pH de surface.
Potassium (K) : 3 à 5 % — comparable à la consoude, et souvent sous-estimé.
Fer (Fe) : 200 à 400 ppm.
Phosphore (P) : 0,5 à 1 %.
Manganèse (Mn) : 50 à 100 ppm.
Cuivre (Cu) : 10 à 20 ppm.
Zinc (Zn) : 30 à 60 ppm — un oligo-élément souvent déficient dans les sols calcaires, essentiel pour la synthèse des auxines (hormones de croissance).
Rapport C/N : 12 à 16 — décomposition assez rapide (3 à 5 semaines).
Utilisation au jardin-forêt
Ne pas l’arracher. C’est la première et la meilleure recommandation. Le pissenlit, en place dans un jardin-forêt, remplit ses fonctions d’accumulateur dynamique sans aucune intervention. Ses feuilles tombent au sol et se décomposent. Sa racine décompacte le sol. Sa floraison précoce (mars-mai) nourrit les premiers pollinisateurs à un moment crucial du printemps. Ses graines nourrissent les chardonnerets. Le pissenlit est un allié complet — le seul tort qu’on puisse lui faire est de le considérer comme un ennemi.
Paillis riche en calcium. Si le pissenlit est abondant, on peut faucher les rosettes et les déposer au pied des arbres comme paillis. L’apport en calcium est particulièrement bienvenu pour les fruitiers à noyaux (cerisier, prunier), dont les fruits consomment beaucoup de calcium pour former leur noyau.
Décompactage biologique. La racine pivotante du pissenlit fonctionne comme un foret vivant. En poussant dans le sol, elle exerce une pression latérale qui ouvre des fissures dans les horizons compactés. Quand la racine meurt (naturellement ou par arrachage), elle laisse un canal vertical qui facilite l’infiltration de l’eau et la pénétration des racines des plantes voisines. Un sol « infesté » de pissenlits est un sol en cours de réparation — les pissenlits sont les thérapeutes, pas la maladie.
❧ Les autres accumulateurs dynamiques remarquables
Outre les quatre piliers, d’autres plantes méritent une place dans la guilde d’accumulation du jardin-forêt.
L’achillée millefeuille (Achillea millefolium) accumule le potassium (3-4 % MS), le phosphore (0,5-0,9 %) et le cuivre (15-25 ppm). Sa floraison en ombelles plates attire massivement les syrphes et les guêpes parasitoïdes — elle combine la fonction d’accumulateur dynamique et d’attracteur d’auxiliaires.
Le trèfle blanc (Trifolium repens) cumule la fixation biologique de l’azote (Rhizobium) et l’accumulation de phosphore (0,4-0,7 %) et de calcium (1,5-2,5 %). C’est le couvre-sol idéal du jardin-forêt — fixateur d’azote, accumulateur de minéraux, mellifère et résistant au piétinement.
La bardane (Arctium lappa) possède une racine pivotante de 50 à 90 cm qui accumule le fer (300-500 ppm), le potassium (3-4 %) et l’inuline (un fructane prébiotique). Ses grandes feuilles font un paillis épais et nutritif.
Le plantain lancéolé (Plantago lanceolata) accumule le calcium (2-3 %), le silicium (1-2 %) et le zinc (40-70 ppm). C’est un couvre-sol robuste qui tolère le piétinement intense.
La chicorée sauvage (Cichorium intybus) plonge sa racine pivotante à 1-2 mètres et accumule le potassium (3-5 %) et le calcium (2-3 %). Sa floraison bleue prolongée (juin-octobre) nourrit les pollinisateurs en plein été.
❧ Fabrication des purins et extraits fermentés
Les accumulateurs dynamiques ne livrent pas seulement leurs minéraux par le paillis. On peut extraire et concentrer leurs principes actifs sous forme de préparations liquides — les purins, les décoctions et les infusions — qui servent d’engrais foliaires, de biostimulants et de traitements phytosanitaires préventifs.
Le purin (extrait fermenté)
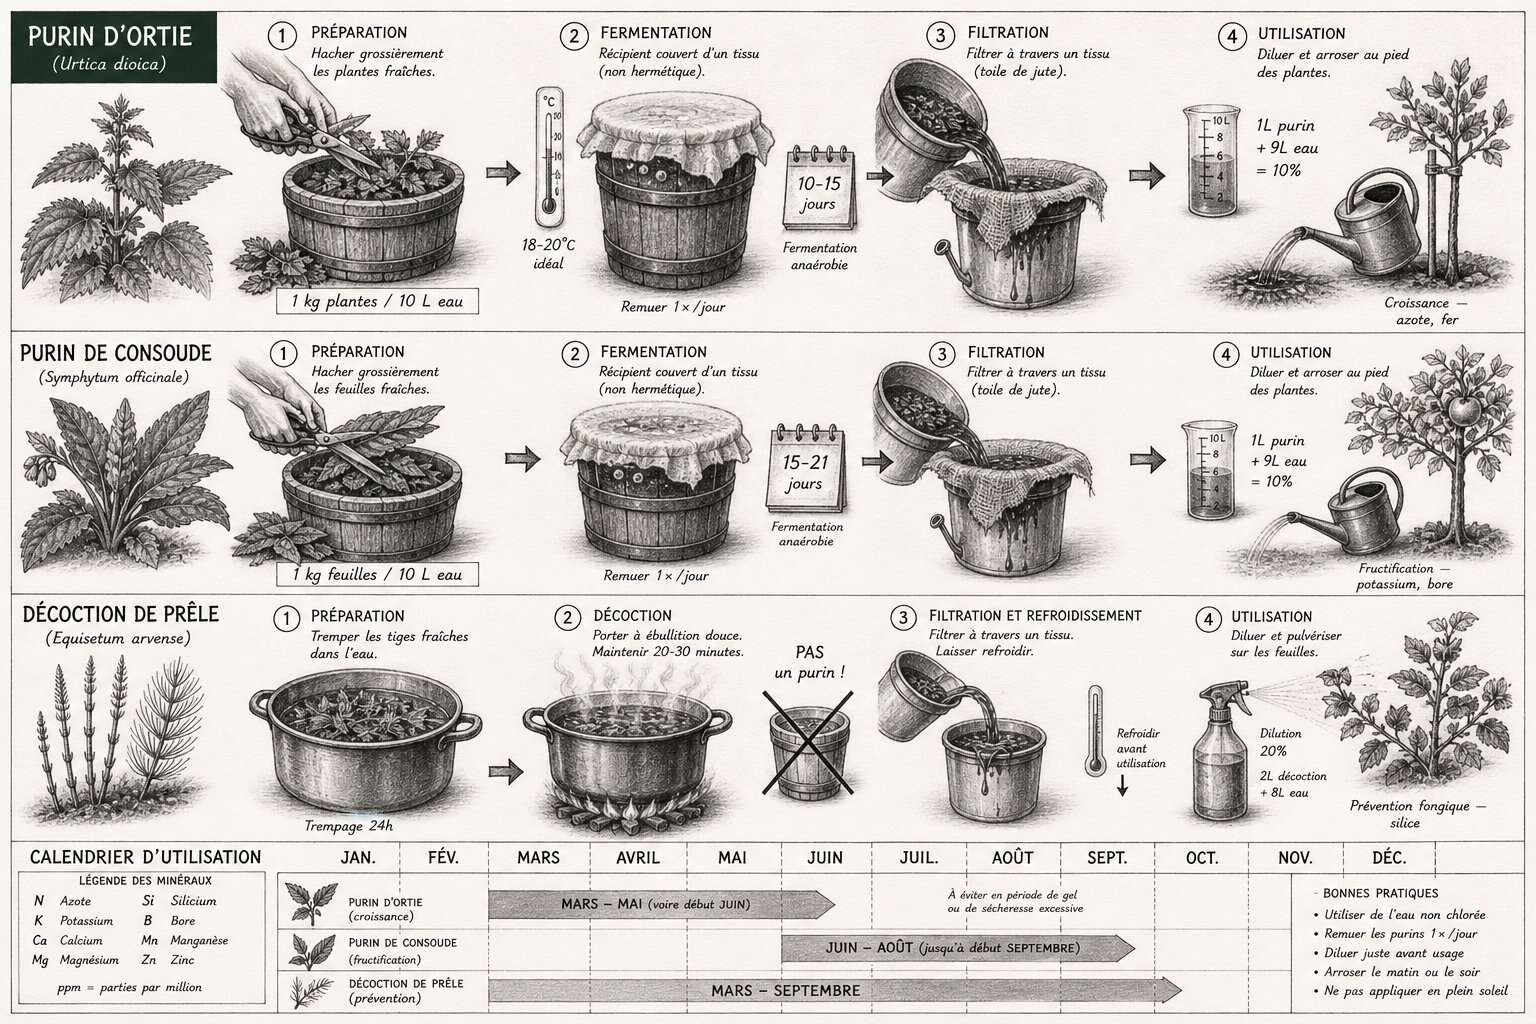
Le purin est le résultat d’une fermentation anaérobie de plantes fraîches dans l’eau. Le terme est trompeur — il n’a rien à voir avec le purin animal. C’est une macération contrôlée qui solubilise les minéraux et les composés organiques des plantes dans un milieu aqueux.
Principe général de fabrication :
1. Récolte. Couper les plantes fraîches (pas séchées — les plantes fraîches contiennent les enzymes et les micro-organismes qui pilotent la fermentation). Utiliser la plante entière (feuilles et tiges), récoltée de préférence le matin, avant la floraison pour maximiser la concentration en nutriments.
2. Hachage grossier. Couper les plantes en morceaux de 5 à 10 cm pour augmenter la surface de contact avec l’eau.
3. Macération. Placer les plantes dans un récipient non métallique (seau en plastique, fût en bois, bac en terre cuite). Le métal réagit avec les acides organiques de la fermentation et altère la qualité du purin. Couvrir d’eau de pluie (ou d’eau du robinet décantée 24 heures pour éliminer le chlore). Proportion : 1 kg de plantes fraîches pour 10 litres d’eau.
4. Fermentation. Couvrir le récipient d’un tissu (pas d’un couvercle hermétique — la fermentation produit du CO₂ qui doit pouvoir s’échapper). Placer à l’ombre, à température ambiante (15-25 °C). Remuer une fois par jour pendant toute la durée de la fermentation.
5. Observation. La surface de l’eau mousse pendant les premiers jours (fermentation active — production de CO₂). Quand la mousse disparaît et que le liquide ne produit plus de bulles quand on le remue, la fermentation est terminée. Le purin est prêt.
6. Filtration. Filtrer au travers d’un tissu grossier (toile de jute, vieux drap) pour retirer les débris végétaux. Les résidus vont au compost.
7. Conservation. Le purin filtré se conserve 2 à 3 mois dans un récipient fermé, à l’ombre et au frais. Au-delà, il perd progressivement son efficacité.
Purin d’ortie
Durée de fermentation : 10 à 15 jours à 18-20 °C (plus rapide en été, plus lent en automne).
Odeur : forte, ammoniacale, désagréable — c’est normal (dégagement d’ammoniac et d’acides gras volatils). L’odeur est le signe d’une fermentation réussie. Si le purin ne sent rien, la fermentation n’a pas eu lieu (eau trop froide, plantes trop sèches, ou chlore résiduel).
Composition : riche en azote (sous forme ammoniacale NH₄⁺ et organique), en fer chélaté, en acides aminés et en phytohormones (cytokinines, auxines produites par les micro-organismes de la fermentation).
Utilisation en arrosage au sol : diluer à 10 % (1 litre de purin pour 9 litres d’eau). Arroser au pied des plantes, sur sol humide. Le purin d’ortie est un stimulateur de croissance (effet azoté + phytohormones) — idéal pour les jeunes plantations, les légumes-feuilles et les arbres en phase de croissance végétative.
Utilisation en pulvérisation foliaire : diluer à 5 % (0,5 litre pour 9,5 litres d’eau). Pulvériser sur le feuillage par temps couvert (pas en plein soleil — risque de brûlure). Le purin d’ortie foliaire stimule la photosynthèse, renforce les défenses de la plante et fournit un apport rapide en micronutriments (fer, manganèse).
Purin de consoude
Durée de fermentation : 15 à 21 jours à 18-20 °C — un peu plus longue que l’ortie (les feuilles de consoude sont plus épaisses et plus riches en mucilages).
Odeur : très forte, rappelant l’ammoniaque et le chou fermenté. Encore pire que le purin d’ortie. Un bon purin de consoude est un purin qui fait fuir les voisins.
Composition : extrêmement riche en potassium (4-6 g/L dans le purin non dilué), en phosphore et en bore. Pauvre en azote par rapport au purin d’ortie — c’est un engrais de fructification, pas de croissance.
Utilisation en arrosage au sol : diluer à 10 %. Arroser au pied des fruitiers, des tomates, des courges et de toutes les plantes en phase de floraison et de fructification. Le potassium favorise la formation des sucres, la coloration des fruits, la résistance au gel et la conservation après récolte.
Utilisation en pulvérisation foliaire : diluer à 5 %. Le purin de consoude foliaire est un engrais de correction rapide pour les carences en potassium (feuilles à bords jaunissants puis nécrotiques, fruits petits et peu sucrés).
Décoction de prêle
Attention : pour la prêle, on ne prépare pas un purin (fermentation) mais une décoction (ébullition). La raison est biochimique : la silice contenue dans la prêle est sous forme insoluble (SiO₂ amorphe) à température ambiante. Il faut une ébullition prolongée pour solubiliser la silice et la rendre assimilable. Un purin de prêle (macération à froid) libère très peu de silice — il est inefficace.
Fabrication :
1. Récolter les tiges stériles de prêle (les tiges vertes et ramifiées de l’été, pas les tiges fertiles du printemps qui portent les strobiles). On peut aussi utiliser de la prêle séchée — contrairement aux purins, la décoction fonctionne avec des plantes sèches.
2. Faire tremper 100 g de prêle fraîche (ou 20 g de prêle séchée) dans 1 litre d’eau pendant 24 heures.
3. Porter à ébullition douce et maintenir 20 à 30 minutes à petits bouillons. Ne pas faire bouillir violemment (les composés organiques se dégradent à haute température).
4. Laisser refroidir, filtrer.
Utilisation : diluer à 20 % (200 ml pour 1 litre d’eau). Pulvériser sur le feuillage des fruitiers, des rosiers et des cucurbitacées en prévention des maladies fongiques (mildiou, oïdium, tavelure, rouille). Traiter tous les 10 à 15 jours de mars à septembre, et systématiquement après chaque pluie prolongée (la pluie lave le dépôt de silice sur les feuilles). La décoction de prêle n’est pas un traitement curatif — elle ne guérit pas une maladie déclarée. C’est un traitement préventif qui rend les feuilles plus résistantes à la pénétration des spores fongiques.
Association des purins — le cocktail complet
Les trois préparations sont complémentaires et peuvent être utilisées en alternance ou en mélange :
Printemps (mars-mai) : purin d’ortie en arrosage (stimulation de la croissance) + décoction de prêle en pulvérisation (prévention fongique dès le débourrement).
Été (juin-août) : purin de consoude en arrosage (fructification, potassium) + décoction de prêle en pulvérisation (maintien de la protection fongique).
Automne (septembre-octobre) : purin de consoude en arrosage (renforcement des réserves avant l’hiver, potassium pour la résistance au gel).
On peut mélanger le purin d’ortie et le purin de consoude (50/50) pour un engrais complet « croissance + fructification ». Ne pas mélanger les purins avec la décoction de prêle — la fermentation des purins altère la silice solubilisée de la décoction.
❧ Les limites du concept — ce que les accumulateurs dynamiques ne font pas
Le concept d’accumulateur dynamique, aussi séduisant soit-il, mérite quelques nuances scientifiques.
Les données quantitatives sont incomplètes. La plupart des listes d’accumulateurs dynamiques circulant dans la littérature permaculturelle proviennent d’un nombre restreint de sources (Kourik, 1986 ; Jacke & Toensmeier, 2005), qui elles-mêmes se fondent sur des analyses foliaires réalisées dans des conditions spécifiques (type de sol, stade phénologique, méthode d’analyse). Les concentrations minérales d’une même plante varient fortement selon le sol, le climat, la saison et l’âge du tissu analysé. Une consoude poussant en sol riche en potassium contiendra davantage de potassium qu’une consoude en sol pauvre — elle accumule ce qu’il y a à accumuler.
L’accumulation n’est pas une création. Les accumulateurs dynamiques ne créent pas de minéraux — ils les déplacent. Si votre sol est fondamentalement pauvre en potassium (sols sableux très acides, par exemple), la consoude n’inventera pas le potassium qui n’existe pas. Elle puisera dans les réserves profondes, et si ces réserves sont épuisées, elle accumulera moins. Le système fonctionne à long terme dans les sols ayant une roche-mère raisonnablement riche en minéraux — ce qui est le cas de la plupart des sols tempérés européens — mais pas dans les sols extrêmement pauvres (sables purs, latérites).
Le transfert de surface est réel mais modeste en valeur absolue. Un pied de consoude qui produit 20 kg de feuilles fraîches par an apporte environ 120 à 170 g de potassium en surface — soit l’équivalent d’une poignée d’engrais potassique commercial. C’est suffisant pour nourrir un arbre fruitier en potassium si le paillis est déposé directement dans la zone racinaire, mais ce n’est pas un substitut aux amendements massifs pour corriger une carence sévère. L’intérêt des accumulateurs est dans la régularité et la durabilité de l’apport — année après année, sans achat ni transport — et dans la forme organique des nutriments, qui les rend moins lessivables que les formes minérales.
❧ Installer les accumulateurs dans la guilde
Les accumulateurs dynamiques ne sont pas des plantes isolées — ils font partie intégrante de la guilde qui entoure chaque arbre du jardin-forêt. Voici comment les positionner.
La consoude : 3 à 5 pieds en arc de cercle, à 1 à 2 mètres du tronc, côté nord ou est (elle tolère la mi-ombre mais produit davantage de biomasse avec quelques heures de soleil). Espacer les pieds de 60 à 80 cm. Planter par division de racines (un tronçon de 5 cm de racine suffit) au printemps ou à l’automne. La production est faible la première année, pleine la deuxième.
L’ortie : en bordure de guilde ou en zone dédiée (« coin à ortie ») — ses rhizomes traçants la rendent envahissante si on la mélange aux autres plantes. Un carré de 2 × 2 m, délimité par une barrière anti-rhizome enterrée (tôle, planche de 40 cm), fournit assez d’ortie pour tout un petit jardin-forêt. Ou la laisser s’installer spontanément en lisière, dans les zones riches en azote.
La prêle : elle s’installe généralement toute seule dans les zones humides et compactées du jardin. Ne pas lutter contre elle — la tolérer, voire l’encourager dans les zones à mauvais drainage. La récolter pour les décoctions. Si elle est absente et que vous souhaitez en avoir, elle se transplante facilement par rhizomes — mais attention, elle est ensuite inexpugnable.
Le pissenlit : il est déjà là. Ne l’arrachez plus. Laissez-le fleurir au printemps pour les pollinisateurs, puis fauchez les rosettes en mai-juin si vous voulez utiliser les feuilles en paillis. Il repoussera. Il repousse toujours.
❧ Synthèse — le système circulaire de fertilité
Le jardin-forêt nourri par ses accumulateurs dynamiques fonctionne comme un système circulaire fermé. Les nutriments suivent un cycle vertical perpétuel : lessivés en profondeur par la pluie, absorbés par les racines profondes des accumulateurs, concentrés dans leurs feuilles, restitués en surface par le paillis ou les purins, absorbés par les racines superficielles des arbres fruitiers et des cultures, puis lessivés à nouveau — et le cycle recommence.
Ce cycle ne coûte rien. Il ne consomme aucun intrant externe. Il ne dépend d’aucun fournisseur. Il fonctionne depuis des millions d’années dans chaque forêt de la planète. Les quatre plantes qui le pilotent — consoude, ortie, prêle, pissenlit — sont gratuites, indestructibles et extraordinairement productives.
Il suffit de les laisser faire. Ou plutôt, il suffit de cesser de les combattre — de cesser d’arracher les pissenlits, de désherber les orties, de traiter la prêle au glyphosate. Ces plantes que le jardinier conventionnel considère comme des ennemies sont les alliées les plus précieuses du jardin-forêt. Elles sont le système de fertilisation intégré, autonome et gratuit que la nature met à notre disposition depuis toujours. Il ne nous reste qu’à dire oui.
❧ Bibliographie
Kourik, R. (2008). Designing and Maintaining Your Edible Landscape Naturally. Metamorphic Press, 370 p. — Données quantitatives originales sur l’accumulation dynamique, systèmes racinaires, analyses foliaires.
Jacke, D. & Toensmeier, E. (2005). Edible Forest Gardens, vol. 2. Chelsea Green Publishing, 654 p. — Fiches détaillées par espèce avec fonctions d’accumulation, profondeur racinaire, compatibilités.
Hills, L.D. (1976). Comfrey: Past, Present and Future. Faber & Faber, 253 p. — L’ouvrage de référence sur ‘Bocking 14’, analyses foliaires et essais agronomiques.
Bertrand, B. & Collaert, J.-P. & Petiot, E. (2004). Purin d’ortie et Cie — Les plantes au secours des plantes. Éditions de Terran, 112 p. — Guide pratique francophone de référence sur les purins et les extraits végétaux.
Fauteux, F. et al. (2005). Silicon and plant disease resistance against pathogenic fungi. FEMS Microbiology Letters, 249 : 1-6.
Epstein, E. (1999). Silicon. Annual Review of Plant Physiology and Plant Molecular Biology, 50 : 641-664. — L’article fondateur sur le rôle du silicium dans la physiologie végétale.
Hinsinger, P. (2001). Bioavailability of soil inorganic P in the rhizosphere as affected by root-induced chemical changes. Plant and Soil, 237 : 173-195.
Weiss, E.A. (2002). Spice Crops. CABI Publishing. — Données sur les compositions minérales comparées de plantes herbacées.
Lowenfels, J. & Lewis, W. (2010). Teaming with Microbes. Timber Press, 220 p. — Interactions plantes-sol-microbiologie.
Ducerf, G. (2010). L’Encyclopédie des plantes bio-indicatrices, vol. 1. Promonature, 351 p. — Référence francophone sur les plantes comme indicatrices de la qualité du sol.