Les plantes ne peuvent pas fuir. Enracinées, immobiles, elles subissent les assauts des herbivores, des insectes, des champignons et des bactéries sans pouvoir se déplacer. Leur seule défense est chimique : elles synthétisent un arsenal de molécules — oxalates, lectines, saponines, tanins, acide phytique, glycosides cyanogénétiques, furanocoumarines, goitrogènes — qui découragent les prédateurs, chélatent les minéraux, précipitent les protéines ou perturbent la digestion. En nutrition, on appelle ces molécules des « antinutriments » : des substances qui réduisent l’absorption ou l’utilisation des nutriments. Le terme est trompeur. Il suggère que ces molécules sont uniformément nocives — alors qu’à faibles doses, beaucoup d’entre elles exercent des effets bénéfiques : les tanins sont antioxydants, les saponines hypocholestérolémiantes, l’acide phytique anticancéreux, les lectines immunostimulantes. Le problème n’est jamais la molécule en soi — c’est la dose, le mode de préparation et le contexte alimentaire. Cette monographie explore les principaux antinutriments des plantes sauvages européennes : leur nature chimique, leur mécanisme d’action, les espèces qui en contiennent, les risques réels, les méthodes ancestrales pour les neutraliser, et le paradoxe fascinant de molécules qui sont à la fois des poisons et des médicaments.
II. Les oxalates : oseille, pourpier, chénopode
III. Oxalates et calculs rénaux
IV. Les lectines : les agglutinines végétales
V. Neutraliser les lectines par la cuisson
VI. Les saponines : mousse, amertume et cholestérol
VII. Les tanins : du gland au vin rouge
VIII. Le gland de chêne : un aliment à détaniser
IX. L’acide phytique : le chélateur de minéraux
X. Les glycosides cyanogénétiques
XI. Les furanocoumarines : brûlures solaires végétales
XII. Les goitrogènes des Brassicacées
XIII. Alcaloïdes et solanine
XIV. L’hormèse : le paradoxe dose-réponse
XV. Techniques ancestrales de neutralisation
XVI. Combiner les aliments : les parades nutritionnelles
XVII. Précautions et populations à risque
XVIII. Synthèse
I. Antinutriments : définition et logique évolutive
Un antinutriment est une substance naturellement présente dans un aliment qui réduit l’absorption, la digestion ou l’utilisation d’un ou plusieurs nutriments. Le terme a été introduit en science de la nutrition dans les années 1960 pour désigner les composés végétaux qui interféraient avec les objectifs de l’alimentation animale industrielle — maximiser la prise de poids des animaux d’élevage en minimisant les pertes nutritionnelles.
Du point de vue de la plante, ces molécules ne sont pas des « antinutriments » — elles sont des armes de défense. Les oxalates forment des cristaux tranchants (raphides) qui blessent la bouche des herbivores. Les tanins précipitent les protéines salivaires et donnent une sensation d’astringence désagréable qui dissuade la consommation. Les lectines perturbent la muqueuse digestive des insectes. Les saponines lysent les membranes cellulaires des parasites. Les glycosides cyanogénétiques libèrent du cyanure quand le tissu végétal est broyé — un signal toxique immédiat pour le prédateur.
Ces défenses chimiques sont le produit de centaines de millions d’années de coévolution entre les plantes et leurs prédateurs. Les herbivores ont développé des contre-mesures (enzymes de détoxification hépatique, microbiote spécialisé, comportements d’évitement), et les plantes ont répondu par une complexification de leur arsenal chimique. Le résultat est un équilibre dynamique : la plupart des antinutriments sont tolérables à faibles doses, nocifs à fortes doses, et parfois bénéfiques à doses intermédiaires — un phénomène appelé hormèse.
L’espèce humaine a coévolué avec ces molécules pendant deux millions d’années de cueillette. Nos ancêtres consommaient des plantes sauvages riches en antinutriments — et ils ont développé des techniques de neutralisation (cuisson, trempage, fermentation, germination, lixiviation) et des stratégies de combinaison alimentaire (associer une source de vitamine C à une source de fer végétal pour contrer les phytates) qui font partie du patrimoine culinaire universel. Comprendre les antinutriments, ce n’est pas avoir peur des plantes — c’est comprendre pourquoi nos ancêtres cuisinaient comme ils le faisaient.
II. Les oxalates : oseille, pourpier, chénopode
L’acide oxalique (C₂H₂O₄) est le plus simple des acides dicarboxyliques. Dans les plantes, il existe sous deux formes : l’oxalate soluble (oxalate de potassium, oxalate de sodium), qui se dissout dans l’eau et est absorbé par le tube digestif, et l’oxalate insoluble (oxalate de calcium), qui forme des cristaux microscopiques (raphides, druses, prismes) dans les tissus végétaux et n’est pas absorbé.
L’oxalate soluble est l’antinutriment le plus problématique. Une fois absorbé, il se lie au calcium dans le sang et dans les urines pour former de l’oxalate de calcium — un sel insoluble qui constitue 80 % des calculs rénaux humains. L’oxalate soluble réduit aussi la biodisponibilité du calcium alimentaire : le calcium lié à l’oxalate dans le tube digestif n’est plus absorbable.
Les plantes sauvages les plus riches en oxalates sont :
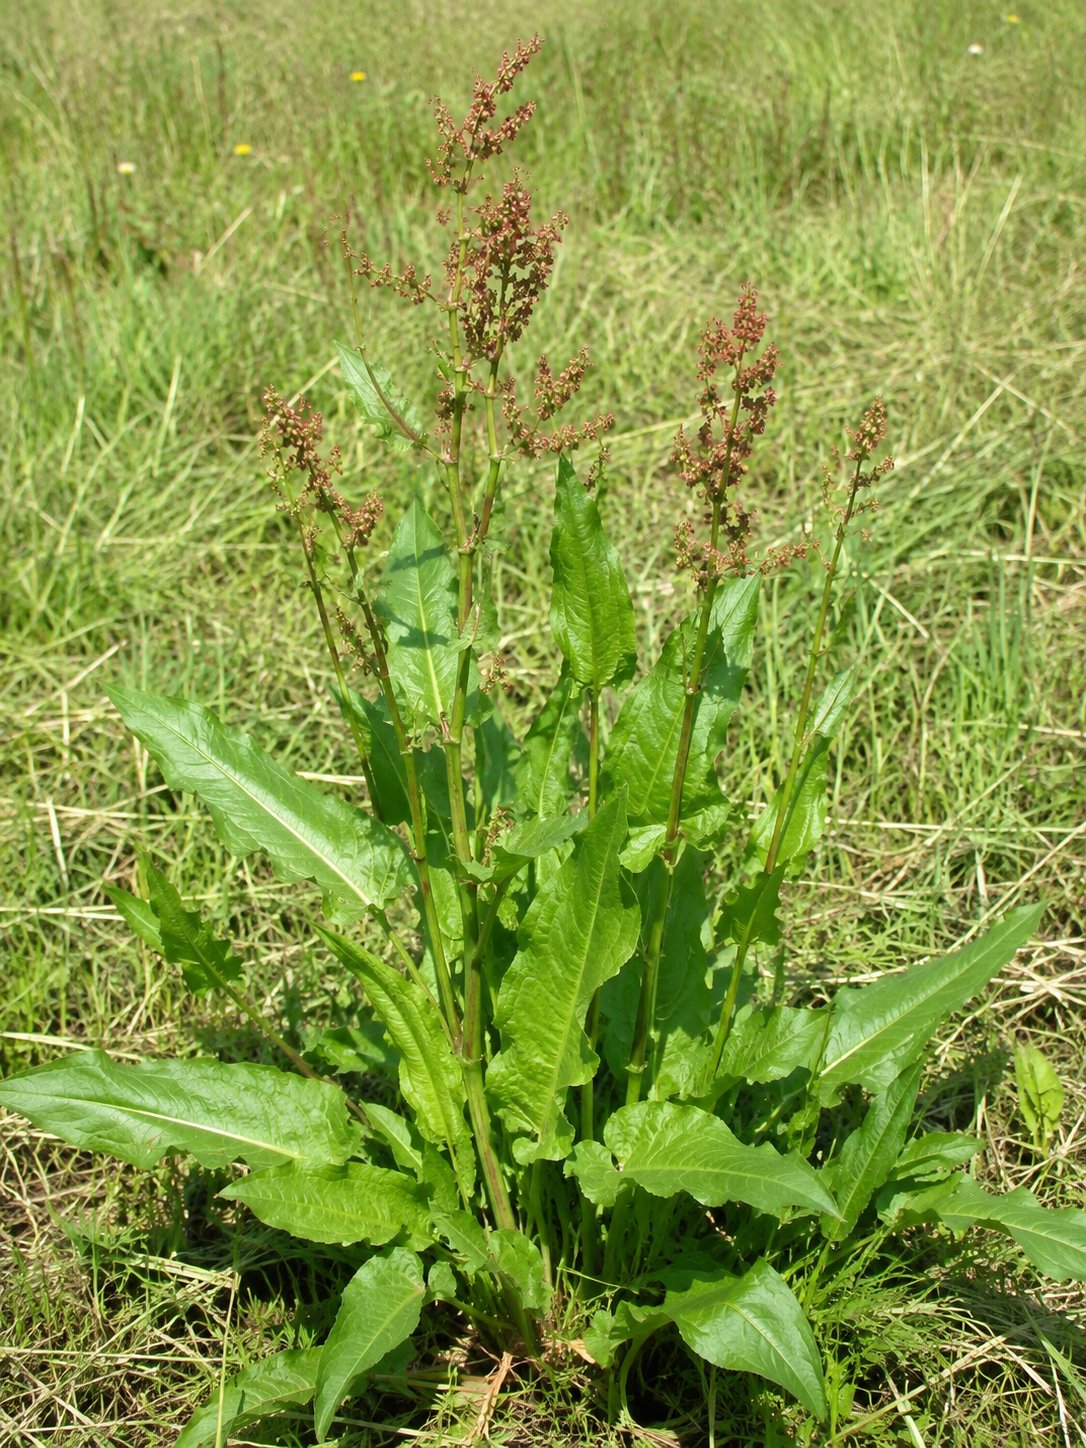
— Oseille (Rumex acetosa) : 500 à 1 000 mg/100 g — c’est elle qui donne le goût acidulé caractéristique
— Petite oseille (Rumex acetosella) : 300 à 700 mg/100 g
— Pourpier (Portulaca oleracea) : 900 à 1 500 mg/100 g — le plus riche, mais la majorité est sous forme d’oxalate insoluble (oxalate de calcium), donc peu problématique
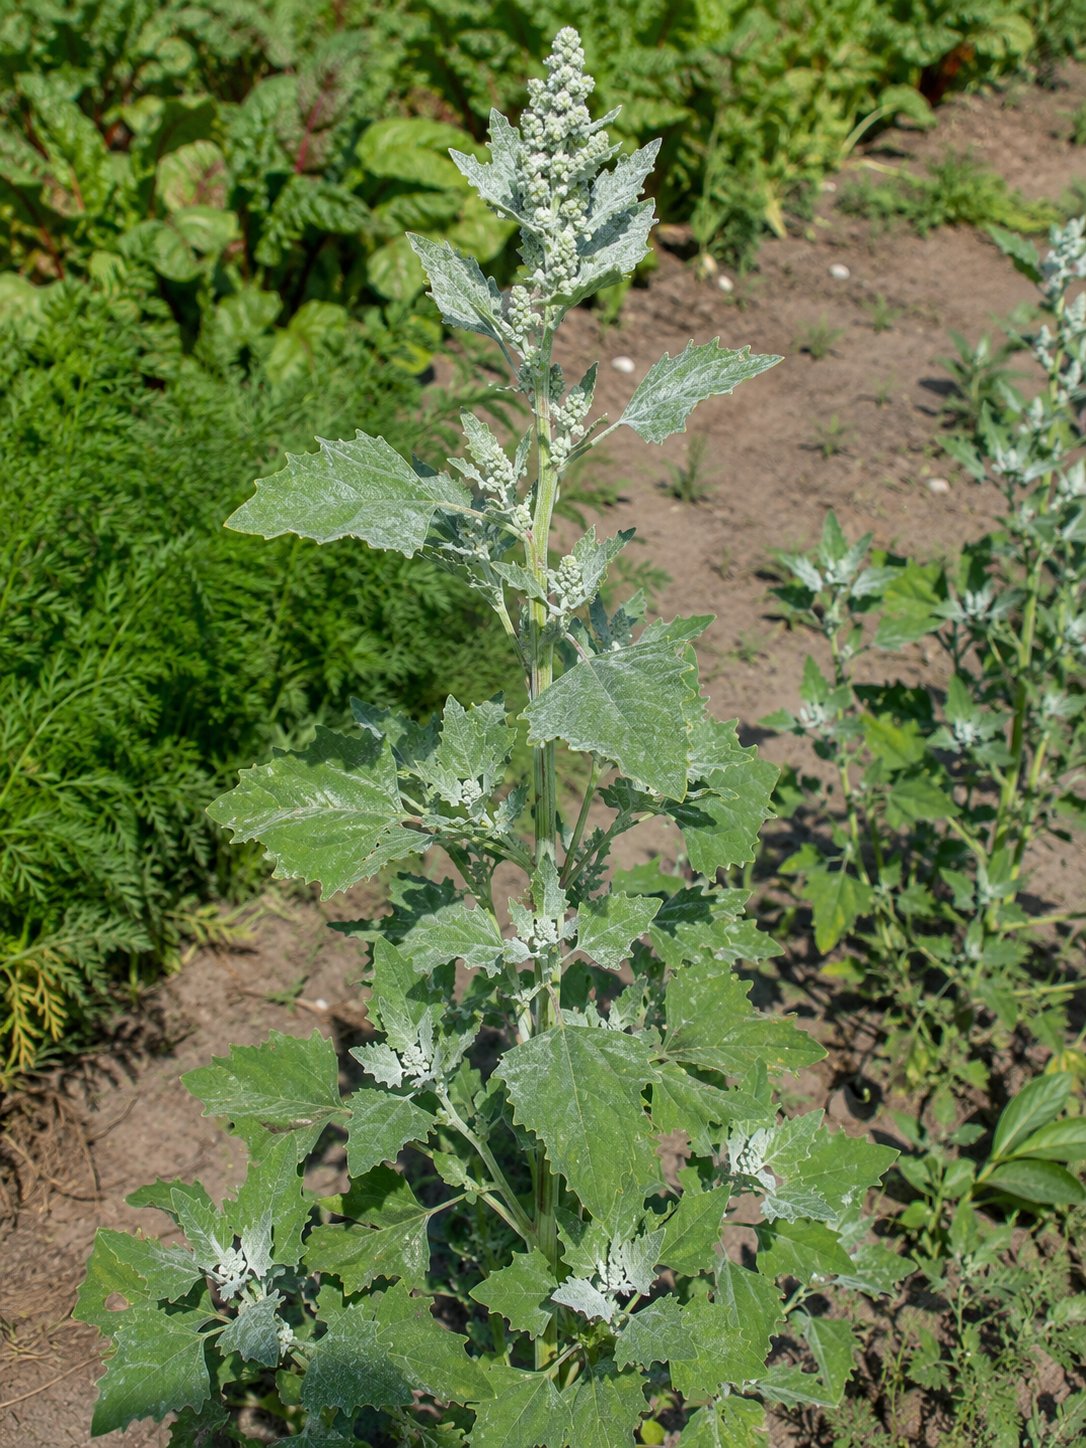
— Chénopode blanc (Chenopodium album) : 800 à 1 200 mg/100 g
— Épinard (Spinacia oleracea, cultivé) : 600 à 900 mg/100 g
— Rhubarbe (feuilles) : 500 à 800 mg/100 g — les feuilles de rhubarbe sont considérées comme toxiques précisément en raison de leur teneur en oxalates
À titre de comparaison, la laitue contient 5 à 15 mg/100 g et la carotte 5 à 10 mg/100 g — des teneurs négligeables.
Le rôle biologique de l’acide oxalique dans la plante est multiple : régulation du calcium intracellulaire, protection contre les herbivores (les raphides d’oxalate de calcium blessent les muqueuses buccales), détoxification des métaux lourds (l’oxalate chélate l’aluminium et le cadmium dans les sols acides) et équilibrage du pH cellulaire.
III. Oxalates et calculs rénaux
Les calculs rénaux d’oxalate de calcium touchent 5 à 10 % de la population européenne au cours de la vie, avec un taux de récidive de 50 % à 5 ans. L’oxalate urinaire provient de deux sources : l’oxalate alimentaire (20 à 40 % de l’oxalate urinaire) et l’oxalate endogène synthétisé par le foie à partir de la glycine et de l’acide ascorbique (60 à 80 %).
La contribution de l’alimentation est donc significative mais non majoritaire. Chez les personnes prédisposées aux calculs (hyperoxalurie, hypercalciurie, antécédents de calculs), la réduction de l’apport en oxalates alimentaires est recommandée : limiter la consommation d’oseille, de pourpier, de chénopode et d’épinards, ou les combiner avec des aliments riches en calcium (fromage, yaourt) qui piègent l’oxalate dans le tube digestif sous forme d’oxalate de calcium insoluble avant qu’il ne soit absorbé.
Chez les personnes sans antécédents de calculs, la consommation occasionnelle de plantes riches en oxalates ne pose aucun problème. L’organisme sain élimine l’oxalate par voie urinaire sans difficulté, à condition que l’hydratation soit suffisante (≥2 L d’eau par jour) et que l’apport en calcium soit adéquat (≥800 mg/jour).
La cuisson à l’eau réduit la teneur en oxalates de 30 à 50 % — les oxalates solubles passent dans l’eau de cuisson. Si l’on jette l’eau de cuisson (blanchiment), on élimine une proportion importante des oxalates. C’est la raison traditionnelle pour laquelle l’oseille et le chénopode sont classiquement consommés cuits plutôt que crus.
Un point souvent méconnu : la vitamine C à très hautes doses (>1 000 mg/jour en supplémentation) est partiellement métabolisée en oxalate endogène. Les méga-doses de vitamine C synthétique peuvent donc augmenter le risque de calculs — ce qui n’est pas le cas de la vitamine C alimentaire aux doses normales.
IV. Les lectines : les agglutinines végétales
Les lectines sont des protéines ou glycoprotéines qui se lient de manière spécifique et réversible à certains glucides (sucres) présents à la surface des cellules. Le terme vient du latin legere (choisir) — les lectines « choisissent » leur cible glucidique avec une précision remarquable, comparable à celle d’un anticorps.
Dans les plantes, les lectines remplissent des fonctions de défense contre les insectes (elles se lient aux glycoprotéines de la muqueuse digestive des insectes et perturbent l’absorption des nutriments), de reconnaissance des bactéries symbiotiques (les lectines des racines de légumineuses reconnaissent les rhizobiums fixateurs d’azote) et de stockage protéique dans les graines.
Chez l’humain, certaines lectines végétales peuvent se lier aux glycoprotéines de la muqueuse intestinale et provoquer des lésions épithéliales, une augmentation de la perméabilité intestinale, une agglutination des globules rouges (hémagglutination) et des symptômes digestifs (nausées, vomissements, diarrhée).
La lectine la plus toxique est la phytohémagglutinine (PHA) du haricot rouge cru (Phaseolus vulgaris). Quatre à cinq haricots rouges crus suffisent à provoquer des vomissements violents dans les 1 à 3 heures suivant l’ingestion. La PHA agglutine les globules rouges, endommage la muqueuse intestinale et provoque une réponse inflammatoire intense. Les cas d’intoxication sont bien documentés — ils surviennent typiquement lorsque des haricots ont été cuits à basse température (mijoteuse, slow-cooker à moins de 80°C), insuffisante pour dénaturer la PHA.
Parmi les plantes sauvages européennes, les gesses (Lathyrus spp.) contiennent des lectines et un acide aminé neurotoxique (β-ODAP, acide β-N-oxalyl-L-α,β-diaminopropionique) responsable du lathyrisme — une paralysie spastique irréversible des membres inférieurs qui survient après consommation prolongée et exclusive de graines de gesse. Le lathyrisme a sévi pendant les famines en Europe, en Inde et en Éthiopie, lorsque les populations n’avaient plus que des graines de gesse à manger.
Le gui (Viscum album) contient des lectines particulièrement puissantes (viscumine, lectine ML-I) qui sont cytotoxiques pour les cellules tumorales — ce qui a conduit à l’utilisation d’extraits de gui en médecine complémentaire anticancéreuse (Iscador®), un usage controversé mais largement pratiqué en Allemagne et en Suisse.
V. Neutraliser les lectines par la cuisson
Les lectines sont des protéines. Comme toute protéine, elles sont dénaturées par la chaleur — leur structure tridimensionnelle se déploie et elles perdent leur capacité de liaison aux glucides. La cuisson est le moyen universel de neutraliser les lectines.
La température critique est d’environ 100°C pendant 10 minutes. Une ébullition franche pendant 10 à 15 minutes détruit 95 à 99 % des lectines du haricot rouge. En revanche, une cuisson à 80°C (mijoteuse) peut paradoxalement augmenter la toxicité des lectines en les libérant de la matrice alimentaire sans les dénaturer complètement.
Le trempage préalable des graines de légumineuses (8 à 12 heures) réduit les lectines de 30 à 50 % — jeter l’eau de trempage est essentiel. La germination réduit les lectines de 50 à 75 % (les enzymes de la graine en germination dégradent les protéines de réserve, dont les lectines). La fermentation réduit les lectines de 70 à 95 % (les bactéries lactiques produisent des protéases qui hydrolysent les lectines).
En pratique, pour les plantes sauvages européennes, le risque lié aux lectines est très faible. Les graines de légumineuses sauvages (gesses, vesces) ne sont pas consommées crues. Les feuilles et les racines des plantes sauvages couramment consommées (ortie, pissenlit, plantain, chénopode) contiennent des lectines en quantités négligeables, détruites par la cuisson normale. Le risque lectinique est essentiellement un problème de légumineuses insuffisamment cuites — pas de cueillette sauvage.
VI. Les saponines : mousse, amertume et cholestérol
Les saponines sont des glycosides tensioactifs — des molécules composées d’une partie lipophile (aglycone triterpénoïde ou stéroïdien) et d’une partie hydrophile (chaînes de sucres). Cette structure amphiphile leur confère des propriétés de savon naturel : agitées dans l’eau, elles forment une mousse abondante et persistante. Le nom vient du latin sapo, savon.
Dans la plante, les saponines défendent contre les herbivores (goût amer), les insectes (lyse des membranes cellulaires des larves) et les champignons pathogènes (activité antifongique). Chez l’humain, elles possèdent un double visage.
À fortes doses, les saponines sont toxiques : elles lysent les membranes des globules rouges (hémolyse), irritent la muqueuse digestive (nausées, vomissements, diarrhée) et donnent un goût amer intense aux aliments. C’est la raison pour laquelle le quinoa doit être soigneusement rincé avant cuisson — les graines sont enrobées de saponines amères.
À faibles doses, les saponines exercent des effets bénéfiques démontrés : elles piègent le cholestérol dans le tube digestif en formant des complexes insolubles (réduction du cholestérol sanguin de 10 à 15 % dans les études cliniques), elles stimulent le système immunitaire (adjuvants vaccinaux — le QS-21, extrait de l’écorce de Quillaja saponaria, est utilisé dans plusieurs vaccins), et elles exercent des effets anticancéreux in vitro (induction de l’apoptose des cellules tumorales).
Les plantes sauvages européennes riches en saponines sont le chénopode blanc (Chenopodium album) — ses graines, proches parentes du quinoa, contiennent des saponines triterpénoïdes —, la saponaire officinale (Saponaria officinalis) — utilisée autrefois comme savon végétal, trop riche en saponines pour être comestible —, le lierre terrestre (Glechoma hederacea) et la primevère (Primula veris — racines).
En pratique, les saponines des plantes sauvages comestibles sont présentes en quantités trop faibles pour être toxiques mais suffisantes pour contribuer à l’effet hypocholestérolémiant d’un régime riche en végétaux sauvages.
VII. Les tanins : du gland au vin rouge
Les tanins sont des polyphénols de haut poids moléculaire (500 à 20 000 Da) qui partagent une propriété chimique commune : la capacité de précipiter les protéines. En bouche, ils précipitent les protéines salivaires (mucines), produisant la sensation d’astringence — cette impression de sécheresse, de rugosité et de constriction qui accompagne la dégustation d’un vin rouge jeune, d’un kaki immature ou d’une prunelle avant les gelées.
On distingue deux grandes classes de tanins. Les tanins condensés (proanthocyanidines) sont des polymères de catéchines et d’épicatéchines — on les trouve dans les pépins de raisin, les prunelles, les cenelles, le vin rouge, le thé et le cacao. Les tanins hydrolysables (gallotanins, ellagitanins) sont des esters d’acide gallique ou d’acide ellagique avec le glucose — on les trouve dans les glands de chêne, les noix de galle, les écorces et le bois de chêne.
En tant qu’antinutriments, les tanins exercent trois effets négatifs : ils précipitent les protéines alimentaires dans le tube digestif (réduction de la digestibilité protéique de 10 à 30 %), ils inhibent les enzymes digestives (trypsine, amylase, lipase — les tanins se lient aux enzymes et les inactivent) et ils chélatent le fer non héminique (réduction de l’absorption du fer de 50 à 90 % — une tasse de thé noir bu pendant un repas peut réduire l’absorption du fer du repas de 60 à 70 %).
Mais les tanins sont aussi de puissants antioxydants. Les proanthocyanidines des pépins de raisin ont une capacité antioxydante 20 à 50 fois supérieure à celle de la vitamine C et de la vitamine E. Ils exercent des effets cardioprotecteurs (amélioration de la fonction endothéliale, réduction de l’oxydation du LDL), anti-inflammatoires et anticancéreux démontrés. Le « paradoxe français » — la faible incidence de maladies cardiovasculaires en France malgré une alimentation riche en graisses saturées — est en partie attribué aux tanins du vin rouge.
VIII. Le gland de chêne : un aliment à détaniser
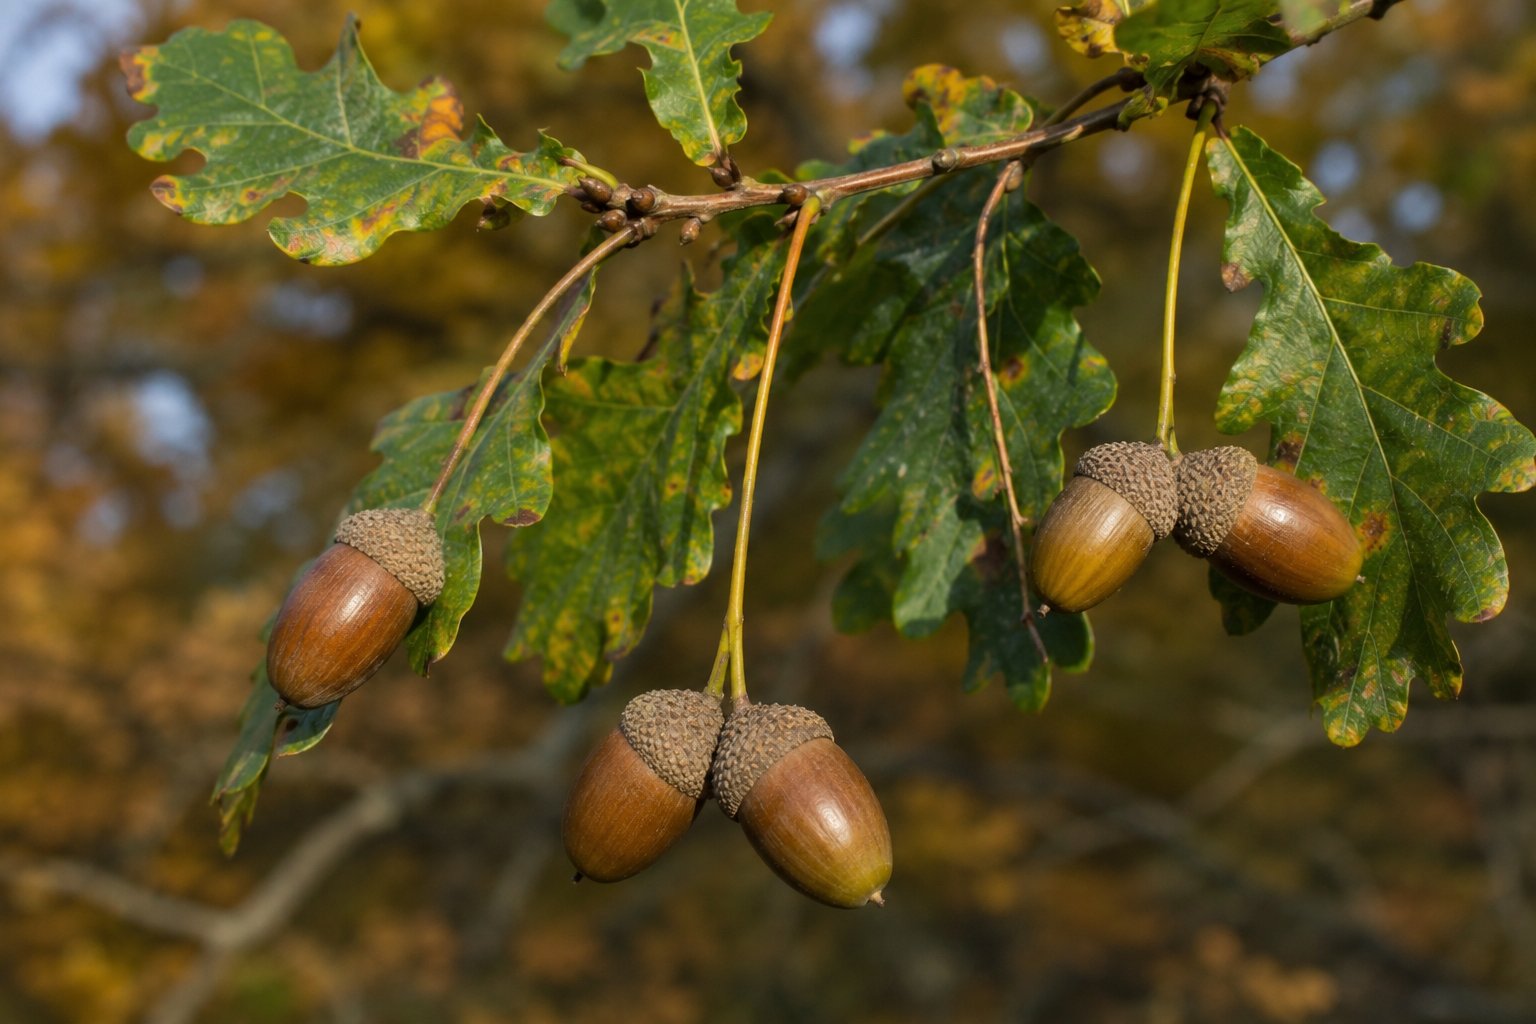
Le gland est le fruit du chêne (Quercus spp.). Il a été un aliment de base pour l’humanité pendant des millénaires — des traces de consommation de glands ont été retrouvées dans des sites préhistoriques datant de 30 000 ans. En Corée, la farine de gland (dotori) est encore utilisée pour fabriquer des gelées et des nouilles. En Californie, les peuples autochtones consommaient les glands comme aliment principal avant la colonisation européenne.
Le problème des glands est leur teneur en tanins : 2 à 8 % de tanins hydrolysables (principalement des gallotanins) et 1 à 4 % de tanins condensés. Ces teneurs rendent les glands crus intensément amers et astringents — immangeables tels quels. De plus, les tanins du gland sont irritants pour la muqueuse digestive et néphrotoxiques à fortes doses chez les animaux (intoxication au gland chez les bovins).
La teneur en tanins varie selon les espèces. Le chêne vert (Quercus ilex) et le chêne-liège (Q. suber) produisent des glands relativement doux (2 à 3 % de tanins) — certaines variétés méditerranéennes de chêne vert sont suffisamment douces pour être consommées grillées comme des châtaignes. Le chêne pédonculé (Q. robur) et le chêne sessile (Q. petraea) produisent des glands plus amers (4 à 8 % de tanins), qui nécessitent un détanisage complet.
Détanisage par lixiviation. Décortiquer les glands (casser la coque, retirer la pellicule brune). Mixer ou concasser grossièrement les cotylédons. Les immerger dans de l’eau courante (ruisseau, fontaine) pendant 3 à 7 jours — les tanins solubles sont progressivement éliminés par l’eau. Alternativement, faire tremper dans de grands volumes d’eau changée 2 à 3 fois par jour pendant 5 à 10 jours. Goûter : quand l’amertume a disparu, le détanisage est complet. Sécher les cotylédons au four (60°C, 8 à 12 heures). Moudre en farine.
La farine de gland détanisée contient 6 à 8 % de protéines, 5 à 8 % de lipides (principalement acide oléique — comme l’huile d’olive), 50 à 60 % de glucides (amidon), des fibres, du calcium, du magnésium, du phosphore et du potassium. Elle est naturellement sans gluten. Elle se mélange à de la farine de blé (30 % gland, 70 % blé) pour faire du pain, des galettes et des gâteaux au goût subtil de noisette et de châtaigne.
IX. L’acide phytique : le chélateur de minéraux
L’acide phytique (acide myo-inositol hexaphosphorique, IP6) est la principale forme de stockage du phosphore dans les graines végétales. Il constitue 1 à 5 % du poids sec des graines de céréales, de légumineuses et d’oléagineux. Dans la graine en germination, l’enzyme phytase hydrolyse l’acide phytique pour libérer le phosphore nécessaire à la croissance du germe.
L’acide phytique est un puissant chélateur de cations métalliques. Ses six groupements phosphate se lient au fer (Fe²⁺, Fe³⁺), au zinc (Zn²⁺), au calcium (Ca²⁺), au magnésium (Mg²⁺) et au manganèse (Mn²⁺) pour former des complexes insolubles (phytates) qui ne sont pas absorbés par le tube digestif humain. L’humain ne possède pas (ou très peu) de phytase intestinale — contrairement aux ruminants, dont le microbiote ruminal produit de la phytase en abondance.
L’impact est surtout significatif pour le fer et le zinc. Un repas riche en phytates peut réduire l’absorption du fer non héminique de 50 à 80 % et celle du zinc de 15 à 45 % (Hurrell & Egli, 2010). C’est l’une des causes principales de la carence en fer dans les populations dont l’alimentation repose essentiellement sur les céréales complètes et les légumineuses.
Parmi les plantes sauvages, les sources significatives de phytates sont les graines : graines de chénopode (1,5 à 2,5 % d’acide phytique), graines d’amarante, glands de chêne, graines d’ortie, noisettes. Les feuilles et les racines contiennent très peu de phytates — le problème est essentiellement lié aux graines.
Mais l’acide phytique a aussi un côté bénéfique. Sa capacité à chélater le fer libre est aussi un mécanisme antioxydant : le fer libre catalyse la production de radicaux hydroxyles (réaction de Fenton), qui endommagent l’ADN. En chélatant le fer libre, l’acide phytique protège l’ADN de l’oxydation — un mécanisme anticancéreux démontré in vitro et in vivo. L’acide phytique est aussi hypoglycémiant (il ralentit la digestion de l’amidon) et hypolipidémiant. Certains chercheurs le considèrent aujourd’hui comme un « anti-antinutriment » — un composé dont la présence dans l’alimentation est globalement bénéfique pour les populations bien nourries, et problématique uniquement dans un contexte de carence préexistante en minéraux.
X. Les glycosides cyanogénétiques
Les glycosides cyanogénétiques sont des composés qui libèrent de l’acide cyanhydrique (HCN) lorsque le tissu végétal est endommagé (broyé, mâché, coupé). Le mécanisme est une bombe chimique à retardement : dans la cellule intacte, le glycoside (substrat) et l’enzyme qui le dégrade (β-glucosidase) sont compartimentés dans des organelles différents. Quand la cellule est rompue, l’enzyme rencontre le substrat, hydrolyse le glycoside et libère du HCN — un gaz mortel qui inhibe la cytochrome c oxydase, l’enzyme terminale de la chaîne respiratoire mitochondriale.
Les plantes sauvages européennes contenant des glycosides cyanogénétiques sont :
— Les noyaux des Prunus (cerise, prunelle, pêche, amande amère) : ils contiennent de l’amygdaline, qui libère du HCN à la mastication. Ne jamais croquer ni mâcher les noyaux. Les noyaux entiers, avalés intacts, traversent le tube digestif sans danger (le tégument est imperméable).
— Les baies de sureau crues (Sambucus nigra) : elles contiennent de la sambunigrine, détruite par la cuisson (>70°C, 15 min).
— Les graines de lin : elles contiennent de la linamarine et de la linustatine. Aux doses alimentaires habituelles (1 à 2 cuillères à soupe/jour), la quantité de HCN libérée est négligeable et détoxifiée par le foie (conversion en thiocyanate par la rhodanèse).
— Les feuilles de laurier-cerise (Prunus laurocerasus) : plante ornementale courante, dont les feuilles froissées dégagent une odeur d’amande amère — HCN pur. Non comestible.
La dose létale de HCN chez l’humain est d’environ 1 à 3 mg/kg de poids corporel. Un noyau d’abricot amer contient 0,5 à 3 mg de HCN potentiel. Il faudrait mâcher et avaler 20 à 40 noyaux d’abricot amers pour atteindre une dose potentiellement létale chez un adulte — ce qui est arrivé dans des cas documentés de personnes consommant des noyaux d’abricot comme « traitement anticancéreux » (le laetrile, ou amygdaline, est un remède alternatif sans efficacité démontrée et potentiellement mortel).
XI. Les furanocoumarines : brûlures solaires végétales
Les furanocoumarines (psoralènes) sont des composés photosensibilisants produits par les Apiacées (famille de la carotte) et les Rutacées (famille des agrumes). Elles absorbent les rayons UV-A (320-400 nm) et, une fois excitées, réagissent avec l’ADN des cellules cutanées pour former des adduits qui endommagent les kératinocytes et provoquent une réaction inflammatoire intense.
Le résultat clinique est une phytophotodermatite : brûlure cutanée apparaissant 12 à 48 heures après le contact avec la plante en présence de soleil, sous forme de vésicules, de bulles et d’une hyperpigmentation résiduelle qui peut persister des mois.
Les Apiacées sauvages les plus riches en furanocoumarines sont :
— La berce du Caucase (Heracleum mantegazzianum) : la plus dangereuse, plante invasive géante (3 à 5 m) dont le suc provoque des brûlures du second degré au soleil.
— La berce commune (Heracleum sphondylium) : furanocoumarines présentes mais à des concentrations 10 à 100 fois moindres que la berce du Caucase. Les jeunes pousses sont comestibles cuites, mais la manipulation doit se faire avec des gants.
— Le panais sauvage (Pastinaca sativa) : furanocoumarines concentrées dans les feuilles, la tige et la peau de la racine. Porter des gants pour la récolte.
— L’angélique (Angelica archangelica) : contient des furanocoumarines, mais à faibles concentrations.
Les furanocoumarines sont détruites par la cuisson. Les racines de panais épluchées et cuites sont parfaitement sûres. Le risque est uniquement lié au contact cutané avec les parties aériennes fraîches, en présence de soleil. Par temps couvert ou la nuit, le risque est nul (pas d’UV-A).
Paradoxalement, les furanocoumarines ont un usage médical : le psoralène + UV-A (PUVA-thérapie) est un traitement efficace du psoriasis, du vitiligo et de certains lymphomes cutanés. La même molécule qui brûle la peau saine guérit la peau malade — un exemple parfait du principe de l’hormèse.
XII. Les goitrogènes des Brassicacées
Les goitrogènes sont des substances qui interfèrent avec la synthèse des hormones thyroïdiennes, pouvant provoquer un goitre (augmentation du volume de la thyroïde) en cas de consommation excessive et prolongée. Les principaux goitrogènes végétaux sont les glucosinolates et leurs produits de dégradation (isothiocyanates, thiocyanates, goitrine) présents dans les Brassicacées (crucifères).
Les Brassicacées sauvages européennes contiennent des glucosinolates : moutarde des champs (Sinapis arvensis), bourse-à-pasteur (Capsella bursa-pastoris), cardamine des prés (Cardamine pratensis), alliaire (Alliaria petiolata), cresson de fontaine (Nasturtium officinale). Les glucosinolates sont les composés responsables du goût piquant et poivré caractéristique des crucifères.
Le mécanisme goitrogène est le suivant : les thiocyanates issus de l’hydrolyse des glucosinolates entrent en compétition avec l’iode pour le transporteur sodium-iode (NIS) de la thyroïde. Ils réduisent la captation de l’iode par la thyroïde, ce qui diminue la synthèse de T3 et T4 (hormones thyroïdiennes). La TSH (thyréostimuline) augmente en compensation — et cette stimulation chronique provoque l’hypertrophie de la glande (goitre).
En pratique, le risque goitrogène des plantes sauvages est négligeable chez les personnes ayant un apport en iode adéquat (150 µg/jour — assuré par le sel iodé, les produits de la mer, les algues). Le goitre par goitrogènes végétaux ne survient que dans un contexte de carence iodée préexistante combinée à une consommation massive et prolongée de crucifères crues — un scénario improbable en Europe occidentale.
Les glucosinolates ont par ailleurs des effets anticancéreux puissants. Les isothiocyanates (sulforaphane du brocoli, allyl-isothiocyanate de la moutarde) sont parmi les composés phytochimiques les plus étudiés en chimioprévention. Ils induisent les enzymes de phase II de détoxification (glutathion-S-transférase, quinone réductase), inhibent les enzymes de phase I (cytochromes P450 qui activent les procarcinogènes) et induisent l’apoptose des cellules cancéreuses. Consommer des crucifères sauvages (alliaire, cresson, cardamine) est un geste de prévention du cancer — pas un risque thyroïdien.
XIII. Alcaloïdes et solanine
Les alcaloïdes sont des composés azotés basiques produits par environ 20 % des espèces végétales. Ils exercent des effets pharmacologiques puissants sur le système nerveux — la plupart sont toxiques pour les herbivores, ce qui constitue leur rôle défensif. Parmi les alcaloïdes les plus connus : la caféine (café), la nicotine (tabac), la morphine (pavot), l’atropine (belladone), la strychnine (noix vomique), la colchicine (colchique).
Dans le contexte des plantes sauvages comestibles, l’alcaloïde le plus pertinent est la solanine (α-solanine et α-chaconine) — un glycoalcaloïde stéroïdien des Solanacées. La solanine est présente dans les pommes de terre vertes (parties exposées à la lumière), les tomates vertes, et les baies de morelle noire (Solanum nigrum) immatures. Elle inhibe l’acétylcholinestérase et perturbe les membranes cellulaires. Les symptômes d’intoxication (>2 mg/kg de poids corporel) : troubles digestifs, maux de tête, confusion, vomissements ; à doses plus élevées : convulsions, coma.
La morelle noire (Solanum nigrum) est un cas intéressant. Ses baies vertes sont toxiques (solanine élevée). Ses baies complètement noires et mûres contiennent des quantités résiduelles de solanine très faibles — elles sont consommées dans de nombreuses cultures (Afrique, Inde, Amérique du Sud) sous forme cuite. En Europe, par prudence, la consommation de morelle noire est déconseillée — le risque de confusion entre baies mûres et immatures est trop élevé.
Les jeunes pousses de sureau (Sambucus nigra) contiennent de la sambucine, un alcaloïde faiblement toxique — c’est pourquoi on ne consomme que les fleurs (en beignets, en sirop) et les baies cuites, jamais les feuilles ni les tiges vertes.
XIV. L’hormèse : le paradoxe dose-réponse
L’hormèse est un phénomène biologique dans lequel une substance exerce un effet stimulant ou bénéfique à faible dose et un effet inhibiteur ou toxique à forte dose. La courbe dose-réponse n’est pas linéaire mais biphasique — en forme de U inversé (pour un effet bénéfique) ou de J (pour un effet toxique).
Les antinutriments végétaux sont parmi les meilleurs exemples d’hormèse en nutrition. Les tanins à faible dose sont antioxydants et cardioprotecteurs ; à forte dose, ils inhibent l’absorption du fer et irritent la muqueuse digestive. L’acide phytique à faible dose protège l’ADN de l’oxydation ; à forte dose, il provoque des carences en fer et en zinc. Les saponines à faible dose abaissent le cholestérol ; à forte dose, elles lysent les membranes cellulaires. Les glucosinolates à faible dose préviennent le cancer ; à forte dose, ils perturbent la thyroïde.
Ce paradoxe s’explique par l’activation des voies de stress cellulaire. Les antinutriments, en tant que xénobiotiques (molécules étrangères à l’organisme), activent les voies de détoxification cellulaire — Nrf2 (Nuclear factor erythroid 2-related factor 2), les enzymes de phase II (glutathion-S-transférase, quinone réductase, UDP-glucuronosyltransférase) et les protéines de choc thermique (HSP). Ces voies protègent la cellule non seulement contre l’antinutriment lui-même, mais aussi contre d’autres agressions (radicaux libres, carcinogènes, toxines environnementales). C’est un entraînement cellulaire : le stress léger renforce les défenses.
L’implication pratique est importante : les régimes « épurés » qui éliminent tous les antinutriments (régimes sans lectines, sans oxalates, sans phytates, sans glucosinolates) privent l’organisme des bénéfices de l’hormèse. Un régime diversifié contenant des quantités modérées de tous ces composés est probablement plus protecteur qu’un régime « propre » mais monotone. C’est exactement ce que fournit une alimentation riche en plantes sauvages variées — un bombardement hormétique diversifié qui maintient les défenses cellulaires en alerte permanente.
XV. Techniques ancestrales de neutralisation
L’humanité a développé, par essai-erreur sur des millénaires, un ensemble de techniques culinaires dont la fonction première était la neutralisation des antinutriments — même si nos ancêtres n’utilisaient évidemment pas ce terme.
La cuisson. La chaleur dénature les protéines (lectines, inhibiteurs d’enzymes), détruit les glycosides cyanogénétiques (sambunigrine du sureau), élimine les furanocoumarines et réduit l’activité des saponines. La cuisson est la technique de neutralisation la plus universelle et la plus efficace. La plupart des plantes sauvages potentiellement problématiques (ortie urticante, sureau cyanogène, chénopode oxalique) deviennent parfaitement sûres après une cuisson de 10 à 15 minutes.
Le trempage et le rinçage. L’eau dissout les antinutriments solubles : oxalates solubles, saponines, tanins hydrolysables, une partie des phytates. Le trempage des légumineuses (8 à 12 heures), le rinçage répété du quinoa, la lixiviation des glands à l’eau courante sont autant d’applications de ce principe. Toujours jeter l’eau de trempage.
La germination. La graine en germination active ses propres enzymes de dégradation : la phytase hydrolyse l’acide phytique (réduction de 40 à 60 %), les protéases dégradent les lectines (réduction de 50 à 75 %) et les inhibiteurs de trypsine (réduction de 50 %). La germination est la méthode la plus « physiologique » — elle utilise la machinerie enzymatique de la graine elle-même.
La fermentation. Les bactéries lactiques (Lactobacillus, Leuconostoc) et les levures produisent des enzymes (protéases, phytases, β-glucosidases) qui dégradent les lectines, les phytates, les tanins et les glycosides cyanogénétiques. Le pain au levain a une teneur en phytates 60 à 80 % inférieure à celle du pain à la levure (la fermentation lactique du levain active les phytases du grain). La lactofermentation des légumes (choucroute, kimchi) réduit les oxalates, les saponines et les glucosinolates.
Le blettissement. La maturation post-récolte (nèfles, cormes, alises, prunelles après gel) réduit les tanins par polymérisation : les tanins monomères astringents se polymérisent en tanins de haut poids moléculaire qui ne se lient plus aux protéines salivaires — l’astringence disparaît sans que les tanins soient détruits.
XVI. Combiner les aliments : les parades nutritionnelles
Quand la neutralisation complète des antinutriments n’est pas possible ou souhaitable, des combinaisons alimentaires judicieuses permettent d’en atténuer les effets négatifs.
Vitamine C + fer végétal. L’acide ascorbique réduit le fer ferrique (Fe³⁺) en fer ferreux (Fe²⁺), plus absorbable, et forme avec lui un complexe soluble qui résiste à l’effet chélatant des phytates et des tanins. Ajouter une source de vitamine C (cynorrhodon, argousier, persil, jus de citron) à un repas contenant du fer végétal (ortie, chénopode, graines) augmente l’absorption du fer de 2 à 6 fois. C’est la parade la plus puissante contre l’effet anti-fer des phytates et des tanins.
Calcium + oxalates. Consommer un aliment riche en calcium (fromage, yaourt, amandes) en même temps qu’un aliment riche en oxalates (oseille, pourpier, chénopode) piège l’oxalate dans le tube digestif sous forme d’oxalate de calcium insoluble — qui n’est pas absorbé et est éliminé dans les selles. Cela protège les reins de la surcharge en oxalate tout en maintenant l’absorption normale du calcium (le calcium est en excès par rapport à l’oxalate).
Protéines animales + tanins. Les protéines animales (viande, poisson, œufs) apportent du fer héminique dont l’absorption n’est pas affectée par les tanins ni les phytates. Dans un repas mixte (viande + légumes sauvages tanniques), le fer héminique assure l’apport en fer indépendamment des antinutriments des plantes.
Alliacées + glucosinolates. L’ail, l’oignon et les poireaux contiennent des composés soufrés (allicine, diallyl disulfure) qui complètent et renforcent l’effet anticancéreux des glucosinolates des crucifères sauvages — les deux familles de composés agissent par des mécanismes complémentaires sur les enzymes de détoxification.
Ces combinaisons ne sont pas des inventions diététiques modernes — elles sont ancrées dans les traditions culinaires universelles. Le repas méditerranéen classique (salade de pourpier ou d’épinards + huile d’olive + jus de citron + fromage) est une parade parfaite contre les oxalates. Le repas japonais (kinpira de bardane + riz + poisson + thé vert) combine prébiotiques, protéines animales et polyphénols. L’intuition culinaire ancestrale a résolu des problèmes de nutrition que la science n’a formalisés que récemment.
XVII. Précautions et populations à risque
Certaines populations sont plus vulnérables aux antinutriments que la population générale.
Les personnes ayant des antécédents de calculs rénaux d’oxalate de calcium doivent limiter les plantes riches en oxalates solubles (oseille, chénopode, pourpier cru) ou les consommer cuites (eau de cuisson jetée) avec un aliment riche en calcium.
Les personnes souffrant de carence en fer (anémie ferriprive) doivent éviter de boire du thé ou du café pendant les repas (tanins qui chélatent le fer) et privilégier la consommation simultanée de vitamine C avec les sources de fer végétal.
Les personnes atteintes d’hypothyroïdie ou de carence en iode doivent éviter la consommation massive et quotidienne de crucifères crues (les glucosinolates sont partiellement détruits par la cuisson).
Les personnes sous anticoagulants (warfarine) doivent maintenir un apport stable en vitamine K — les plantes sauvages riches en vitamine K (ortie, pissenlit, plantain) doivent être consommées de manière régulière (pas de variations brutales) pour ne pas déstabiliser l’INR.
Les personnes souffrant du syndrome de l’intestin irritable (SII) peuvent être sensibles aux saponines et à l’inuline (FODMAPs) — introduire les plantes sauvages progressivement et observer la tolérance.
Les enfants en bas âge ont un système de détoxification hépatique immature et un poids corporel faible — les doses toxiques d’antinutriments sont atteintes plus rapidement. Ne pas donner de plantes sauvages crues aux enfants de moins de 3 ans. Les préparations cuites sont sûres.
Pour la population générale en bonne santé : les antinutriments des plantes sauvages consommées dans le cadre d’une alimentation variée et équilibrée, avec des modes de préparation traditionnels (cuisson, trempage, fermentation), ne posent aucun problème. Le risque est limité aux situations de consommation excessive, monotone et prolongée d’une seule espèce crue — un scénario improbable dans la pratique normale de la cueillette sauvage.
XVIII. Synthèse
Les antinutriments des plantes — oxalates, lectines, saponines, tanins, acide phytique, glycosides cyanogénétiques, furanocoumarines, goitrogènes, alcaloïdes — sont le prix chimique que la nature impose pour accéder à ses trésors nutritionnels. Ils ne sont pas des ennemis à éradiquer mais des molécules à comprendre et à gérer.
La gestion est simple et résumée en quatre principes. Diversifier : ne jamais consommer massivement une seule espèce, ce qui concentrerait un seul type d’antinutriment. Préparer : cuire, tremper, fermenter, germer — les techniques ancestrales neutralisent la plupart des antinutriments. Combiner : vitamine C avec le fer végétal, calcium avec les oxalates, protéines animales avec les plantes tanniques. Doser : les antinutriments à faibles doses sont souvent bénéfiques (hormèse) — c’est l’excès qui pose problème, pas la présence.
Le paradoxe central est que les mêmes composés qui gênent l’absorption de quelques milligrammes de fer ou de zinc exercent, par ailleurs, des effets antioxydants, anti-inflammatoires, anticancéreux et hypocholestérolémiants qui surpassent de loin le coût nutritionnel qu’ils imposent. Les tanins qui chélatent le fer protègent aussi les artères. L’acide phytique qui lie le zinc protège aussi l’ADN. Les glucosinolates qui perturbent la thyroïde à doses massives préviennent le cancer à doses alimentaires normales.
Les plantes sauvages, avec leur cortège complet d’antinutriments non éliminés par la sélection agronomique, offrent un cocktail hormétique d’une complexité que les légumes cultivés — sélectionnés pour être doux, tendres et dépourvus d’amertume — ne fournissent plus. Manger sauvage, c’est réintroduire dans l’alimentation cette complexité chimique avec laquelle notre physiologie a coévolué pendant deux millions d’années — et dont l’absence dans le régime moderne pourrait expliquer, en partie, l’explosion des maladies chroniques de civilisation.
Bibliographie
- Hurrell R.F. & Egli I. (2010). « Iron bioavailability and dietary reference values ». The American Journal of Clinical Nutrition, 91(5), 1461S-1467S.
- Gilani G.S. et al. (2012). « Impact of antinutritional factors in food proteins on the digestibility of protein and the bioavailability of amino acids and on protein quality ». British Journal of Nutrition, 108(S2), S315-S332.
- Gemede H.F. & Ratta N. (2014). « Antinutritional factors in plant foods: potential health benefits and adverse effects ». International Journal of Nutrition and Food Sciences, 3(4), 284-289.
- Vasconcelos I.M. & Oliveira J.T. (2004). « Antinutritional properties of plant lectins ». Toxicon, 44(4), 385-403.
- Schlemmer U. et al. (2009). « Phytate in foods and significance for humans: food sources, intake, processing, bioavailability, protective role and analysis ». Molecular Nutrition & Food Research, 53(S2), S330-S375.
- Savage G.P. et al. (2000). « Effect of cooking on the soluble and insoluble oxalate content of some New Zealand foods ». Journal of Food Composition and Analysis, 13(3), 201-206.
- Gupta R.K. et al. (2015). « Reduction of phytic acid and enhancement of bioavailable micronutrients in food grains ». Journal of Food Science and Technology, 52(2), 676-684.
- Shi J. et al. (2004). « Saponins from edible legumes: chemistry, processing, and health benefits ». Journal of Medicinal Food, 7(1), 67-78.
- Serrano J. et al. (2009). « Tannins: current knowledge of food sources, intake, bioavailability and biological effects ». Molecular Nutrition & Food Research, 53(S2), S310-S329.
- Mattson M.P. (2008). « Hormesis defined ». Ageing Research Reviews, 7(1), 1-7.
- Calabrese E.J. & Baldwin L.A. (2003). « Hormesis: the dose-response revolution ». Annual Review of Pharmacology and Toxicology, 43, 175-197.
- Verhoeven D.T.H. et al. (1996). « Epidemiological studies on brassica vegetables and cancer risk ». Cancer Epidemiology, Biomarkers & Prevention, 5(9), 733-748.
- Majak W. et al. (1980). « Cyanide release from Prunus species ». Canadian Journal of Plant Science, 60(4), 1211-1214.
- Zobel A.M. & Brown S.A. (1990). « Furanocoumarins: distribution, biosynthesis and their role in plants ». Canadian Journal of Botany, 68(9), 1849-1855.
- Jenkins D.J.A. et al. (2002). « Dose response of almonds on coronary heart disease risk factors ». Metabolism, 51(12), 1596-1604.
Les informations présentées dans cet article sont fournies à titre éducatif et ne remplacent en aucun cas l’avis d’un professionnel de santé. L’auteur décline toute responsabilité quant à l’usage qui pourrait en être fait. En cas de doute sur la comestibilité d’une plante, consultez un botaniste confirmé.